Энтропийный компас фермента: как информация стекается к активному центру
Контекст
Аллостерическая коммуникация — способ, которым белок передаёт сигнал от одного участка к другому, — лежит в основе регуляции активности ферментов. Рядом с этой работой в архиве находятся исследования, связывающие топологию сетей с динамикой: одни разбирают запутанность и информационные потоки в сложных системах, другие применяют энтропийный анализ к климатическим данным, третьи изучают прыжки электронов в неупорядоченных материалах. Все они, как и данная статья, ищут универсальные принципы передачи информации в сетях. Настоящая работа выделяется тем, что переносит этот подход на молекулярный уровень и проверяет его на семи реальных ферментах, а не на модельных системах.
Методы
Авторы использовали два взаимодополняющих метода. Первый — динамическая гауссова сетевая модель (dGNM): белок сводится к сети альфа-углеродных атомов, соединённых пружинами, и по временным корреляциям флуктуаций вычисляется перенос энтропии от одного остатка к другому. Второй — информационная центральность (IC): она опирается только на граф контактов (матрицу Кирхгофа) и вычисляет, насколько каждый остаток способен быть информационным узлом, без временной динамики. Оба метода применены к семи ферментам: TIM-Barrel, лизоциму человека, рибонуклеазе A1, пепсину, бета-лактамазе, глюкокиназе человека и карбоангидразе II.
Результаты
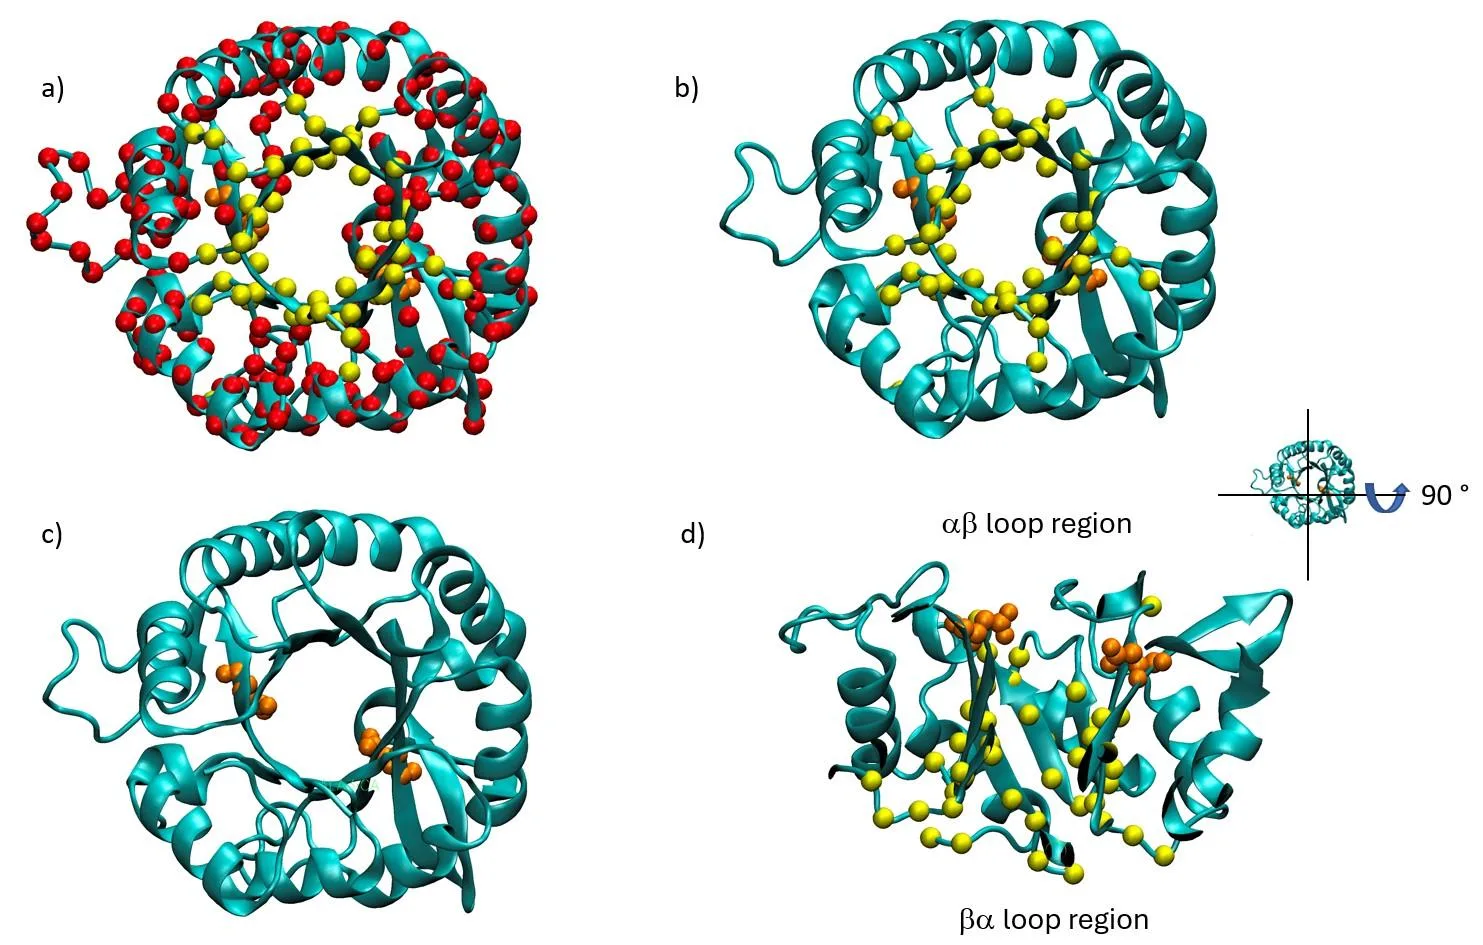
Во всех семи ферментах обнаружен одинаковый градиент: остатки на периферии молекулы являются лучшими донорами энтропии, а остатки вблизи каталитического сайта — худшими. Например, в TIM-Barrel 177 лучших доноров расположены на внешней поверхности, а 72 худших — в центральной области, рядом с каталитическими остатками Asp130 и Asp11. Численно это выражается в том, что суммарный перенос энтропии от периферийных узлов к остальным значительно выше, чем от узлов вблизи активного центра. Сравнение двух методов показало их согласие: информационная центральность, вычисленная только по топологии, выделяет те же остатки, что и динамический перенос энтропии. Это означает, что направление потока информации закодировано в самой структуре контактной сети, а не является следствием только динамики.
Значение
Работа отличается от соседних исследований тем, что применяет энтропийный анализ не к абстрактным сетям или климатическим данным, а к конкретным биологическим молекулам, и проверяет гипотезу на семи разных ферментах. Если в соседних работах информационные потоки изучаются в общем виде, здесь показано, что топологии графа контактов достаточно для предсказания направления аллостерической коммуникации. Это снижает вычислительные затраты и открывает путь к быстрому скринингу белков на предмет аллостерических свойств.
Развитие
Тема может развиваться в сторону изучения того, как конформационные изменения в ходе каталитического цикла влияют на энтропийный поток. Возможно, удастся связать топологические меры с конкретными аллостерическими событиями, например, связыванием лиганда. Перспективно также применение этих методов для дизайна новых ферментов с заданными регуляторными свойствами.
Влияние
Результаты могут повлиять на белковую инженерию и разработку лекарств, нацеленных на аллостерические сайты ферментов.
Следующие шаги
Следующий шаг — проверить, как конформационные изменения и связывание субстрата меняют градиент энтропии в выбранных ферментах.
Ключевые проблемы
Работа связывается с нерешённой проблемой биохимии: как именно трёхмерная структура белка кодирует пути аллостерической коммуникации. Показано, что топологии контактной сети достаточно для определения направления потока, но остаётся открытым вопрос о роли конкретных динамических событий в каталитическом цикле.
TIM-Barrel — одна из самых распространённых белковых укладок в природе: она встречается по меньшей мере в 15 различных семействах ферментов, от бактерий до человека.
Ключевые числа
- число исследованных ферментов: 7
- количество остатков в TIM-Barrel: 249
- лучших доноров энтропии в TIM-Barrel: 177
- худших доноров энтропии в TIM-Barrel: 72
- временная задержка в dGNM: 1.2 пс