لماذا لا ينكسر التعرف البيولوجي، بل يتحول بسلاسة سريع
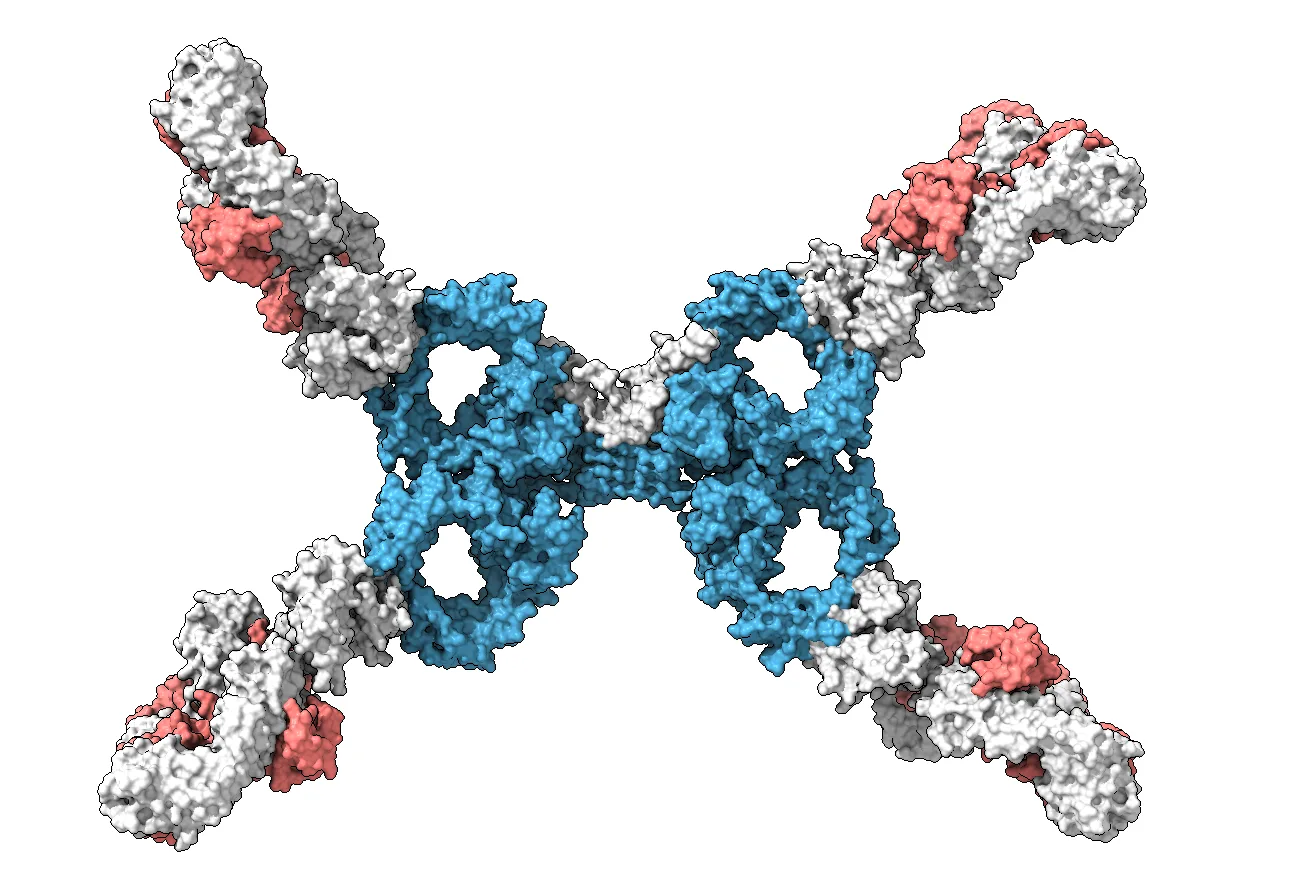
عندما يواجه الجسم المضاد فيروسًا، فإنه لا يتشبث به بقبضة واحدة ميتة. بل يشبه ذلك عنقودي عنب يتدحرجان في الماء ويتشابكان معًا بعشرات الزوائد القصيرة. كل زائدة ضعيفة بذاتها — تنفصل بسهولة بسبب الاهتزاز الحراري لجزيئات الماء — لكنها معًا تمسك بقوة.
في الاستعراض الجديد، أعيد بناء هذه العملية بلغة الميكانيكا الإحصائية. اتضح أن مهمة حساب جميع الطرق الممكنة لالتحام سطحين مغطيين بالخطافات تختزل إلى لغز رياضي قديم — مسألة المونومرات والدايمرات على الرسم البياني. وحل هذا اللغز يقول بشكل قاطع: الارتباط متعدد الأسنان لا يعرف انتقالات طورية حادة. التحول دائمًا سلس، مثل إدارة مقبض الصوت، وليس مثل طقطقة مفتاح كهربائي. لذلك يمكن للخلية الحية أن تضبط استجاباتها بدقة.
من هذا السلوك السلس تنبثق ثلاثة قيود صارمة. أولاً، الغلاف التنافري على سطح الجزيء ليس نزوة تطورية، بل جزء إلزامي: بدونه ستلتصق جميع الخطافات بشكل فوضوي. ثانيًا، الروابط لا تعمل بشكل مستقل: إغلاق واحدة يؤثر على توفر المجاورات. ثالثًا، بما أن طاقة الارتباط تدخل في معدل التفاعل عبر الأس، فإن تغييرًا طفيفًا في عدد المستقبلات — لنقل من عشرة إلى اثني عشر — يمكن أن يطيل زمن الاحتجاز مئات المرات. نفس المعادلات تصف عمل الأجسام المضادة، والتقاط الجزيئات الدهنية بواسطة البروتينات الدهنية، وكيف تفحص الخلايا التائية سطح الخلايا الأخرى بحثًا عن دخيل. في كل مكان، ليس قوة الاتصال الفردي هي الحاسمة، بل كيفية توزيع الالتصاق الكلي عبر العديد من النقاط الضعيفة. الألفة خاصية لجزيء منفرد، بينما الانتقائية خاصية للمجموع الكلي.
لذا فإن التعرف البيولوجي لا يشبه قفلًا ومفتاحًا، بل يشبه حشدًا من الناس يمسك بعضهم ببعض من ملابسهم: لا أحد يمسك بقوة، لكنهم جميعًا معًا يمنعون السقوط. وإذا أطلق أحدهم طرف الثوب، فإن البنية بأكملها تعيد ترتيب نفسها بنعومة، ولا تنهار دفعة واحدة.
الملخص الأصلي
كما كتبه المؤلفون، بالإنجليزية arXiv:2608.08571v1
Biological recognition rarely rests on one strong bond. It works by forming many weak ones at once, between crowded, deformable surfaces in water. This review develops that process as a problem in statistical mechanics. Counting the ways two multivalent objects can bind proves to be the classical monomer-dimer problem on a graph, with a rigorous consequence: the apparent switching of multivalent binding is always a smooth crossover, never a phase transition. Three constraints follow. A repulsive surface layer is obligatory rather than a design choice; bonds do not act independently; and since free energies enter rates exponentially, small changes in receptor number shift binding lifetimes by orders of magnitude. One set of equations then covers antibodies, lipoproteins, and T cell recognition. In each, what decides the outcome is not the strength of any single bond but how a fixed total is spread over many: affinity is a property of a molecule, selectivity a property of an assembly.
الخلية التائية، عند فحصها لخلية واحدة من الجسم، تشكل وتكسر مئات الاتصالات الضعيفة في الثانية — مثل شخص يلمس المفاتيح بسرعة بحثًا عن النغمة الصحيحة.