بقع الحبر على حدود الخلية: كيف تقرر البروتينات بنفسها أين تتجمع وإلى أين تتجه ✛
خزانا حبر يقفان على جانبي الحدود الخلوية. منهما يتدفق إلى الغشاء نوعان من المونومرات، التي عندما تلتقي تشكل قطرات لزجة من المعقدات. القطرات بالكاد تتحرك، بينما المونومرات الحرة تنتشر بسرعة، مثل جزيئات العطر في الغرفة. هكذا تبدأ قصة كيف ترسم الخلية على حدودها نقاطًا، وهي تجمعات بروتينية منفصلة، ستحدد لاحقًا اتجاه نمو النسيج بأكمله.
النموذج الذي بناه المؤلفون بسيط في مكوناته: نوعان من المونومرات (A وB) ينتشران بسرعة، ويرتبطان عكسيًا ليكونا معقدات باتجاهين (C وC†)، وهذه الأخيرة تزحف ببطء. التغذية الراجعة تدخل فقط عبر معدلات التفاعلات: التغذية الراجعة للتجميع K(c) تقوي الارتباط حيث توجد معقدات كثيرة بالفعل، بينما التعديل المتقاطع V(c†) يغير تحلل المعقدات اعتمادًا على تركيز الاتجاه المعاكس. لا إشارات خارجية، فقط قواعد محلية. وهنا يبدأ الأمر الرئيسي: إذا كانت المونومرات تنتشر أسرع من المعقد وكانت التغذية الراجعة قوية بما يكفي، تفقد الحالة المتجانسة استقرارها. ولكن ليس عبر تشعب تورينج ذي الموجة المحدودة، كما قد يتوقع المرء، بل عبر موجة طويلة، أي إعادة توزيع بطيئة للكتلة الكلية.
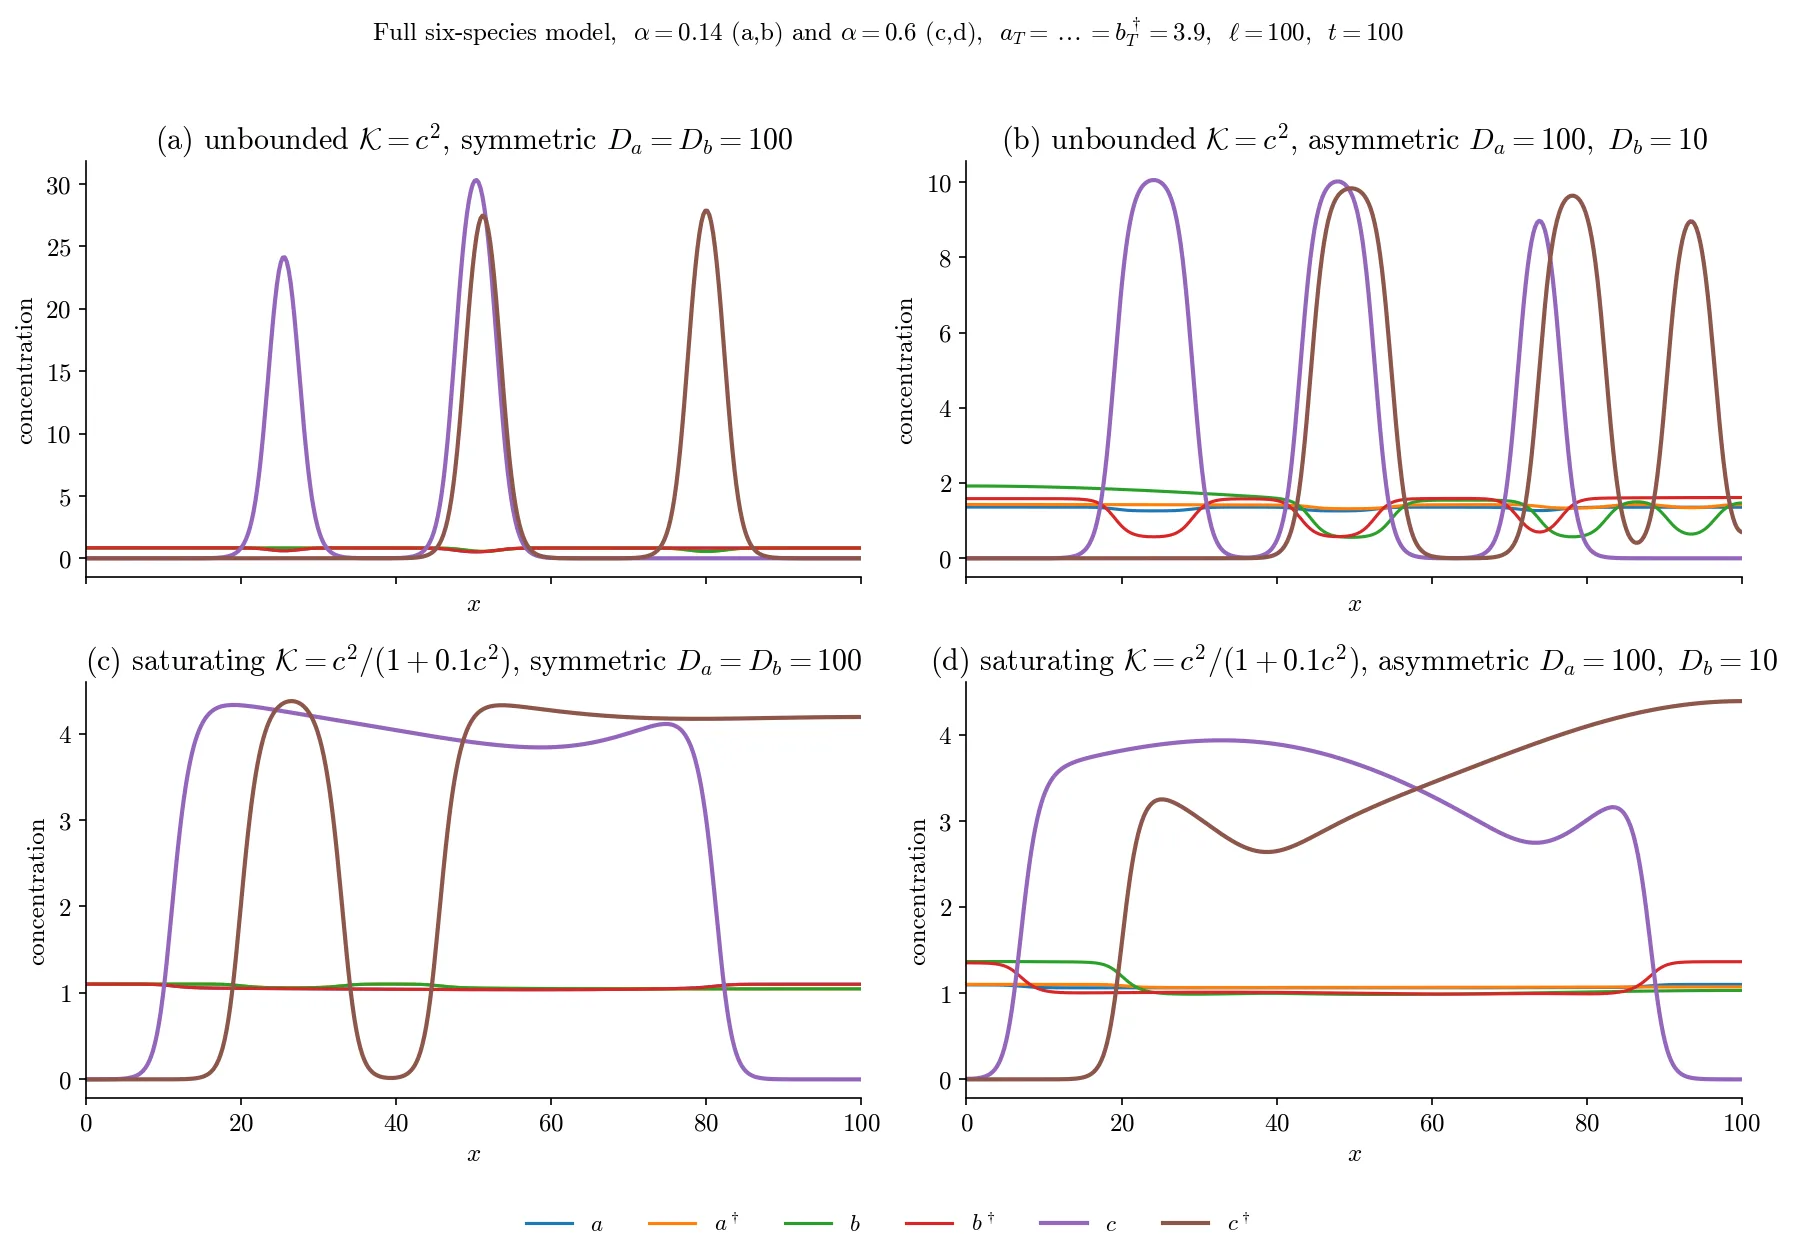
بعد ذلك، يحدد شكل التغذية الراجعة ما سيحدث: هضاب واسعة أو قمم ضيقة. بالنسبة للتغذية غير المحدودة (c²)، تظهر قمم ضيقة بسعة تتناسب عكسيًا مع حاصل ضرب متوسط تراكيز المونومرات، وعرض عام عند نصف الارتفاع يساوي 4 arccosh(√2) ≈ 3.53 بوحدات طول انتشار المعقد. بالنسبة للتغذية المشبعة (c²/(1+ρc²))، تتشكل هضاب واسعة، ويحدد موضع جبهتها بناء ماكسويل، وهي نفس القاعدة التي تصف توازن الأطوار في الفيزياء. لكن النتيجة الأكثر إثارة للدهشة تتعلق بعدد النقاط. أي مصفوفة من النقاط ذات الاتجاه الواحد غير مستقرة وتندمج في نقطة كبيرة واحدة. سرعة الاندماج لقمّتين تتناسب مع مكعب متوسط تركيز المونومرات ومعامل الانتشار، وعندما تكون معاملات انتشار المونومرات غير متساوية، تحدد بالمتوسط التوافقي لمعاملات انتشارها. لذلك، فإن عدد النقاط التي نراها على التلامس الخلوي ليس محددًا بطول موجة ثابت، بل يتحدد حركيًا، مثل الاندماج البطيء للقطرات على الزجاج.
الآن نقدم التعديل المتقاطع: دع معقدات أحد الاتجاهين تسرع تحلل معقدات الاتجاه المعاكس. عندها يتحول التجميع إلى فرز. تبدأ النقاط المتعايشة ذات الاتجاهات المتعاكسة في الابتعاد عن بعضها بسرعة تتناسب مع ميل التعديل وسعة النقطة. معيار الفرز يعتمد فقط على إشارة التعديل المتقاطع، وليس على شكل التغذية الراجعة للتجميع. هذا يعني أن التحكم في عدد النقاط وفصلها الاتجاهي مكونان قابلان للفصل رياضيًا. يمكن للخلية أن تضبطهما بشكل مستقل، مثل فنان يقرر بشكل منفصل عدد البقع التي سيضعها على اللوحة، وبشكل منفصل أيها ستتجه يسارًا وأيها يمينًا.
هكذا، النموذج الذي بدأ بخزاني حبر يعطي إجابة بسيطة لسؤال معقد: حفظ الكتلة والتغذية الراجعة للتجميع كافيان لتكوين النقاط، وعددها يتحدد حركيًا بسبب الاندماج البطيء، وفرز الاتجاهات يتطلب تعديلًا متقاطعًا محدد الإشارة للدورة. اليوم يمكن استخدام هذا لتفسير تجارب تصوير التجمعات البروتينية على التلامسات الخلوية: بمعرفة حركية المونومرات، يتنبأ النموذج بعدد النقاط التي ستتشكل وحجمها. وغدًا، ربما يساعد نفس الحبر في رسم خريطة لكيفية انتقال التنظيم الذاتي الجزيئي إلى استقطاب النسيج بأكمله.
عرض النقطة البروتينية الواحدة في النموذج شامل: لا يعتمد على كمية البروتين ولا على قوة التغذية الراجعة، بل يحدده فقط انتشار المعقد ومعدل تحلله. هذا يشبه كيفية أن عرض الازدحام المروري لا يعتمد على عدد السيارات، بل على سرعة استجابة السائقين.