لماذا تتجمع البروتينات على حدود الخلايا في بقع منفصلة ولا تندمج ✛
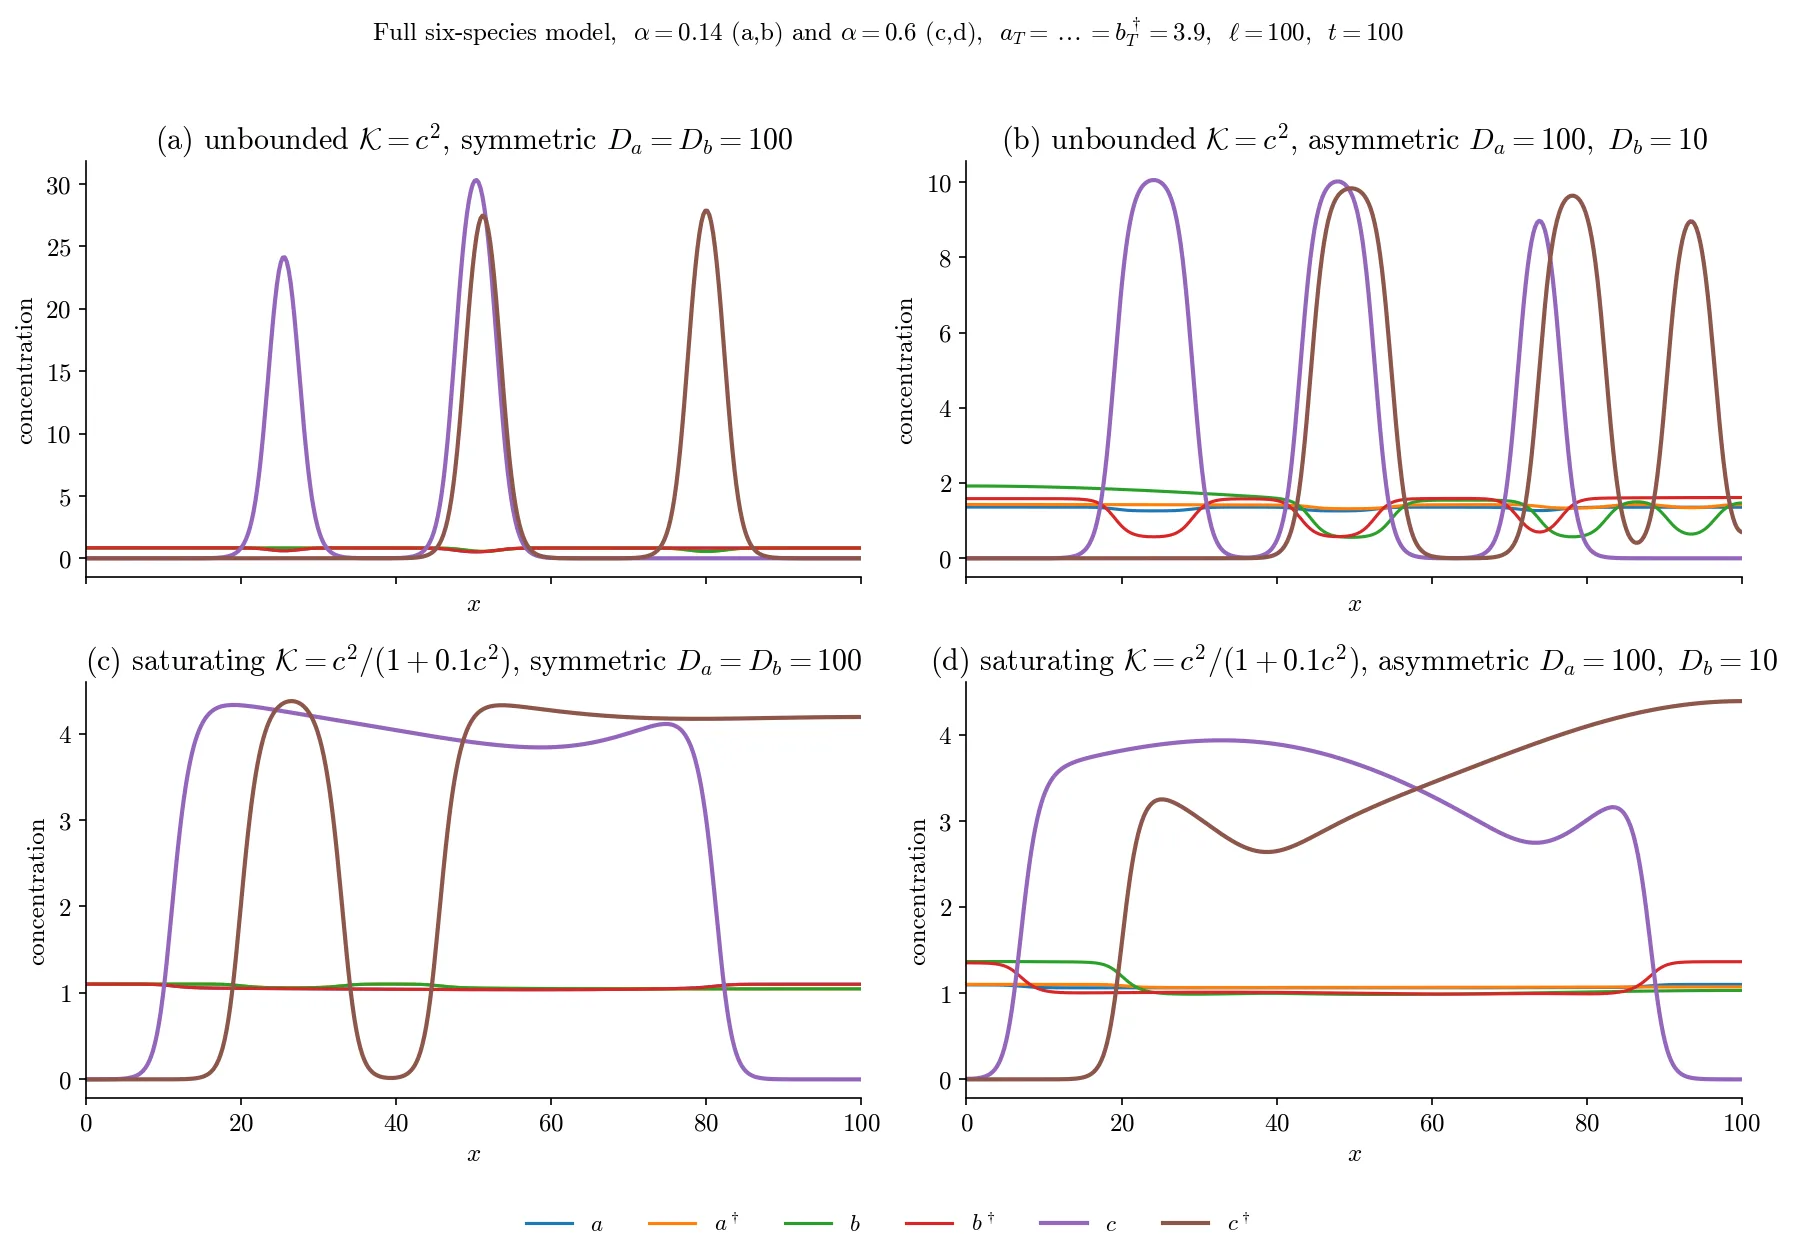
على الحدود بين خليتين، تتجمع البروتينات في بقع منفصلة، مثل قطرات الحبر على الورق. بعض القطرات تتجه في اتجاه، وبعضها في الاتجاه المعاكس. ظلَّ لفترة طويلة غير مفهوم لماذا لا تندمج هذه البقع في بقعة واحدة كبيرة، وكيف تقرر أين يقف كل منها. اتضح أن الأمر كله يعود إلى قانونين بسيطين: الكمية الإجمالية للبروتين عند التلامس ثابتة، والتفاعل بين البقع يعتمد على اتجاهها.
تخيل خزانين من الحبر يقفان على جانبي ملتقى الخلية. يتدفق منهما نوعان من المونومرات (monomers): سريعة ومتحركة. عندما تلتقي، تُشكِّل مجمعات لزجة لا تتحرك تقريبًا. إذا تكاثرت المجمعات، تبدأ في جذب المزيد من المونومرات إليها، وهذا ما يُسمى بالتغذية الراجعة التجميعية (clustering feedback). ونتيجة لذلك، يفقد التوزيع المتجانس للبروتين استقراره، وتظهر نقاط منفصلة. لكن المهم هنا: إذا كانت النقطتان بنفس الاتجاه، فإنهما تندمجان دائمًا ببطء في نقطة واحدة. لذلك، فإن عدد النقاط التي نراها ليس محددًا مسبقًا، بل يتحدد بالوقت المنقضي منذ تكوّنها.
الآن أضف القانون الثاني: لنجعل المجمعات ذات الاتجاه الواحد تُسرِّع تفكك المجمعات ذات الاتجاه المعاكس. عندها تبدأ البقع ذات «اللون» المختلف في التنافر والتباعد في اتجاهين متعاكسين. هذا يحوِّل التجميع العشوائي إلى فرز: في أحد طرفي التلامس تتجمع مجمعات باتجاه واحد، وفي الطرف الآخر مجمعات بالاتجاه الآخر. والأكثر إثارة للدهشة: التحكم في عدد البقع وفصلها حسب الاتجاه هما آليتان مستقلتان. يمكن للخلية أن تضبطهما بشكل منفصل، مثل فنان يقرر أولاً عدد القطرات التي سيضعها، ثم أيُّها ستتجه يسارًا وأيُّها يمينًا.
هكذا يفسر نموذج بسيط بخزانَي حبر كيف تولد التفاعلات الجزيئية نظامًا على حدود الخلية. اليوم يساعد هذا في تفسير صور تجمعات البروتين تحت المجهر: بمعرفة مدى حركة المونومرات، يمكن توقع عدد النقاط وحجمها. وفي المستقبل، قد تشير القواعد نفسها إلى كيفية اختيار الخلية لاتجاه نموها، وكيف ينتقل هذا الاختيار إلى النسيج بأكمله.
عرض النقطة البروتينية الواحدة في النموذج شامل: لا يعتمد على كمية البروتين ولا على قوة التغذية الراجعة، بل يحدده فقط انتشار المعقد ومعدل تحلله. هذا يشبه كيفية أن عرض الازدحام المروري لا يعتمد على عدد السيارات، بل على سرعة استجابة السائقين.