التجميع مقابل الفرز: كيف تتجمع البروتينات في نقاط على موضع التلامس الخلوي ✛
السياق
الاستقطاب الخلوي المستوي هو آلية أساسية تحدد اتجاه الخلايا في الأنسجة. يسبقه تجميع البروتينات القطبية في مجالات غشائية منفصلة (نقاط) ذات دوران منخفض. ومع ذلك، فإن التفاعلات الدنيا التي تنشئ النقاط وتحدد عددها وتفصل الاتجاهات المتعاكسة ظلت غير واضحة. النماذج الحالية وصفت بشكل أساسي المحاذاة والتنسيق على مستوى الخلايا والأنسجة، معتبرة كل تلامس كخليط جيد، وبالتالي لم تستطع حل النقاط نفسها. تقع هذه الدراسة عند التقاطع مع أبحاث أنظمة التفاعل-انتشار الحافظة للكتلة، حيث تُعرف آليات تثبيت الموجات والاندماج، لكن لم تُؤخذ في الاعتبار خزانان مستقلان من المونومرات وفرز الاتجاهات. وهكذا، تملأ المقالة الفجوة بين المقياس الجزيئي للنقاط والقطبية النسيجية، مقترحة نموذجًا أدنى يربط بين التجميع والفرز.
المنهجية
يبني المؤلفون نموذج تفاعل-انتشار أحادي البعد على موضع التلامس الخلوي بشروط عدم تدفق عند الأطراف. نوعان من المونومرات (A وB) ينتشران بسرعة ويرتبطان عكسيًا عبر التلامس لتكوين معقدات عابرة باتجاهين (C وC†)، والتي تنتشر ببطء. تدخل التغذية الراجعة فقط من خلال معدلات تعتمد على التركيز: التغذية الراجعة التجميعية K(c) تعزز الارتباط في وجود المعقدات، بينما التعديل المتبادل V(c†) يغير تحلل المعقدات اعتمادًا على تركيز الاتجاه المعاكس. يُنظر في شكلين لـ K(c): غير محدود (c²) ومشبع (c²/(1+ρc²)). يتم تطبيع النظام، ويتضمن التحليل الاستقرار الخطي للحالة المتجانسة، وتقارب المونومرات السريعة لنقطة واحدة، وطرق طيفية لمصفوفات النقاط، ومحاكاة عددية بطريقة الفروق المحدودة بنظام شبه ضمني.
النتائج
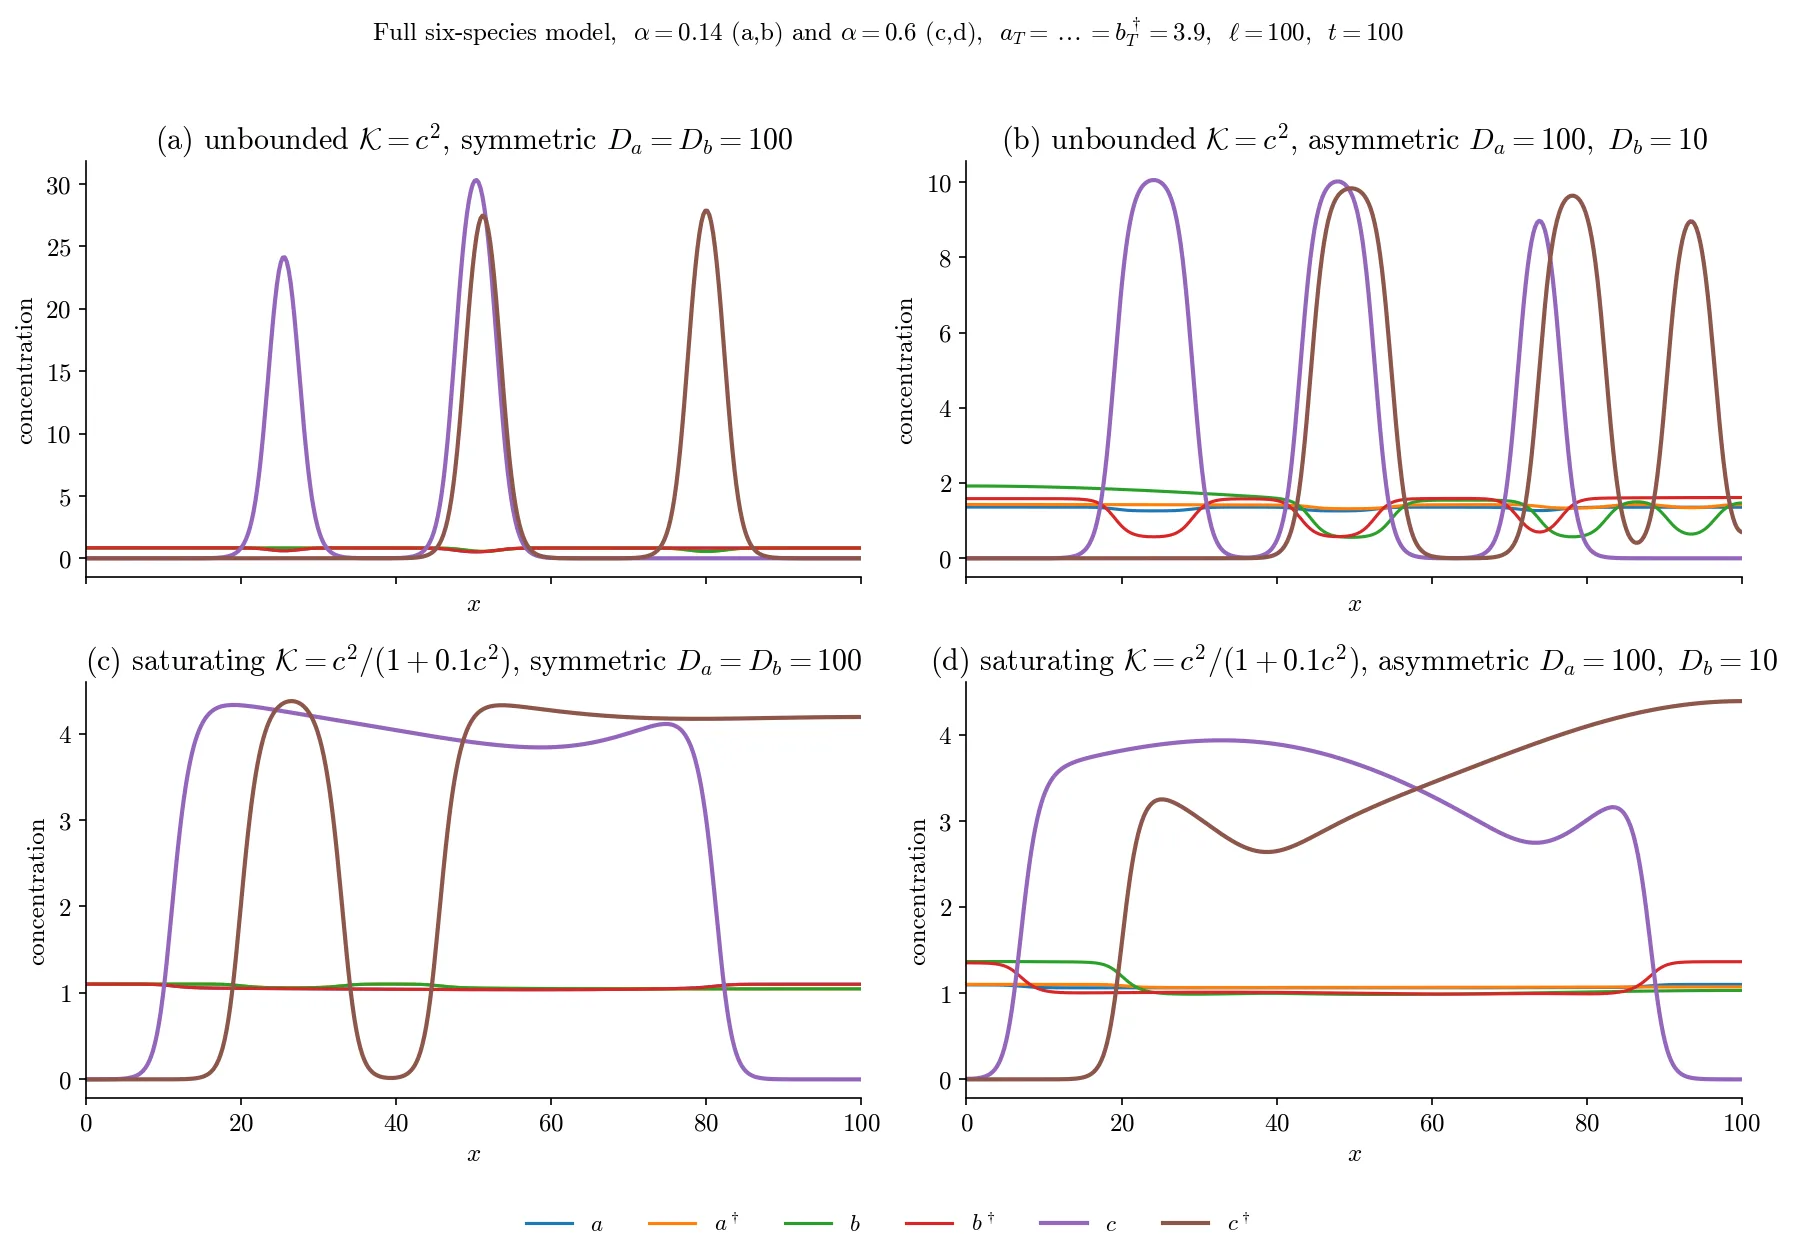
تفقد الحالة المتجانسة استقرارها عبر نمط طويل الموجة لإعادة توزيع الكتلة بشرط أن تنتشر المونومرات أسرع من المعقد وأن تكون التغذية الراجعة التجميعية قوية بما يكفي. للتغذية الراجعة غير المحدودة، تظهر قمم ضيقة بسعة cmax = 3/(2αāƀ)، وعرض نصف أقصى شامل 4 arccosh(√2) ≈ 3.53، ومسافة تحددها طول فحص المونومرات. للتغذية الراجعة المشبعة، تتشكل هضاب عريضة، ويحدد موضع جبهتها بناء ماكسويل (Maxwell construction). ثبت أن أي مصفوفة من النقاط ذات الاتجاه الواحد غير مستقرة وتندمج إلى نقطة واحدة؛ سرعة الاندماج لقمّتين تساوي λcomp = αā³D/(3ℓ) في الحالة المتماثلة، وعندما تكون انتشارات المونومرات غير متساوية، تُحدد بالمتوسط التوافقي لمعاملات انتشارها. طيف النقطة الواحدة لا يحتوي على عدم استقرار تذبذبي، أي أن النقاط لا تومض. إدخال تعديل متبادل موجب V′ > 0 يحول التجميع إلى فرز: النقاط المتعايشة ذات الاتجاهات المتعاكسة تتباعد بسرعة λpol = 8V′cmax/7، ومعيار الفرز لا يعتمد على شكل التغذية الراجعة التجميعية.
الأهمية
تختلف هذه الدراسة عن الأبحاث المجاورة بأنها تدرس لأول مرة معقدًا عابرًا مع خزانين مستقلين محفوظين من المونومرات وتربط تحليليًا بين التجميع وفرز الاتجاهات. على عكس النماذج التي إما تتجاهل البنية المكانية على المستوى دون الخلوي أو تعتبر نوعًا واحدًا محفوظًا فقط، يُظهر هنا أن وجود خزانين يؤدي إلى قانون جديد للمنافسة عبر المتوسط التوافقي للانتشارات. بالإضافة إلى ذلك، تقدم الدراسة معيارًا دقيقًا للفرز يعتمد فقط على إشارة التعديل المتبادل، وهو ما لم يُحدد سابقًا للنقاط المكتملة التكوين. وهذا يسمح بفصل التحكم في عدد النقاط وفصلها الاتجاهي إلى مكونات مستقلة رياضيًا.
التطور المستقبلي
يمكن أن يتطور الموضوع نحو تضمين لاعبين جزيئيين صريحين واشتقاق دوال التغذية الراجعة من حركية الفسفرة والالتقام الخلوي. اتجاه آخر هو الانتقال من تلامس واحد إلى خلية كاملة، حيث يلزم ربط التلامسات عبر خزانات مشتركة وإدخال انحياز يختار الاتجاه السائد على كل حافة. ومن المثير أيضًا إيجاد أقل خرق لحفظ الكتلة من شأنه تثبيت مصفوفات منتظمة من النقاط مع الحفاظ على آلية الفرز.
التأثير
يمكن تطبيق النموذج على تحليل بيانات التصوير لتجمعات البروتين على مواضع التلامس الخلوي، خاصة للتنبؤ باعتماد عدد النقاط وحجمها على حركية المونومرات. كما يوفر أساسًا لبناء نماذج أكثر تفصيلاً للقطبية المستوية تربط بين المقياس الجزيئي والخلوي.
الخطوات التالية
الخطوة التالية هي تطوير نسخة فيزيائية حيوية آلية من النموذج بمكونات جزيئية صريحة، حيث تُشتق المعدلات K وV من حركية الفسفرة والالتقام الخلوي. ثم يلزم دراسة كيفية انتقال التنظيم الذاتي الجزيئي للنقاط إلى مستوى القطبية الخلوية عبر ربط التلامسات وكسر التناظر.
المسائل المفتوحة الرئيسية
ترتبط الدراسة مباشرة بالمشكلة غير المحلولة حول كيفية توليد التفاعلات الجزيئية لبنى دون خلوية مستقرة وكيفية تنسيق هذه البنى على مستوى النسيج. في علم الأحياء الخلوي، يبقى السؤال مفتوحًا حول المكونات الدنيا الكافية لتكوين وصيانة تجمعات البروتين ذات الدوران المنخفض، وكيف تساهم هذه التجمعات في توليد عدم تماثل خلوي. يُظهر هذا النموذج أن حفظ الكتلة وإشارة التنظيم المتبادل هما عاملان رئيسيان، لكن الفهم الكامل يتطلب قياسات تجريبية للمعلمات واختبار التنبؤات حول الاختيار الحركي لعدد النقاط.
نظرة آلة المعرفة
هذا القسم موجَّه إلى مؤلف العمل وزملائه. الأعمال المجاورة عثر عليها بحثٌ دلالي في أرشيفنا، لا بتطابق الكلمات. نحن لا نقيّم العمل: نعرض الحقل من حوله.
ماذا يفعل هذا العمل
يبني العمل نموذجًا أحادي البعد للتفاعل والانتشار مع حفظ الكتلة لتجميع بروتينات الاستقطاب الخلوي المستوي في نقاط على التماس الخلوي. يشمل النموذج نوعين من المونومرات التي ترتبط عكسيًا لتكوين معقدات عابرة باتجاهين، مع تغذية راجعة عبر معدلات تعتمد على التركيز. يُظهر العمل أن التجميع ينشأ عبر نمط طويل الموجة لإعادة توزيع الكتلة، وأن شكل النقاط يعتمد على شكل التغذية الراجعة، وأن مصفوفات النقاط ذات الاتجاه الموحد غير مستقرة، وأن التعديل المتبادل لدورة المعقدات يؤدي إلى فرز الاتجاهات.
أين تكمن قوته
فصل التجميع والفرز إلى مكونات مستقلة رياضيًا (التغذية الراجعة المُجمِّعة K(c) والتعديل المتبادل V(c†)) هو نتيجة قوية تسمح بدراسة هذه العمليات بشكل منفصل. كما أن الاستنتاج حول التحديد الحركي لعدد النقاط وليس الموجي يعد قيمًا، إذ يربط النموذج بالتباين الفعلي للنقاط.
إلى أين يمكن المضي
- قد يكون من المثير للاهتمام النظر في كيفية ارتباط آلية التجميع المقترحة بالديناميكيات المرصودة لبروتينات الاستقطاب المستوي في الأنسجة الحية: يوجد في الأرشيف بجانب هذا تحليل لعمل حول كيفية بناء الخلايا لحدود النمو، حيث يُنظر في التنظيم المكاني للبروتينات في التماسات الخلوية.استنادًا إلى: كيف تبني الخلايا حدود النمو arXiv:2603.28630
- بجانب هذا هناك فكرة: في عمل حول كيفية اختيار الخلايا لشكل الجسم، تُناقش دور الاستقطاب المستوي في التخلق الشكلي؛ ربما يمكن دمج نموذج التجميع الخاص بك في وصف أوسع نطاقًا لاستقطاب الأنسجة لربط النقاط الجزيئية بالتنسيق الخلوي.استنادًا إلى: كيف تختار الخلايا شكل الجسم arXiv:2603.07082
- يوجد في الأرشيف تحليل لعمل حول كيفية ثني البروتينات للغشاء؛ وبما أن تجميع البروتينات القطبية قد يؤثر على الانحناء الموضعي للغشاء، فربما ينبغي النظر في الاقتران بين آلية التجميع وتشوه الغشاء.استنادًا إلى: البروتينات تثني الغشاء كما تثني الملعقة الغشاء الرقيق على الحليب arXiv:2601.15477
يستحق التجربة
- اختبار ما إذا كان فصل التجميع والفرز يظل قائمًا عند إدخال ارتباط ضعيف بينهما، على سبيل المثال عبر اعتماد K على كلا الاتجاهين.
- تجربة النموذج على هندسة ثنائية الأبعاد للتماس الخلوي لمعرفة كيف تتغير أشكال النقاط ومواقعها عند مراعاة الهندسة الحقيقية.
- مقارنة العلاقة المتوقعة بين عدد النقاط وكثافة البروتينات بالبيانات الكمية للنقاط في خلايا بمستويات تعبير مختلفة من بروتينات الاستقطاب.
لماذا قد يكون هذا مهمًا
إذا تأكدت الآلية المقترحة للتجميع والفرز في الأنظمة البيولوجية، فستوفر أساسًا بسيطًا لفهم كيفية توليد التفاعلات الجزيئية على التماس الخلوي لاستقطاب الأنسجة، وقد تساعد في تفسير الطفرات التي تعطل النقاط.
أعمال قريبة في أرشيفنا
- كيف يكشف الضوء ألياف الأنسجةالتقارب 0.54
- كيف تجمع الخلية نسخًا من الحمض النووي بسرعةالتقارب 0.52
- الضوء يلتف داخل الورمالتقارب 0.51
- كيف تبني الخلايا حدود النموالتقارب 0.51
- كيف تختار الخلايا شكل الجسمالتقارب 0.50
- البروتينات تثني الغشاء كما تثني الملعقة الغشاء الرقيق على الحليبالتقارب 0.50
الأرشيف خالٍ حول هذا العمل: أقرب تحليل عند 0.54 فقط، مقابل 0.64 المعتادة. يبدو أن الحفر بجواره كان نادرًا.
عرض النقطة البروتينية الواحدة في النموذج شامل: لا يعتمد على كمية البروتين ولا على قوة التغذية الراجعة، بل يحدده فقط انتشار المعقد ومعدل تحلله. هذا يشبه كيفية أن عرض الازدحام المروري لا يعتمد على عدد السيارات، بل على سرعة استجابة السائقين.
أرقام رئيسية
- العرض الشامل للنقطة: 3.53 (بوحدات طول انتشار المعقد)
- الكثافة الحرجة للتغذية الراجعة غير المحدودة: nf = 1.5*(12/(αℓ))^(1/3)
- معامل انجراف النقطة عند التلامس: 8/7
- معامل انجراف النقطة بعيدًا: 5
- سرعة اندماج ثماني نقاط مقارنة بنقطتين: أسرع بعشر مرات