إنزيم-ساعي في هلام كثيف: من يحدد الإيقاع ✛
الأصل: "Simultaneous measurements of enzyme propagation and biopolymer mobility elucidate the directional degradation of a dense biopolymer matrix"
arXiv:2609.03792v1 · 2026-09-03 · CC BY 4.0 · 1 دقيقة
التصوير المتزامن لحركة الإنزيم وتفكك الهلام أظهر أن سرعة العملية لا يحددها الانتشار، بل التلاشي البطيء لنشاط الإنزيم.

ساعي يحمل طرداً يدخل غابة كثيفة من الحبال المتشابكة. عليه أن يوصل الحمولة إلى العمق، لكنه يفقد قوته في الطريق، ويصبح كل خطوة أصعب من سابقتها. هكذا يبدو الإنزيم الذي يفكك هلاماً كثيفاً من الجزيئات البيولوجية. حتى وقت قريب، لم يستطع أحد أن يرى في الوقت نفسه كيف يتحرك الساعي وكيف تخلخل الغابة.

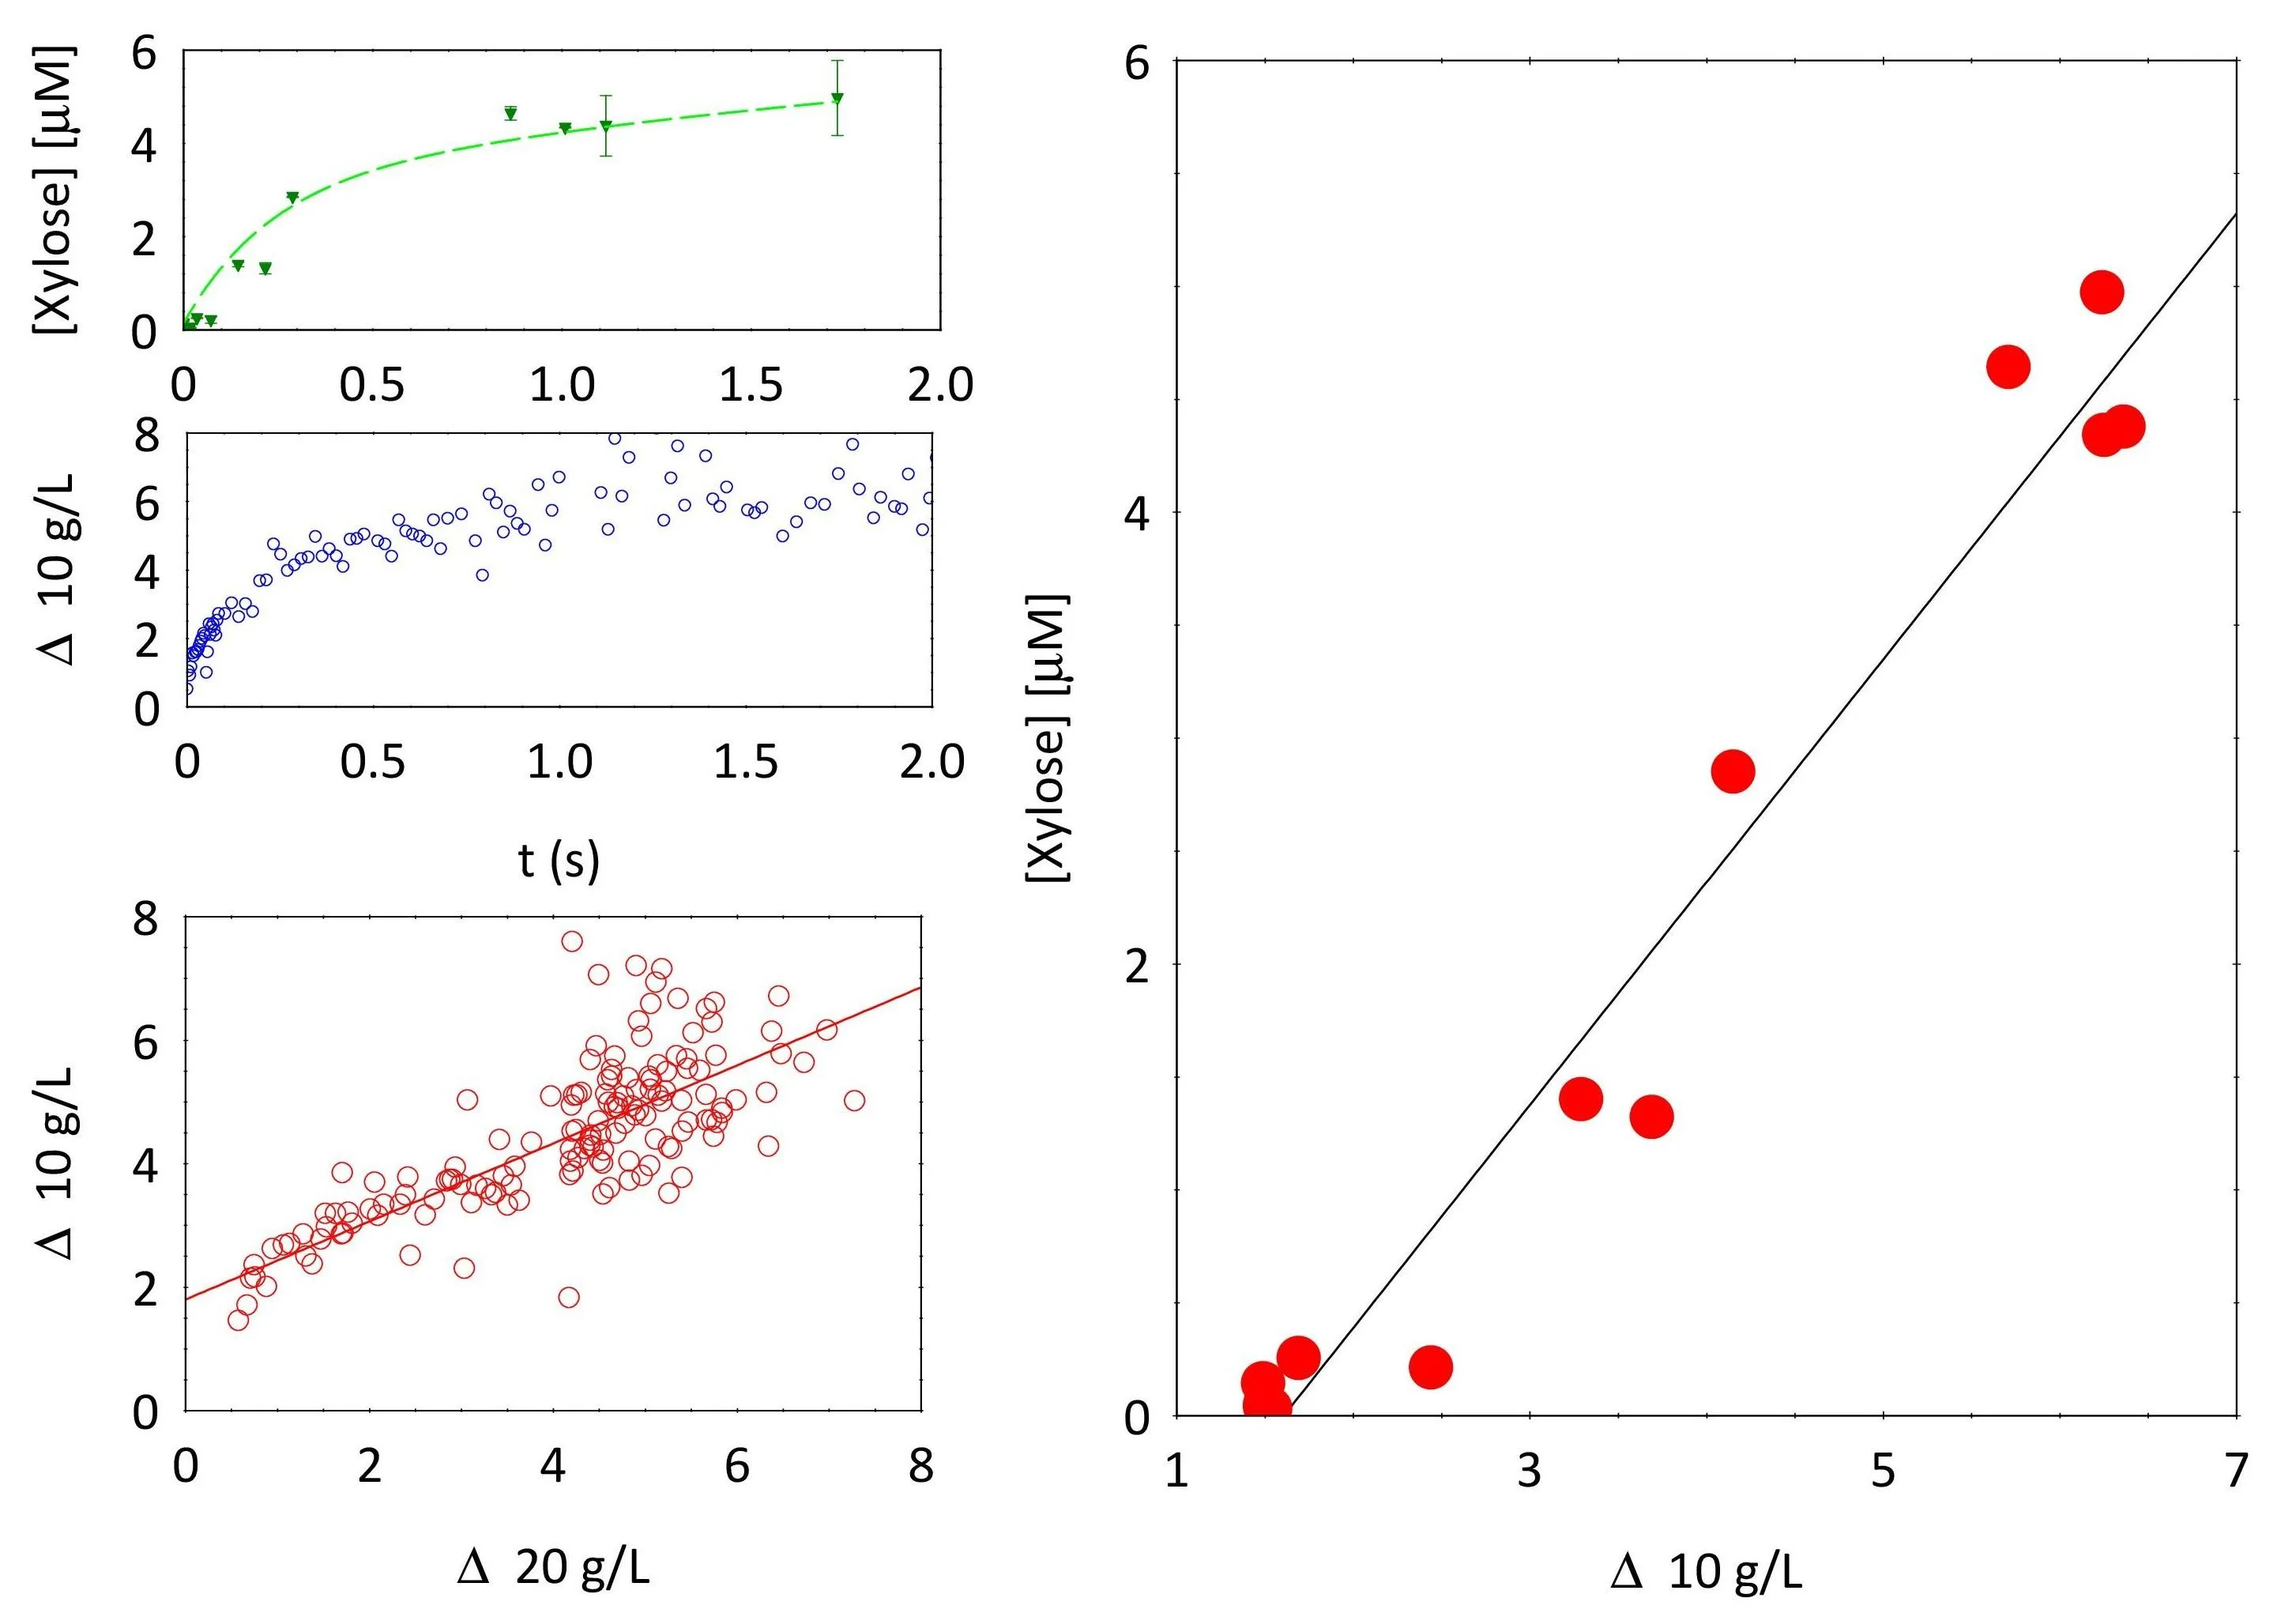
جهاز Fluo-PCI صوّر المشهدين معاً لأول مرة: ورقة ليزر أضاءت العينة، وكاميرا راقبت وميض الضوء لتعطي حركة السلاسل البوليمرية، بينما التقطت أخرى توهج الإنزيم الموسوم.

اتضح أن الساعي يمشي بالسرعة نفسها، بغض النظر عن مدى قوته أو كثافة الغابة. سرعة حركته لا يحددها سوى الحركة الحرارية للجزيئات. لكن الحدود حيث سقطت الأشجار بالفعل تتقدم أبطأ مما قد يتوقعه المرء من مجرد اختراق الساعي.

السبب هو أن الساعي ينهار تدريجياً. ينخفض نشاطه وفق أُسّين (exponentials): جزء كبير من القوة يُفقد بسرعة، بينما جزء صغير يبقى لفترة طويلة. هذا التلاشي البطيء، وليس سرعة المشي، هو ما يحدد سرعة ذوبان الغابة.

نموذج مبني على معادلة ميكايليس-مينتن مع إضافة نشاط متضائل أعاد إنتاج جميع الخرائط التجريبية بدقة. بالنسبة لطافر (mutant) ذي قوة ضعيفة، كان أُسّ واحد كافياً.

كان يُعتقد سابقاً أن تفكك الهلام قد يسرّع حركة الإنزيم، لكن هذا لم يحدث هنا. الساعي لا يحصل على رياح مواتية من عمله. الآن، بعد قياس العمليتين معاً، يمكن حساب كمية الإنزيم ونوعه المطلوبين بدقة أكبر لتحويل الكتلة الحيوية إلى وقود أو لإيصال دواء إلى نقطة محددة في الجسم.

الأس 0.5 في قانون حركة الجبهة للإنزيم البري أوحى في البداية بالتحكم الانتشار البحت، لكن البيانات من الطافر بأس 0.7 والمحاكاة أظهرت أن هذا مجرد صدفة: في الواقع، تتباطأ الجبهة بسبب الفقدان التدريجي لنشاط الإنزيم.

f(t) = \chi \exp(-k_\alpha t) + (1-\chi) \exp(-k_\beta t)
تتناقص نسبة الإنزيم النشط وفق مجموع دالتين أسيتين: مكون سريع بثابت k_α ومكون بطيء بثابت k_β، وتحدد χ أوزانهما.
\frac{d\Delta(z,t)}{dt} = \frac{k_{cat}}{A} E(z,t) f(t) \frac{C - \Delta(z,t)}{(K_m/A) + C - \Delta(z,t)}
معدل زيادة حركة البوليمر Δ عند نقطة z يعتمد على التركيز المحلي للإنزيم E، ونسبة الإنزيم النشط f(t)، وتشبع الركيزة الموصوف بثابت ميكايليس K_m.
\Delta(z,t) - \frac{K_m}{A} \ln\left(\frac{C - \Delta(z,t)}{C}\right) = \frac{k_{cat}}{A} \Phi(z,t)
تحدد الحركة Δ بالتكامل Φ لحاصل ضرب تركيز الإنزيم في عامل النشاط عبر الزمن، مما يعطي منحنى عامًا لجميع الأعماق.
المفاهيم
إنزيم الانجذاب الكيميائي ديناميكا سباحة الكائنات الدقيقة تعبير جيني بروتين غشاء حيوي اكتشاف الأدوية انتشار انقسام الخلية جزيء حيوي مؤشر حيوي المعلوماتية الحيوية معادلة ميكايليس-مينتن نموذج وبائي انتقال طاقة حركة جماعية ميكروبية طي البروتين نقل الإلكتروليت ديناميكا عشوائية بيولوجية