Одноклеточная линза: как водоросль путает свет и тень экспресс
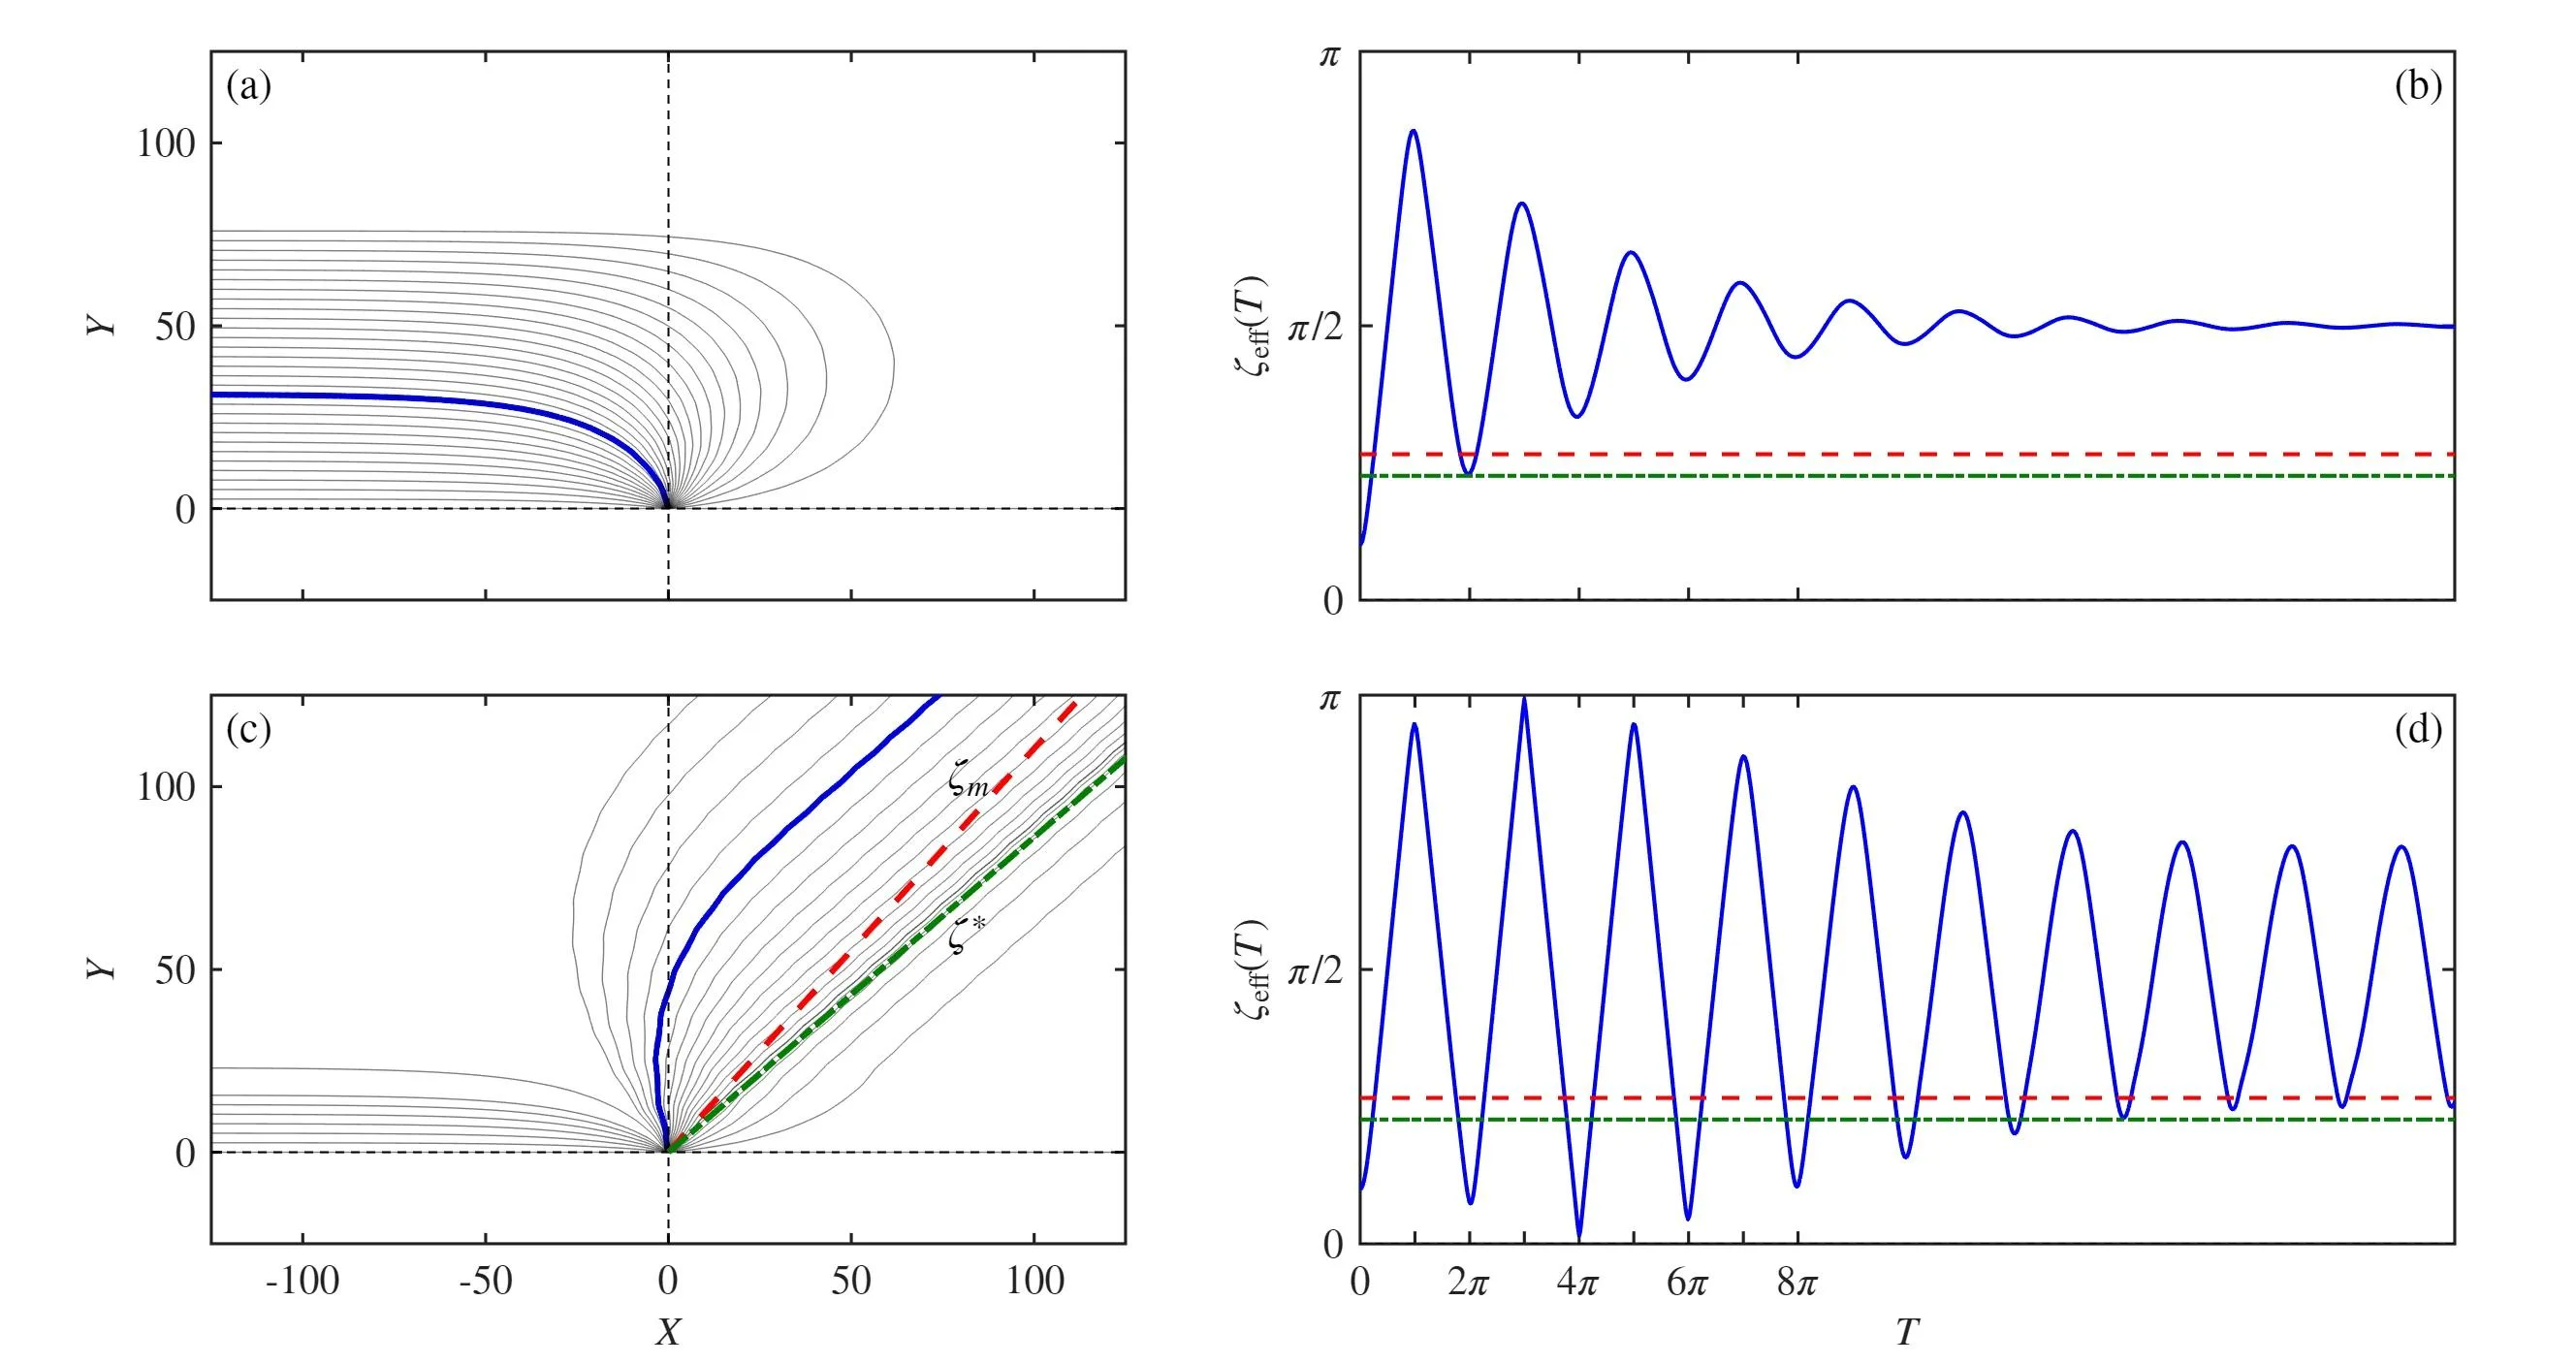
Крошечная зелёная водоросль хламидомонада всю жизнь гребёт двумя жгутиками к свету, как пловец к берегу. Свет она чувствует белком-фоторецептором, а позади него лежит красное пятнышко — «глазок», который отбрасывает тень и помогает понять, откуда свет идёт. Но у мутантов без этого пятнышка поведение переворачивается: они уплывают от света, хотя белок на месте. Почему?
Десять лет назад заметили: круглое тельце водоросли само работает как увеличительное стекло. Свет, проходя сквозь клетку, собирается в яркую точку позади неё, как солнечный зайчик от стеклянного шарика. У обычной водоросли глазок эту точку загораживает, а у мутанта она бьёт прямо в фоторецептор сзади. Получается два сигнала: слабый прямой свет спереди и сильный сфокусированный сзади. Водоросль вертится вокруг своей оси, и сигналы сменяют друг друга.
Клетка реагирует не на силу света, а на скорость его изменения — как человек, который дёргается от резкого шороха, а не от ровного гула. Резкий сфокусированный сигнал перебивает плавный прямой, и жгутики получают команду «греби от света». Так мутант без глазка плывёт в противоположную сторону. Модель предсказывает и другое: при определённых условиях водоросль может колебаться между двумя направлениями, как маятник, не решая, куда плыть. Это можно проверить, следя за одиночными клетками под микроскопом.
Так простая линза внутри живой клетки превращается в переключатель поведения. Ошибка в одном пигментном пятнышке — и вся навигация идёт вразнос, как компас, у которого перепутали север и юг.
Оригинальная аннотация
как её написали авторы, на английском arXiv:2603.10986
Phototaxis of many species of green algae relies upon directional sensitivity of their membrane-bound photoreceptors, which arises from the presence of a pigmented "eyespot" behind them that blocks light passing through the cell body from reaching the photoreceptor. A decade ago it was discovered that the spherical cell body of the alga $$Chlamydomonas~reinhardtii$$ acts as a lens to concentrate incoming light, and that in "eyeless" mutants of $$Chlamydomonas$$ the consequence of that focused light reaching the photoreceptor from behind is a reversal in the sign of phototaxis relative to the wild type behavior. We present a quantitative theory of this sign reversal by completing a recent simplified analysis of lensing [Yang, et al., Phys. Rev. E 113, 022401 (2026)] and incorporating it into an adaptive model for $$Chlamydomonas$$ phototaxis. This model shows that phototactic dynamics in the presence of lensing is subtle because of the existence of internal light caustics when the cellular index of refraction exceeds that of water. During each period of cellular rotation about its body-fixed axis, the photoreceptor receives two competing signals: a relatively long, slowly-varying signal from the direct illumination, and a stronger, shorter, rapidly-varying lensed signal. The reversal of the sign of phototaxis is then a consequence of the dominance of the flagellar photoresponse to the signal with the higher time derivative. These features lead to a quantitative understanding of phototaxis sign reversal, including bistability in the direction choice, a prediction that can be tested in single-cell tracking studies of mutant phototaxis.
Хламидомонада — один из самых быстрых пловцов среди одноклеточных: она может проплыть за секунду расстояние в десять раз больше собственной длины.