La brújula entrópica de las enzimas: cómo la información fluye hacia el centro activo
Contexto
La comunicación alostérica, es decir, la forma en que una proteína transmite una señal de un punto a otro, es la base de la regulación de la actividad enzimática. Junto a este trabajo hay en el archivo estudios que vinculan la topología de redes con la dinámica: unos analizan el entrelazamiento y los flujos de información en sistemas complejos, otros aplican el análisis entrópico a datos climáticos y otros estudian los saltos de electrones en materiales desordenados. Todos ellos, igual que este artículo, buscan principios universales de transmisión de información en redes. El presente trabajo destaca porque traslada ese enfoque al nivel molecular y lo pone a prueba en siete enzimas reales, no en sistemas modelo.
Métodos
Los autores usaron dos métodos complementarios. El primero es el modelo dinámico gaussiano de red (dGNM): la proteína se reduce a una red de átomos de carbono alfa unidos por resortes, y a partir de las correlaciones temporales de las fluctuaciones se calcula la transferencia de entropía de un residuo a otro. El segundo es la centralidad de la información (IC): se apoya solo en el grafo de contactos (la matriz de Kirchhoff) y calcula hasta qué punto cada residuo puede actuar como nodo informativo, sin dinámica temporal. Ambos métodos se aplicaron a siete enzimas: TIM-Barrel, lisozima humana, ribonucleasa A1, pepsina, beta-lactamasa, glucoquinasa humana y anhidrasa carbónica II.
Resultados
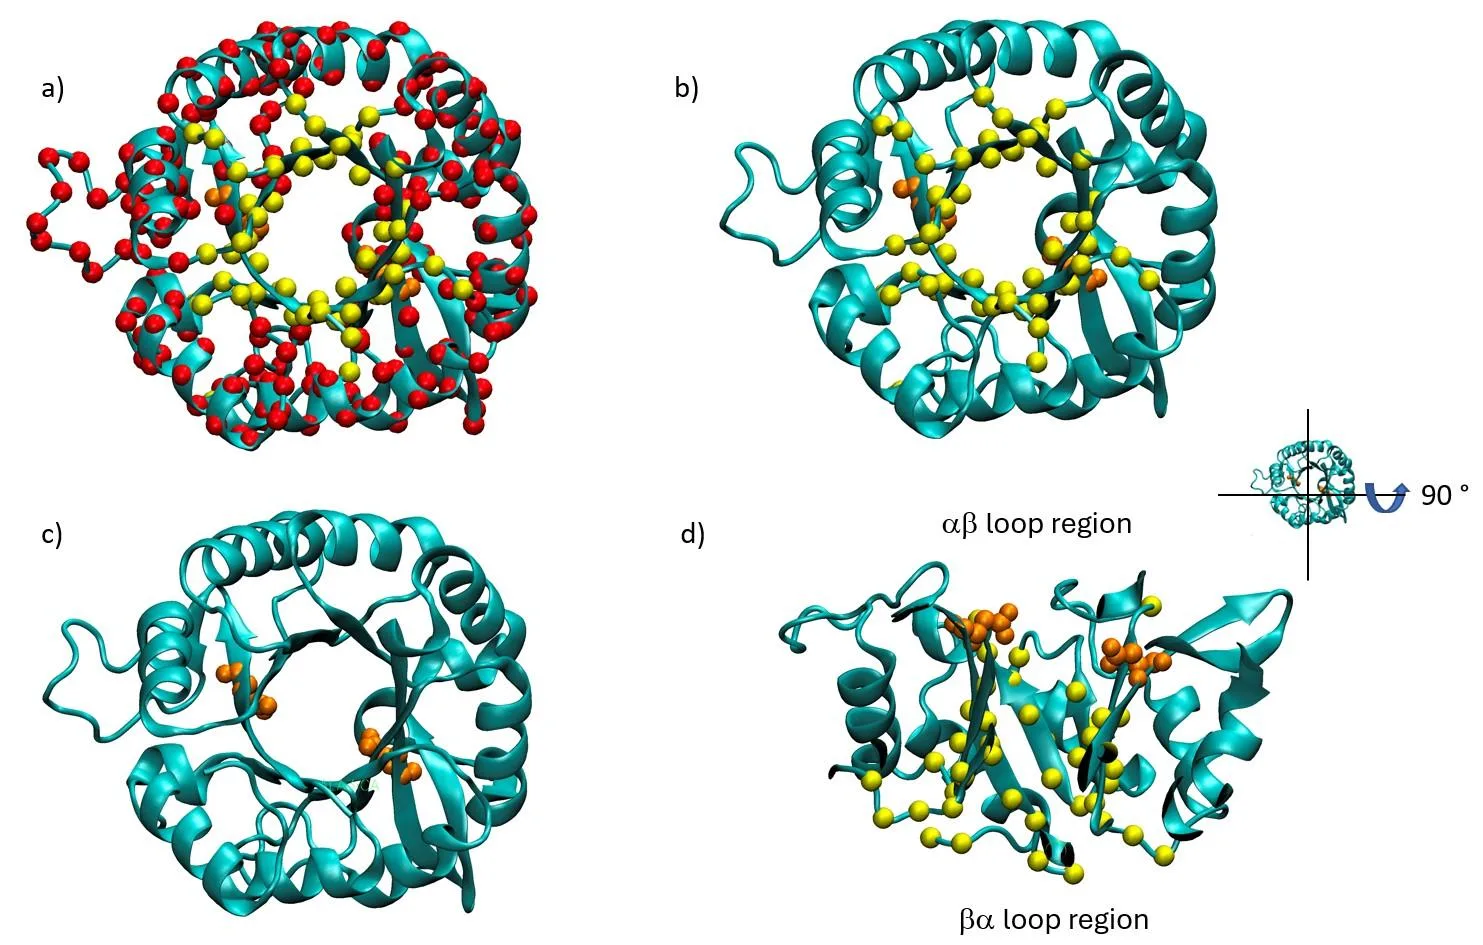
En las siete enzimas apareció el mismo gradiente: los residuos de la periferia de la molécula son los mejores donantes de entropía y los residuos cercanos al sitio catalítico, los peores. Por ejemplo, en TIM-Barrel los 177 mejores donantes se sitúan en la superficie externa y los 72 peores, en la zona central, junto a los residuos catalíticos Asp130 y Asp11. En términos numéricos, esto se traduce en que la transferencia total de entropía desde los nodos periféricos hacia el resto es bastante mayor que desde los nodos próximos al centro activo. La comparación de los dos métodos mostró que coinciden: la centralidad de la información, calculada solo con la topología, señala los mismos residuos que la transferencia dinámica de entropía. Esto significa que la dirección del flujo de información está codificada en la propia estructura de la red de contactos y no es solo consecuencia de la dinámica.
Implicaciones
El trabajo se distingue de los estudios vecinos porque aplica el análisis entrópico no a redes abstractas ni a datos climáticos, sino a moléculas biológicas concretas, y comprueba la hipótesis en siete enzimas diferentes. Mientras que en los trabajos cercanos los flujos de información se estudian de forma general, aquí se demuestra que la topología del grafo de contactos basta para predecir la dirección de la comunicación alostérica. Esto reduce el costo computacional y abre el camino a un cribado rápido de proteínas en busca de propiedades alostéricas.
Desarrollo futuro
El tema puede avanzar hacia el estudio de cómo los cambios conformacionales a lo largo del ciclo catalítico influyen en el flujo entrópico. Quizá se logre relacionar las medidas topológicas con eventos alostéricos concretos, por ejemplo, la unión de un ligando. También es prometedor aplicar estos métodos al diseño de nuevas enzimas con propiedades reguladoras a medida.
Impacto
Los resultados pueden influir en la ingeniería de proteínas y en el desarrollo de fármacos dirigidos a sitios alostéricos de enzimas.
Próximos pasos
El siguiente paso es comprobar cómo los cambios conformacionales y la unión del sustrato modifican el gradiente de entropía en las enzimas elegidas.
Problemas abiertos clave
El trabajo se conecta con un problema no resuelto de la bioquímica: cómo codifica exactamente la estructura tridimensional de una proteína las rutas de comunicación alostérica. Se demuestra que la topología de la red de contactos basta para determinar la dirección del flujo, pero queda abierta la pregunta sobre el papel de los eventos dinámicos concretos en el ciclo catalítico.
TIM-Barrel es uno de los plegamientos proteicos más comunes de la naturaleza: aparece en al menos 15 familias distintas de enzimas, desde bacterias hasta seres humanos.
Cifras clave
- número de enzimas estudiadas: 7
- cantidad de residuos en TIM-Barrel: 249
- mejores donantes de entropía en TIM-Barrel: 177
- peores donantes de entropía en TIM-Barrel: 72
- retardo temporal en dGNM: 1.2 ps