Marcher au métronome : quand le rythme efface la mémoire du pas express
La pièce est silencieuse, seuls résonnent les pas et le comptage intérieur : « un-deux, un-deux ». Au bout d'une minute, la démarche se raidit, les jambes bougent comme des pistons. Dès qu'on oublie de compter et qu'on marche simplement, le corps se détend, le pas retrouve sa fluidité. La différence entre ces deux états n'est pas qu'une impression. Elle est inscrite dans les chiffres, et ces chiffres racontent comment le cerveau pilote le mouvement.
Depuis trente ans, on sait que lorsque l'on marche librement, les variations de longueur des pas dessinent un motif fractal : des ondes lentes se superposent aux rapides, et le passé influence l'avenir. On parle alors de rythme « persistant ». Mais dès qu'on allume un métronome ou qu'on demande de poser le pied sur des repères lumineux, le tableau s'inverse. Les pas semblent fuir leur propre histoire : un pas long est immédiatement suivi d'un pas court, comme si le système s'empressait de corriger l'erreur. C'est l'« anti-persistance ». Mais qu'est-ce qui la provoque exactement : une mémoire longue du système nerveux ou simplement une réaction rapide au pas précédent ? Les anciennes méthodes ne permettaient pas de trancher.
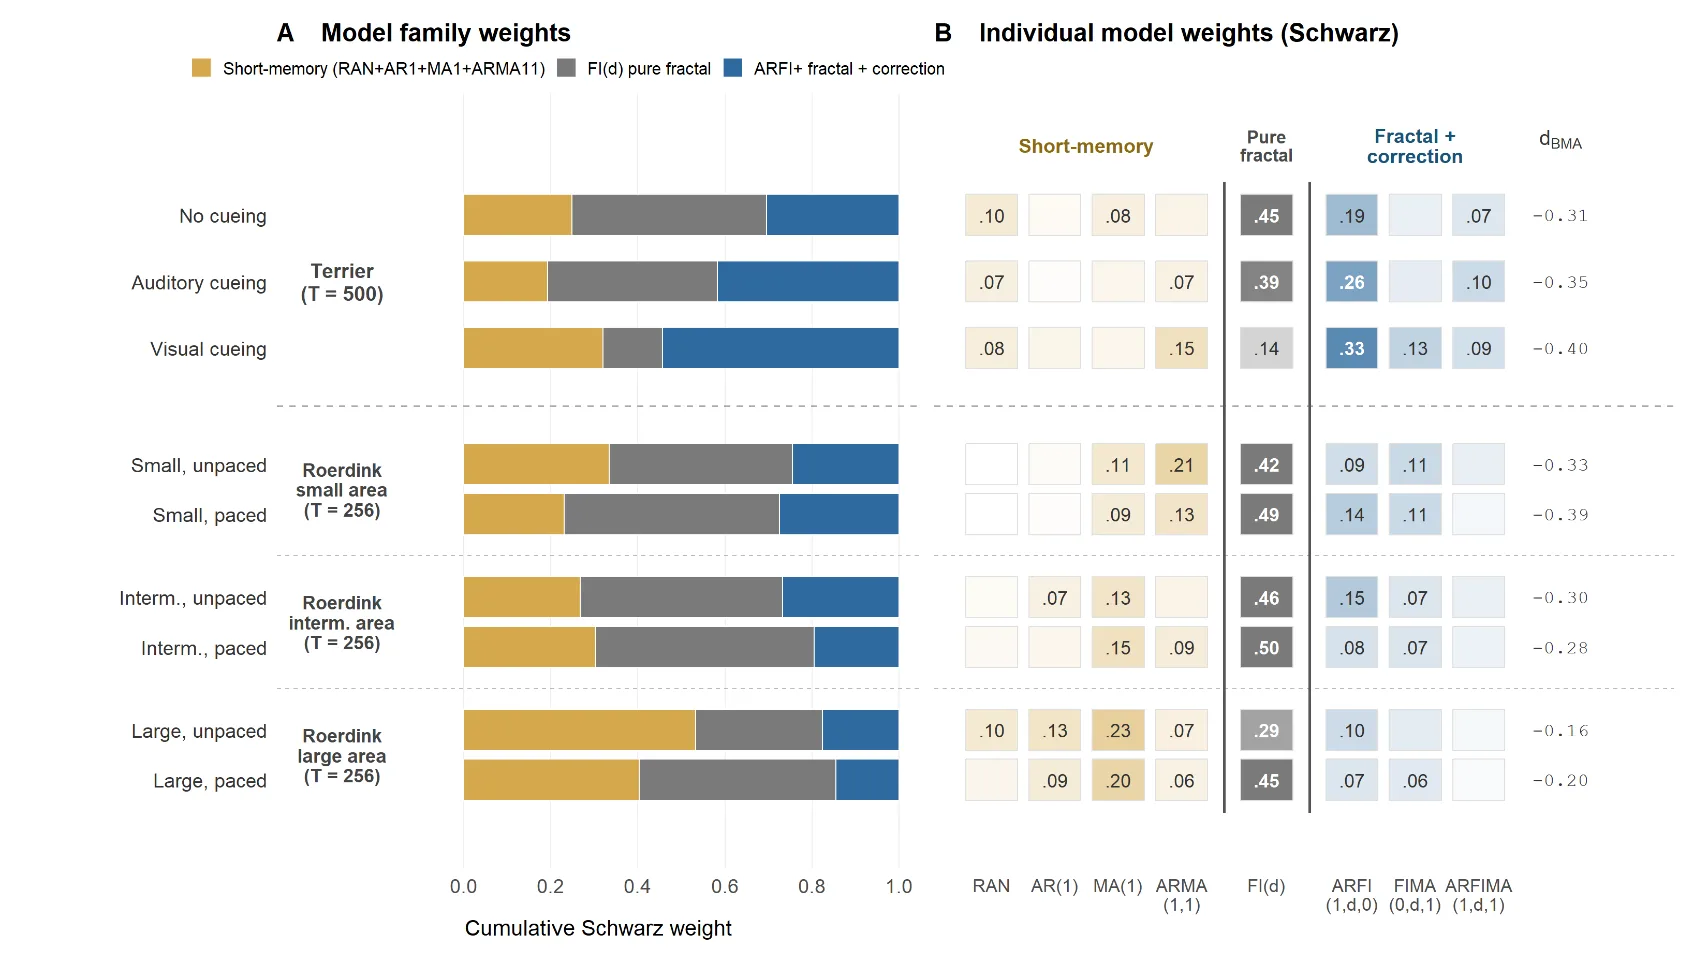
Les auteurs de ces travaux ont repris trois ensembles de données — marche au sol, sur tapis roulant, et sous signaux rythmiques — et leur ont appliqué toute une famille de modèles capables de distinguer mémoire longue et réaction courte. Résultat : l'anti-persistance sous métronome n'est pas une simple correction rapide. C'est un véritable phénomène fractal, mais de signe opposé : le cerveau ne perd pas la mémoire des pas passés, il la supprime activement. L'ancien indicateur (alpha DFA) surestimait la contribution de la mémoire longue d'un quart — il la confondait avec des corrections à court terme.
Le tableau final ressemble à trois mécanismes bien huilés. Le premier est un générateur interne qui, de lui-même, produit un motif fractal à mémoire longue. Le deuxième est une correction réactive : « oops, j'ai allongé le pas — je le raccourcis au suivant ». Le troisième est un délai incompressible, celui que met le signal pour aller du cerveau aux muscles et revenir. Ensemble, ils expliquent pourquoi, sous métronome, nous ne marchons pas comme des robots, mais comme des systèmes vivants qui se maintiennent en équilibre entre ordre et chaos.
Résumé original
tel que rédigé par les auteurs, en anglais arXiv:2604.24365
Stride-to-stride fluctuations in human walking carry a fractal correlation structure that reverses sign under external cueing: self-paced gait is persistent, whereas metronomic or visually cued gait is anti-persistent. Three decades of detrended fluctuation analysis (DFA) have established this reversal as a scaling-exponent shift, but DFA cannot distinguish genuine long-memory dynamics from short-memory autoregressive moving-average (ARMA) processes that produce the same apparent exponent. We fit the full eight-model ARFIMA(1,d,1) family to stride interval and stride speed series from three datasets (N = 70 subjects) spanning overground walking, fixed-speed treadmill walking, metronomic and visual cueing, and graded positional constraint. Model evidence is aggregated through BIC-based Schwarz weights, and the fractional differencing parameter d together with the autoregressive and moving-average coefficients phi and theta are estimated by Bayesian model averaging. Three findings emerge. (i) Long-memory specifications decisively outweigh ARMA alternatives under both persistent and anti-persistent conditions, establishing cued gait anti-persistence as a genuine fractional phenomenon. (ii) DFA alpha overestimates d + 0.5 by 0.25 to 0.34 units, a discrepancy jointly attributable to short-memory components that DFA conflates with long-memory persistence and to a finite-sample negative bias inherent to exact ML-ARFIMA estimation. (iii) The estimated (d, phi, theta) parameters are consistent with a corrective sensorimotor model in which a fractal intrinsic generator, a reactive feedback correction, and a motor-delay component together shape stride-to-stride fluctuations. Whether a single mechanistic model can account quantitatively for the observed parameter ranges across rhythmic, spatial, and unconstrained conditions is a question that the present analysis motivates but cannot alone resolve.
Si l'on marche longtemps au métronome puis qu'on l'éteint, la démarche conserve encore quelques minutes un patron anti-persistant — le cerveau a besoin de temps pour revenir à son mode habituel.
Dans le roman « Le Blindsight » de Peter Watts, les humains à la conscience modifiée perdent la capacité de faire des mouvements spontanés : leur démarche devient parfaitement régulière, mais dépourvue de la variabilité vivante, comme chez les sujets soumis à un rythme externe strict.