Pourquoi les protéines à la frontière des cellules se rassemblent en taches distinctes sans fusionner ✛
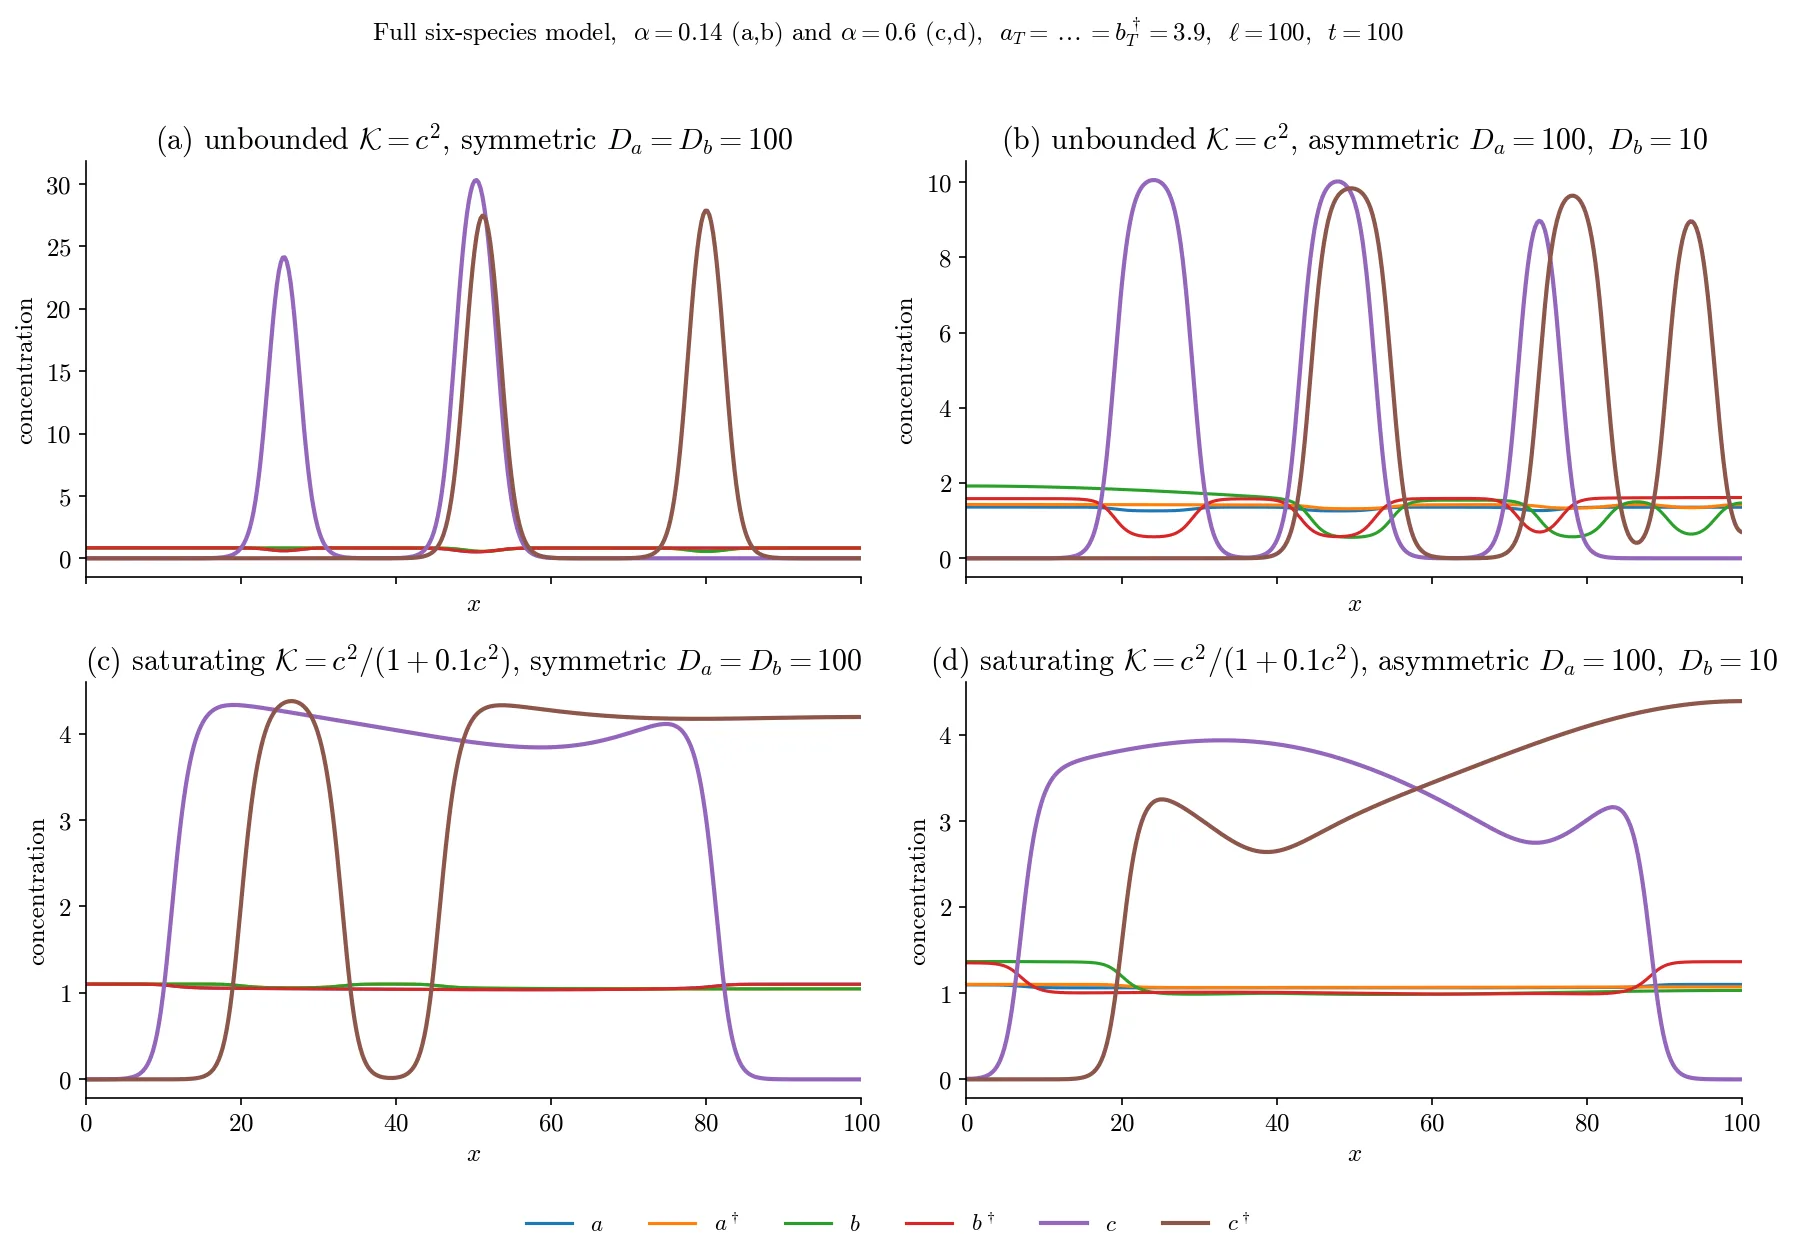
À la frontière entre deux cellules, les protéines se rassemblent en taches distinctes, comme des gouttes d'encre sur du papier. Certaines gouttes pointent dans une direction, d'autres dans la direction opposée. Pendant longtemps, on ne comprenait pas pourquoi ces taches ne fusionnaient pas en une seule grande tache, ni comment elles décidaient de leur emplacement. Il s'avère que tout repose sur deux règles simples : la quantité totale de protéines au contact est constante, et l'interaction entre les taches dépend de leur orientation.
Imaginez deux réservoirs d'encre placés de part et d'autre de la jonction cellulaire. Ils libèrent deux types de monomères, rapides et mobiles. Lorsqu'ils se rencontrent, ils forment des complexes visqueux qui bougent à peine. Si les complexes deviennent nombreux, ils commencent à attirer encore plus de monomères, ce que l'on appelle une rétroaction de regroupement. Résultat : la distribution homogène des protéines perd sa stabilité et des points distincts apparaissent. Mais voici l'essentiel : si deux points sont orientés de la même manière, ils finissent toujours par fusionner lentement en un seul. Par conséquent, le nombre de points que l'on observe n'est pas prédéterminé, mais dépend du temps écoulé depuis leur formation.
Ajoutons maintenant une seconde règle : supposons que les complexes d'une orientation accélèrent la dégradation des complexes de l'orientation opposée. Alors les taches de « couleurs » différentes commencent à se repousser et à s'écarter dans des directions opposées. Cela transforme le regroupement chaotique en tri : à une extrémité du contact se rassemblent les complexes d'une orientation, à l'autre, ceux de l'autre orientation. Et le plus surprenant : le contrôle du nombre de taches et leur séparation par orientation sont deux mécanismes indépendants. La cellule peut les ajuster séparément, comme un artiste qui décide d'abord combien de gouttes appliquer, puis lesquelles seront orientées à gauche et lesquelles à droite.
Ainsi, un modèle simple avec deux réservoirs d'encre explique comment les interactions moléculaires engendrent l'ordre à la frontière cellulaire. Aujourd'hui, cela aide à interpréter les images de clusters de protéines au microscope : en connaissant la mobilité des monomères, on peut prédire le nombre et la taille des points. Et à l'avenir, ces mêmes règles pourraient indiquer comment la cellule choisit sa direction de croissance et comment ce choix est transmis à l'ensemble du tissu.
La largeur d'un point de protéine unique dans le modèle est universelle : elle ne dépend ni de la quantité de protéine ni de la force de la rétroaction, mais seulement de la diffusion du complexe et de sa vitesse de dégradation. C'est comme si la largeur d'un embouteillage ne dépendait pas du nombre de voitures, mais seulement de la vitesse de réaction des conducteurs.