Taches d'encre à la frontière cellulaire : comment les protéines décident elles-mêmes où se rassembler et où regarder ✛
Deux réservoirs d'encre se tiennent de part et d'autre de la jonction cellulaire. De là, deux types de monomères s'écoulent sur la membrane et, lorsqu'ils se rencontrent, forment des gouttes visqueuses de complexes. Les gouttes bougent à peine, tandis que les monomères libres filent rapidement, comme des molécules de parfum dans une pièce. Ainsi commence l'histoire de la façon dont la cellule dessine des points à sa frontière, des amas discrets de protéines qui détermineront plus tard la direction de croissance de tout le tissu.
Le modèle construit par les auteurs est simple dans ses ingrédients : deux types de monomères (A et B) diffusent rapidement, se lient de manière réversible en complexes de deux orientations (C et C†), et ces derniers se déplacent lentement. La rétroaction n'intervient que par les vitesses de réaction : la rétroaction de regroupement K(c) renforce la liaison là où il y a déjà beaucoup de complexes, et la modulation croisée V(c†) modifie la décomposition des complexes en fonction de la concentration de l'orientation opposée. Aucun signal externe, seulement des règles locales. Et c'est là que le principal commence : si les monomères diffusent plus vite que le complexe et que la rétroaction est suffisamment forte, l'état homogène perd sa stabilité. Mais pas par la bifurcation de Turing à onde finie, comme on pourrait s'y attendre, mais par un mode à longue longueur d'onde, une lente redistribution de la masse totale.
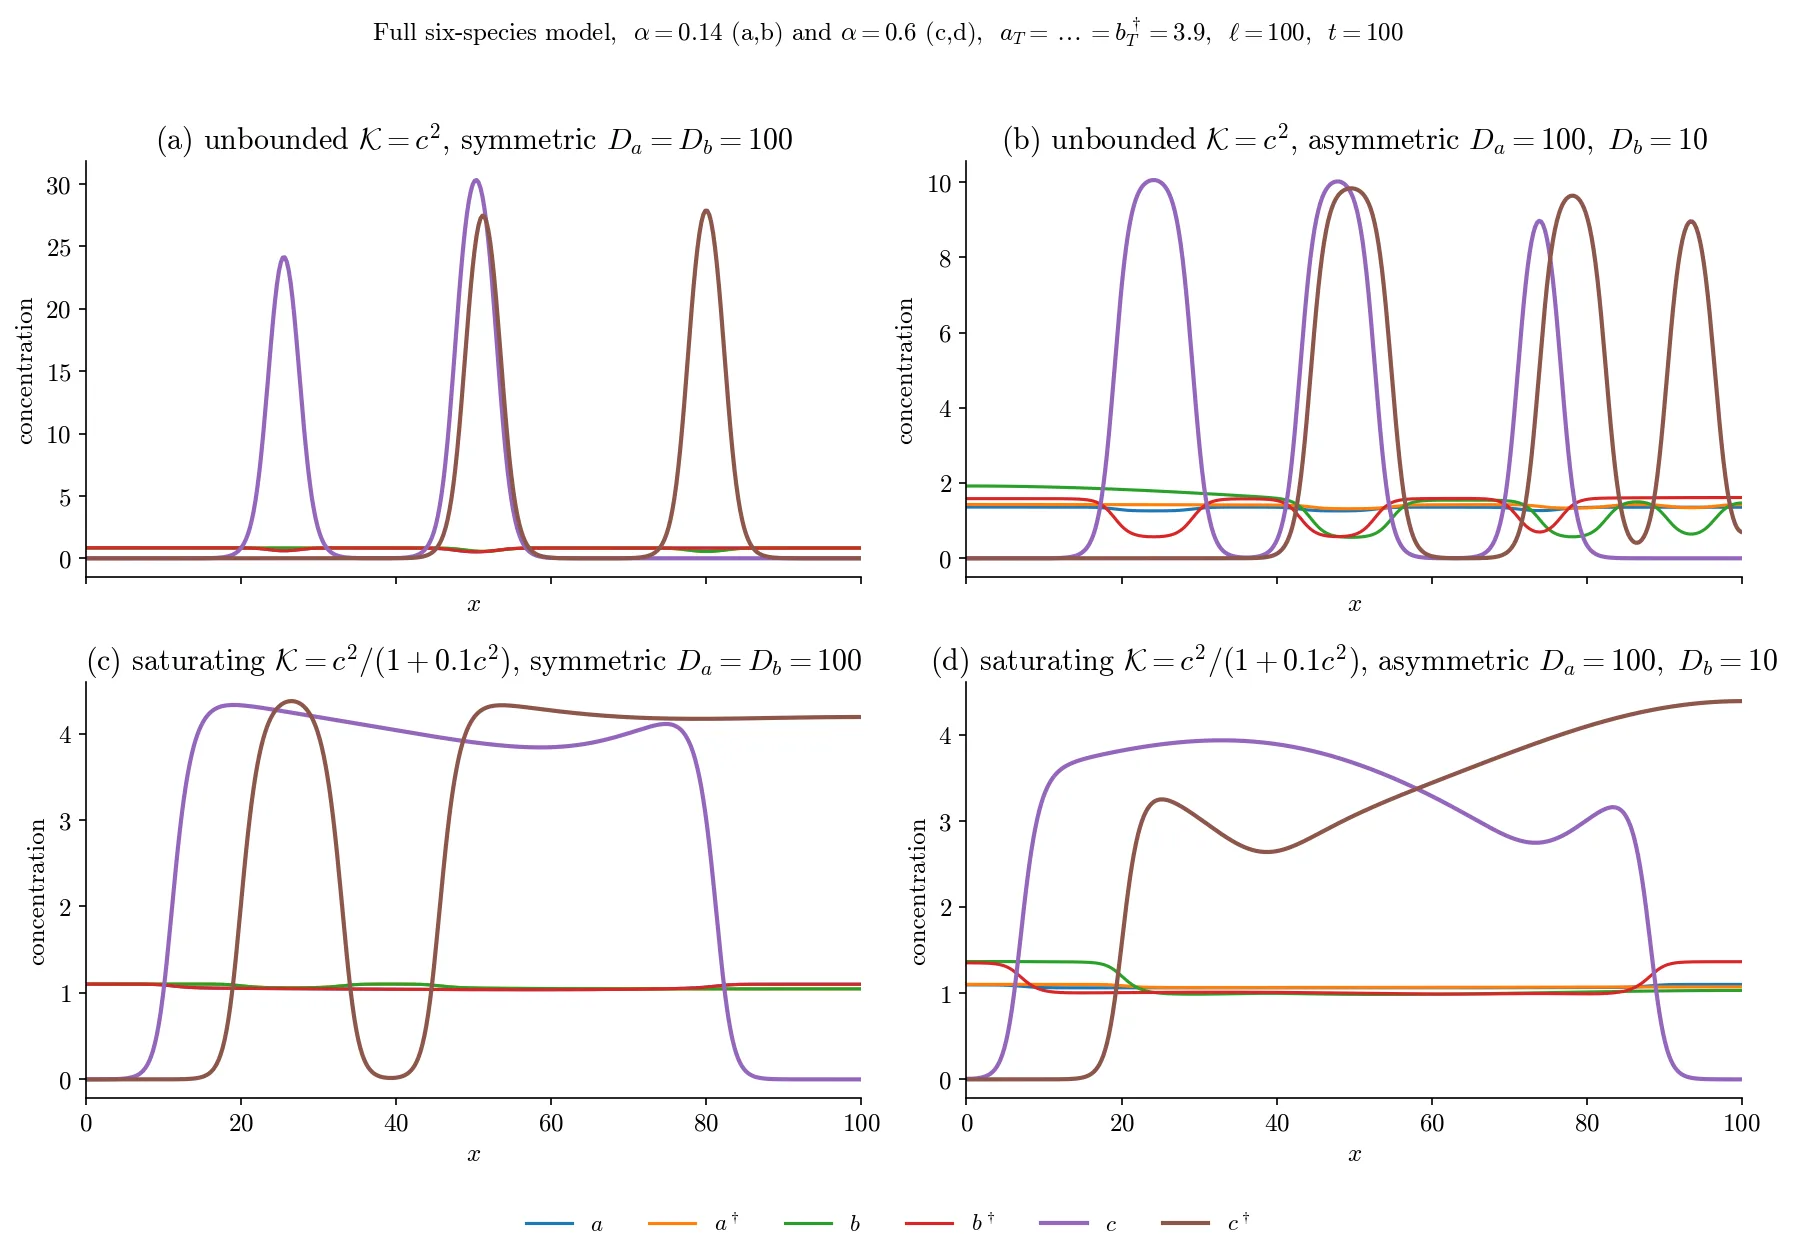
Ensuite, la forme de la rétroaction décide de ce qui en résulte : de larges plateaux ou des pics étroits. Pour une rétroaction non bornée (c²), des pics étroits apparaissent avec une amplitude inversement proportionnelle au produit des concentrations moyennes des monomères, et une largeur universelle à mi-hauteur de 4 arccosh(√2) ≈ 3.53 en unités de longueur de diffusion du complexe. Pour une rétroaction saturante (c²/(1+ρc²)), de larges plateaux se forment, dont la position du front est déterminée par la construction de Maxwell, la même règle qui décrit l'équilibre des phases en physique. Mais le résultat le plus inattendu concerne le nombre de points. Tout réseau de points également orientés est instable et fusionne en un seul grand point. La vitesse de fusion pour deux pics est proportionnelle au cube de la concentration moyenne des monomères et au coefficient de diffusion, et lorsque les diffusions des monomères sont inégales, elle est déterminée par la moyenne harmonique de leurs coefficients de diffusion. Par conséquent, le nombre de points que nous voyons au contact cellulaire n'est pas fixé par une longueur d'onde déterminée, mais est déterminé cinétiquement, comme la lente coalescence de gouttes sur une vitre.
Introduisons maintenant la modulation croisée : supposons que les complexes d'une orientation accélèrent la décomposition des complexes de l'orientation opposée. Alors la formation d'amas se transforme en tri. Les points colocalisés d'orientations opposées commencent à se séparer avec une vitesse proportionnelle à la pente de la modulation et à l'amplitude du point. Le critère de tri ne dépend que du signe de la modulation croisée, et non de la forme de la rétroaction de regroupement. Cela signifie que le contrôle du nombre de points et de leur ségrégation orientationnelle sont des ingrédients mathématiquement séparables. La cellule peut les ajuster indépendamment, comme un artiste qui décide séparément combien de taches appliquer sur la toile, et séparément lesquelles regarderont à gauche et lesquelles à droite.
Ainsi, le modèle qui a commencé avec deux réservoirs d'encre donne une réponse simple à une question complexe : la conservation de la masse et la rétroaction de regroupement suffisent à former des points, leur nombre est déterminé cinétiquement en raison de la lente fusion, et le tri des orientations nécessite une modulation croisée de signe défini du renouvellement. Aujourd'hui, cela peut être utilisé pour interpréter les expériences de visualisation des amas de protéines aux contacts cellulaires : connaissant la mobilité des monomères, le modèle prédit combien de points se formeront et quelle sera leur taille. Et demain, peut-être, la même encre aidera à dessiner une carte de la façon dont l'auto-organisation moléculaire se transforme en polarité d'un tissu entier.
La largeur d'un point de protéine unique dans le modèle est universelle : elle ne dépend ni de la quantité de protéine ni de la force de la rétroaction, mais seulement de la diffusion du complexe et de sa vitesse de dégradation. C'est comme si la largeur d'un embouteillage ne dépendait pas du nombre de voitures, mais seulement de la vitesse de réaction des conducteurs.