Почему биологическое узнавание не ломается, а плавно переключается экспресс
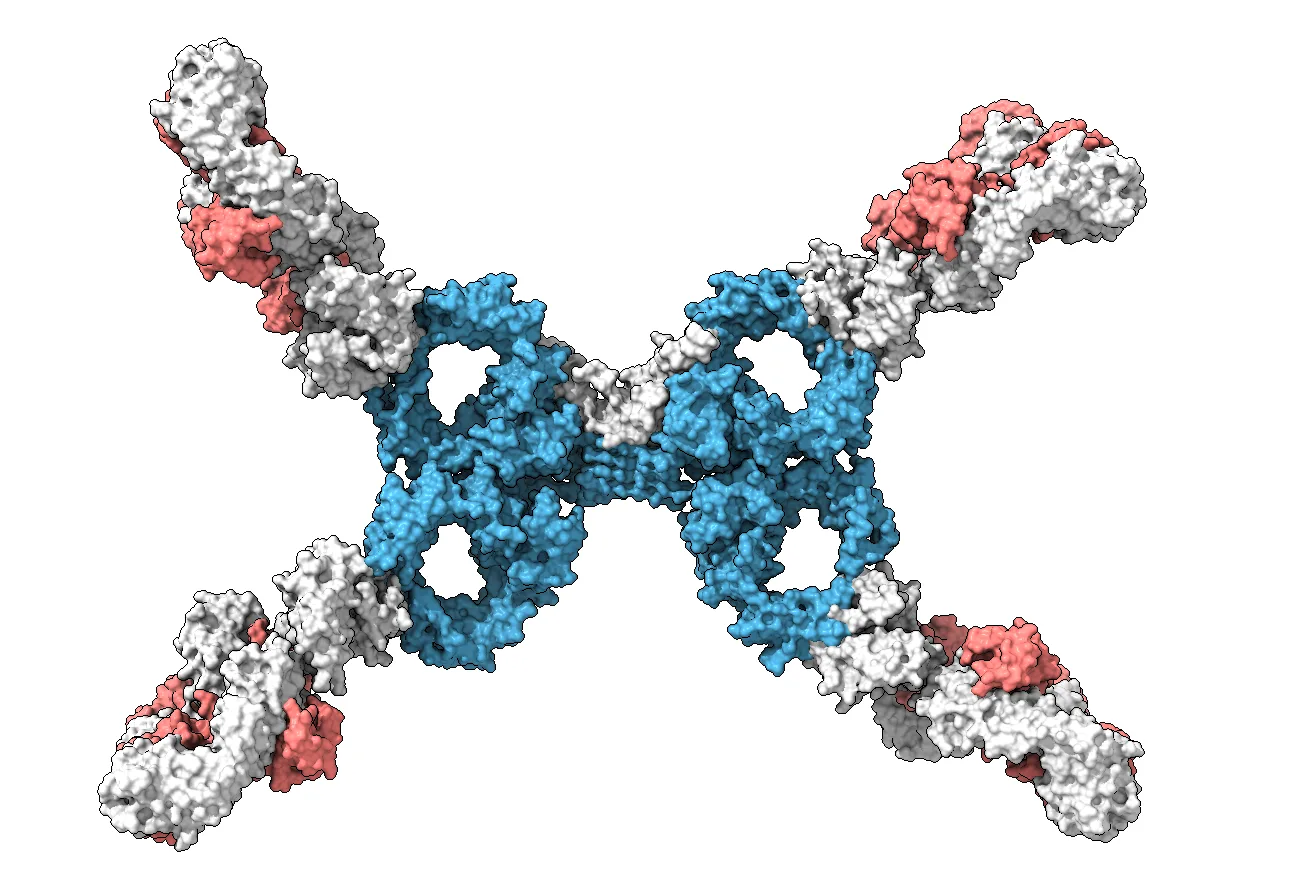
Когда антитело встречает вирус, оно не вцепляется в него одним мёртвым захватом. Скорее, это похоже на то, как две грозди винограда перекатываются в воде и цепляются друг за друга десятками коротких усиков. Каждый усик сам по себе слаб — легко рвётся от теплового дрожания молекул воды, — но вместе они держат крепко.
В новом обзоре этот процесс пересобрали на языке статистической механики. Оказалось, что задача подсчёта всех возможных способов сцепления двух усеянных липучками поверхностей сводится к старой математической головоломке — задаче о мономерах и димерах на графе. И решение этой головоломки говорит однозначно: многозубое связывание не знает резких фазовых переходов. Переключение всегда плавное, как поворот ручки громкости, а не как щелчок выключателя. Поэтому живая клетка может тонко настраивать свои ответы.
Из такого плавного поведения вытекают три жёстких ограничения. Во-первых, отталкивающая шуба на поверхности молекулы — не прихоть эволюции, а обязательная деталь: без неё все липучки слиплись бы хаотично. Во-вторых, узы не действуют независимо: защёлкивание одной влияет на доступность соседних. В-третьих, поскольку энергия связи входит в скорость реакции через экспоненту, крошечное изменение числа рецепторов — скажем, с десяти до двенадцати — может удлинить время удержания в сотни раз. Те же уравнения описывают и работу антител, и захват жировых частиц липопротеинами, и то, как Т-клетки обыскивают поверхность других клеток в поисках чужака. Везде решающим оказывается не сила отдельного контакта, а то, как общая липкость распределена по многим слабым точкам. Сродство — свойство одиночной молекулы, а избирательность — свойство целого ансамбля.
Так что биологическое узнавание похоже не на замок с ключом, а на толпу людей, которые удерживают друг друга за одежду: никто не держит крепко, но все вместе не дают упасть. И стоит кому-то отпустить подол — вся конструкция мягко перестраивается, а не рушится разом.
Оригинальная аннотация
как её написали авторы, на английском arXiv:2608.08571v1
Biological recognition rarely rests on one strong bond. It works by forming many weak ones at once, between crowded, deformable surfaces in water. This review develops that process as a problem in statistical mechanics. Counting the ways two multivalent objects can bind proves to be the classical monomer-dimer problem on a graph, with a rigorous consequence: the apparent switching of multivalent binding is always a smooth crossover, never a phase transition. Three constraints follow. A repulsive surface layer is obligatory rather than a design choice; bonds do not act independently; and since free energies enter rates exponentially, small changes in receptor number shift binding lifetimes by orders of magnitude. One set of equations then covers antibodies, lipoproteins, and T cell recognition. In each, what decides the outcome is not the strength of any single bond but how a fixed total is spread over many: affinity is a property of a molecule, selectivity a property of an assembly.
Т-клетка, проверяя одну клетку тела, образует и разрывает сотни слабых контактов в секунду — как человек, который быстро ощупывает клавиши, ища нужную ноту.