Фермент-курьер в густом геле: кто задаёт темп ✛
Оригинал: "Simultaneous measurements of enzyme propagation and biopolymer mobility elucidate the directional degradation of a dense biopolymer matrix"
arXiv:2609.03792v1 · 2026-09-03 · CC BY 4.0 · 1 мин
Одновременная съёмка движения фермента и разрушения геля показала: скорость процесса лимитирует не диффузия, а медленное угасание активности фермента.

Курьер с посылкой входит в густой лес из переплетённых верёвок. Он должен доставить груз вглубь, но по дороге теряет силы, и каждый шаг даётся всё труднее. Так выглядит фермент, который разрушает плотный гель из биологических молекул. До недавнего времени никто не мог одновременно видеть, как курьер движется и как редеет лес.

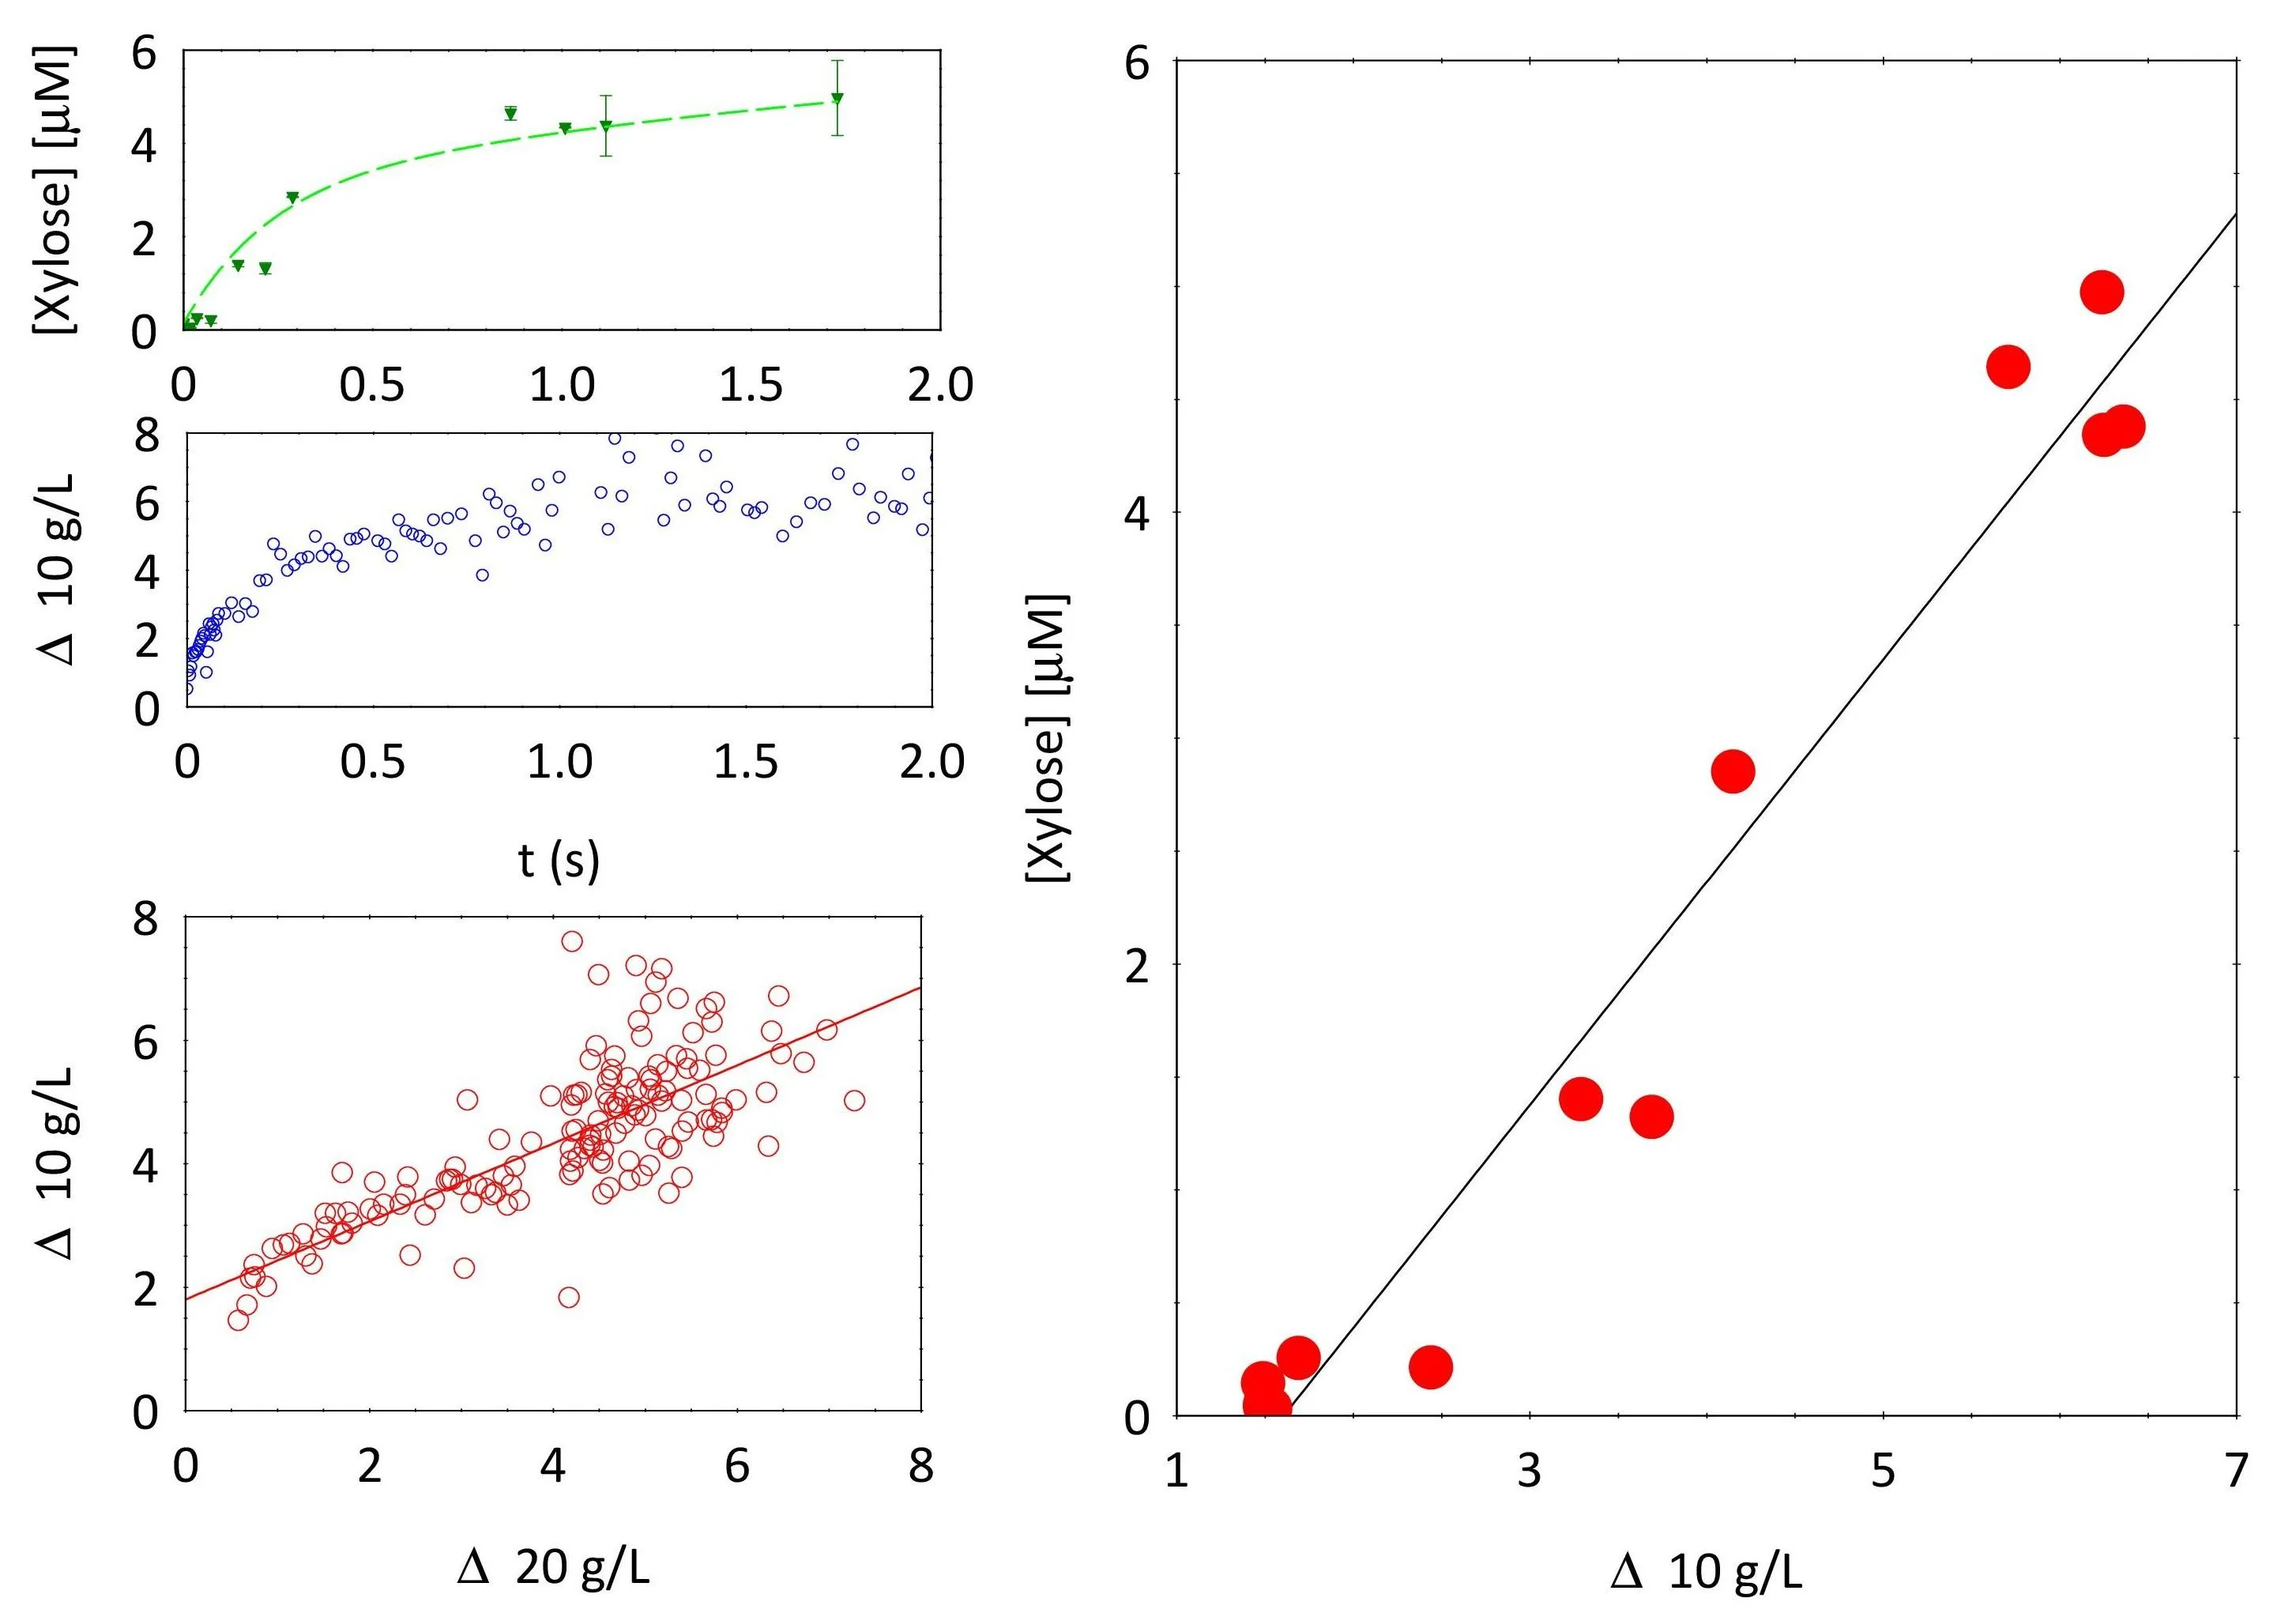
Установка Fluo-PCI впервые сняла обе картины разом: лазерный лист освещал образец, одна камера следила за мерцанием света, выдавая подвижность полимерных цепей, а другая ловила свечение меченого фермента.

Оказалось, что курьер идёт с одной и той же скоростью, независимо от того, насколько он силён и насколько густ лес. Скорость его перемещения задаёт только тепловое движение молекул. Зато граница, где лес уже повален, продвигается медленнее, чем можно было бы ожидать от простого проникновения курьера.

Причина в том, что курьер постепенно выдыхается. Его активность падает по двум экспонентам: быстро теряется большая часть сил, а небольшая доля сохраняется надолго. Именно это медленное угасание, а не скорость ходьбы, определяет, как быстро тает лес.

Модель, построенная на уравнении Михаэлиса–Ментен с добавкой затухающей активности, точно воспроизвела все экспериментальные карты. Для мутанта с ослабленной силой хватило одной экспоненты.

Раньше считалось, что разрушение геля может ускорять движение фермента, но здесь этого не произошло. Курьер не получает попутного ветра от своей работы. Теперь, когда оба процесса измерены вместе, можно точнее рассчитывать, сколько фермента и какого именно нужно для переработки биомассы в топливо или для доставки лекарства в нужную точку тела.

Показатель степени 0.5 в законе движения фронта для дикого фермента сначала наводил на мысль о чисто диффузионном контроле, но данные для мутанта с показателем 0.7 и моделирование показали, что это совпадение: на самом деле фронт замедляется из-за постепенной потери активности фермента.

f(t) = \chi \exp(-k_\alpha t) + (1-\chi) \exp(-k_\beta t)
Доля активного фермента уменьшается по сумме двух экспонент: быстрая компонента с константой k_α и медленная с k_β, их веса задаёт χ.
\frac{d\Delta(z,t)}{dt} = \frac{k_{cat}}{A} E(z,t) f(t) \frac{C - \Delta(z,t)}{(K_m/A) + C - \Delta(z,t)}
Скорость роста подвижности полимера Δ в точке z зависит от локальной концентрации фермента E, доли активного фермента f(t) и насыщения субстрата, описываемого константой Михаэлиса K_m.
\Delta(z,t) - \frac{K_m}{A} \ln\left(\frac{C - \Delta(z,t)}{C}\right) = \frac{k_{cat}}{A} \Phi(z,t)
Подвижность Δ определяется интегралом Φ от произведения концентрации фермента на фактор активности по времени, что даёт универсальную кривую для всех глубин.
Понятия
фермент хемотаксис динамика плавания микроорганизмов экспрессия генов белок биоплёнка открытие лекарств диффузия деление клетки биомолекула биомаркер биоинформатика уравнение Михаэлиса-Ментен эпидемическая модель перенос энергии коллективное движение микробов фолдинг белка перенос в электролитах стохастическая динамика в биологии метаболизм