Ферменты в густом биополимере: кто кого ведёт ✛
Контекст
Ферментативное разрушение биополимеров встречается повсюду: от пищеварения до переработки растительной биомассы в биотопливо. В большинстве приложений фермент подаётся с одной стороны плотной матрицы, и разрушение распространяется фронтом, направление которого задаёт градиент концентрации фермента. Вокруг этой работы в архиве лежат исследования динамики биополимерных капель, транспорта молекул в клетке и поведения полимеров в активных средах. Однако все они рассматривают либо однородное распределение фермента, либо только один из аспектов процесса: движение фермента или изменение матрицы. Связь между проникновением фермента и разрушением субстрата в условиях направленной деградации оставалась невыясненной. Данная работа впервые измеряет оба процесса одновременно с пространственным и временным разрешением.
Методы
Авторы использовали модельную пару: ферулоилированный арабиноксилан (FAX), полисахарид из клеточных стенок злаков, и ксиланазу, фермент, случайным образом разрезающий его цепи. Раствор FAX концентрацией 10 или 20 г/л помещали в кювету, сверху аккуратно наливали раствор флуоресцентно меченного фермента. Специально сконструированная установка Fluo-PCI объединяла фотонную корреляционную визуализацию (PCI) и флуоресцентную микроскопию: лазерный лист освещал образец, рассеянный свет шёл на одну камеру для измерения микроскопической подвижности полимера, а флуоресценция — на другую для отслеживания концентрации фермента. Подвижность полимера Δ(z,t) вычисляли из степени корреляции рассеянного света, что позволяло строить карты деградации в координатах глубина–время. Фронт разрушения определяли по порогу подвижности с помощью алгоритма Оцу. Диффузию фермента описывали аналитическим решением одномерного уравнения диффузии для двух видов частиц: крупных (фермент) и мелких (свободный флуорофор).
Результаты
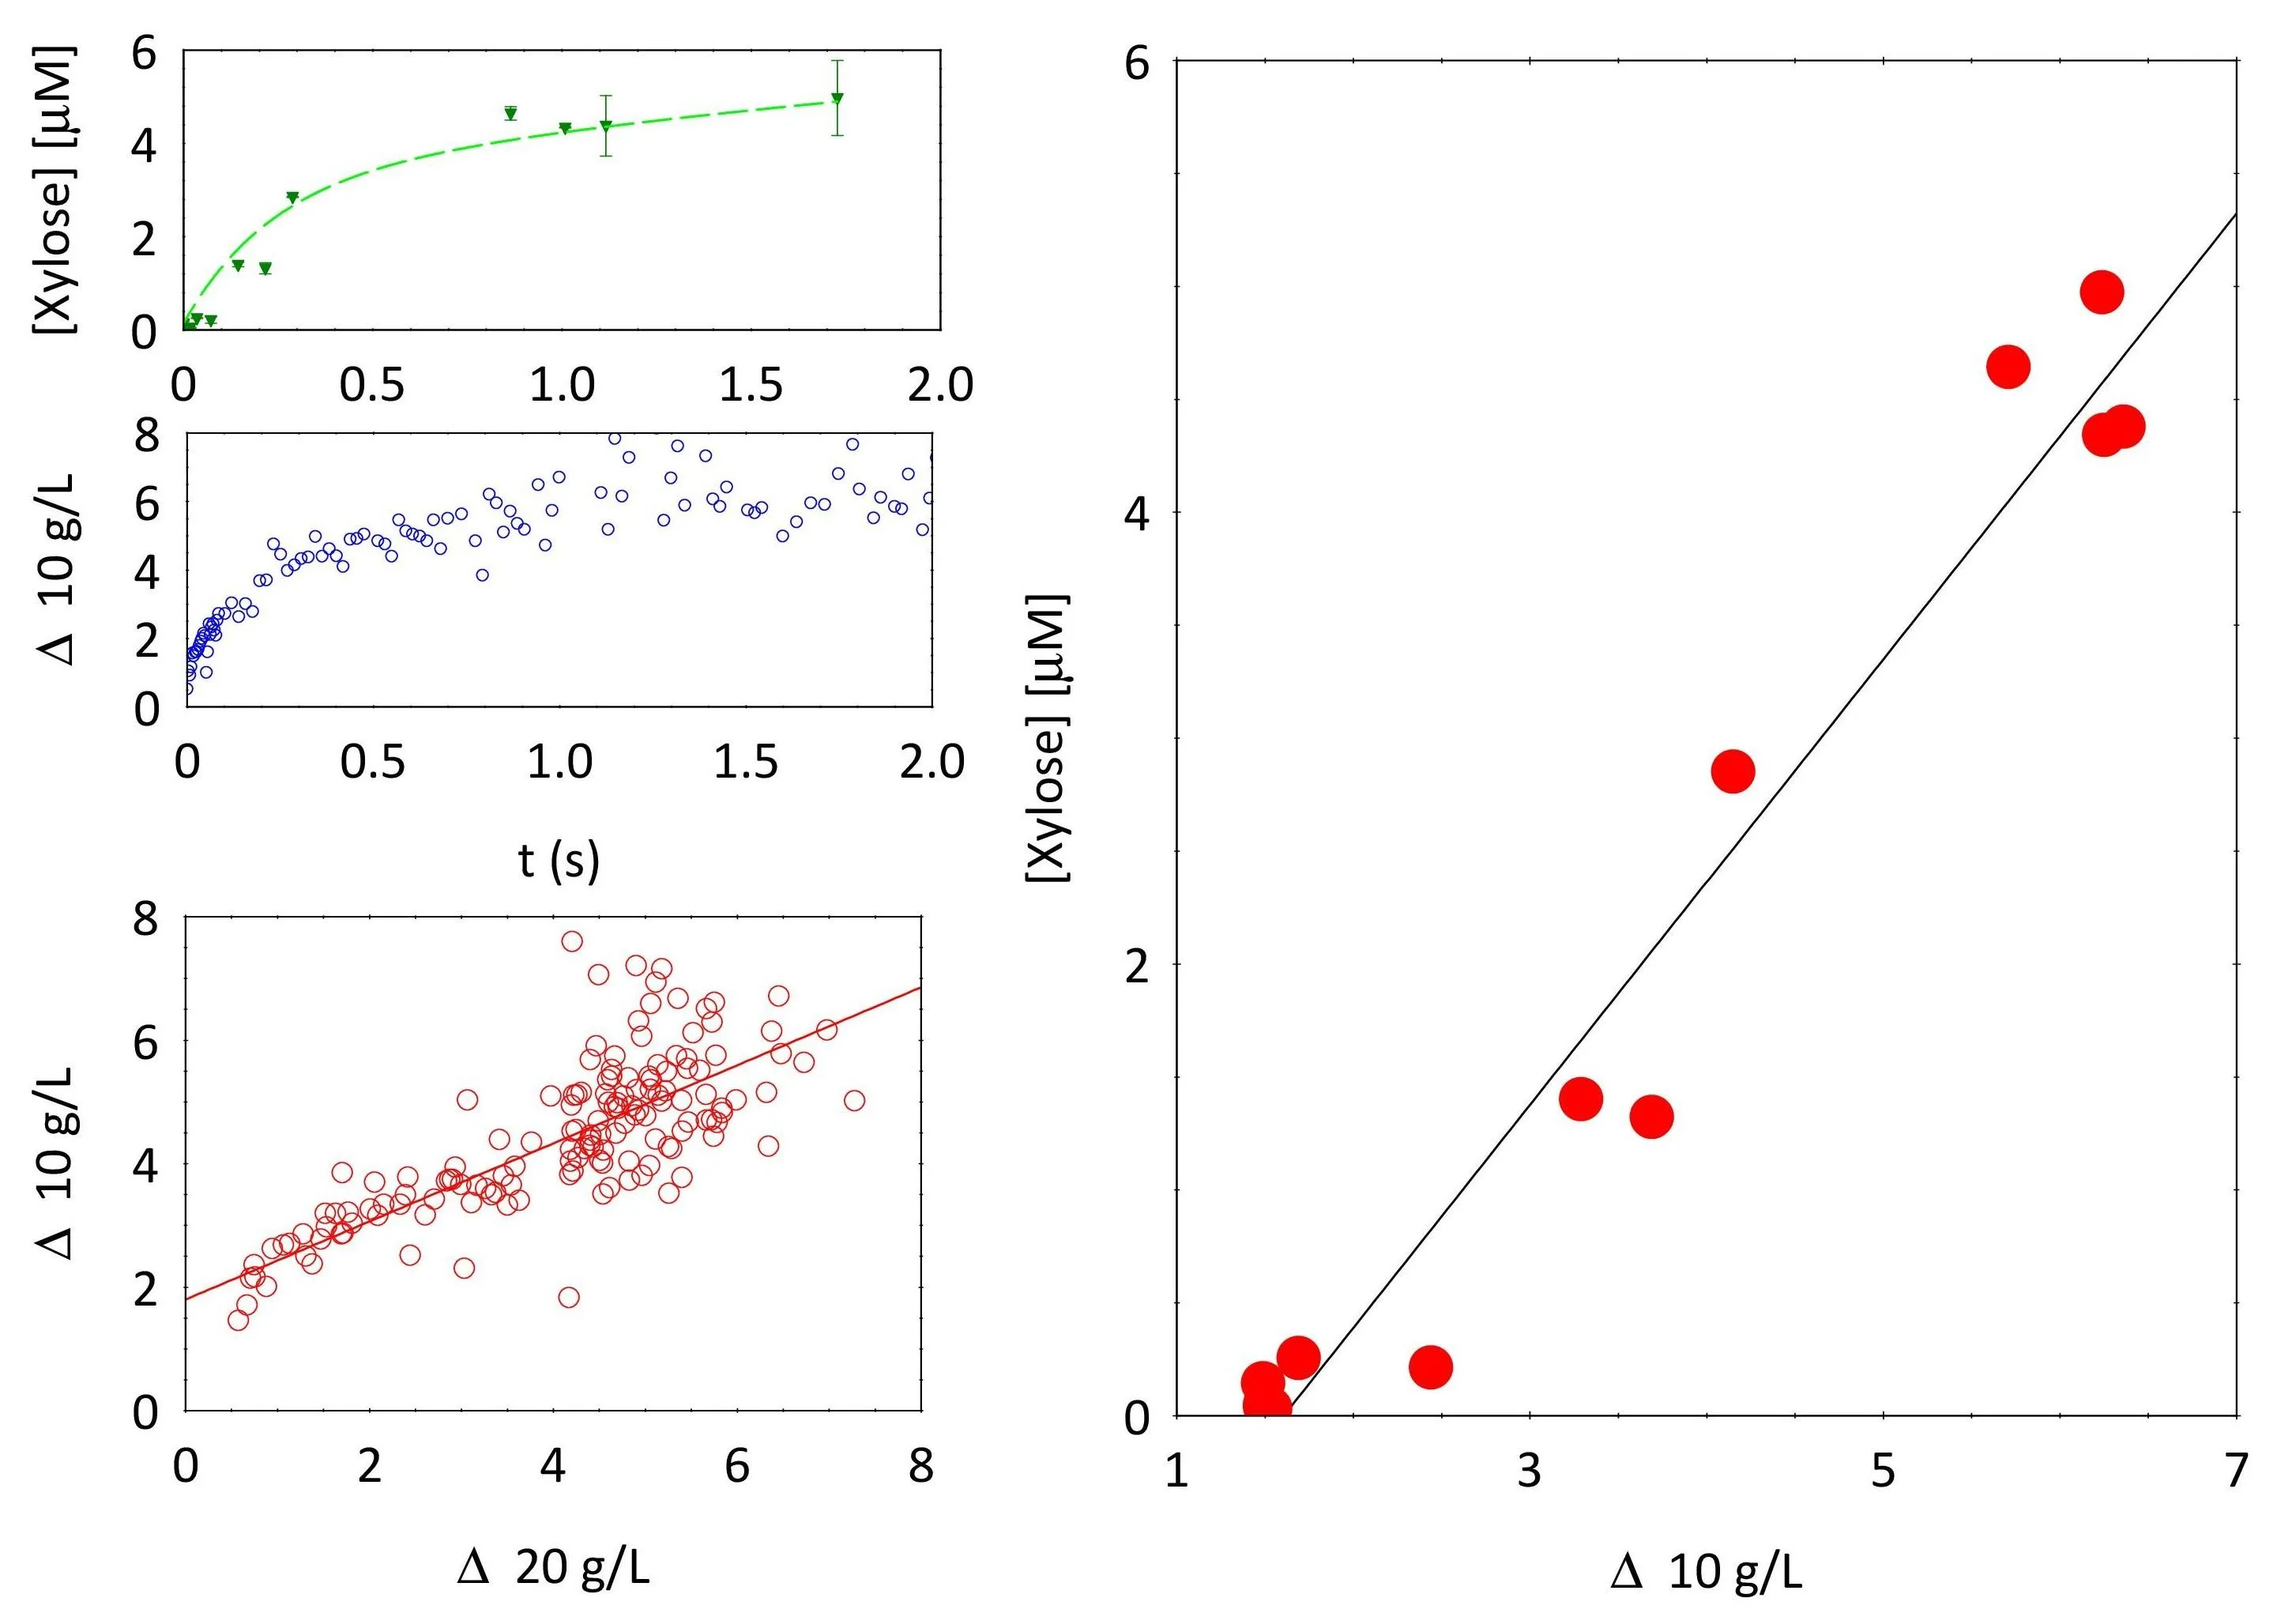
Фронт разрушения продвигался по закону, близкому к степенному: z* ~ (t*)^0.5 для дикого типа фермента и с показателем около 0.7 для мутанта с сильно сниженной активностью. Скорость фронта росла с уменьшением концентрации полимера и с увеличением концентрации фермента. Диффузия фермента оказалась одинаковой для всех условий: коэффициент диффузии крупных частиц составил (1.02±0.37)×10⁻¹⁰ м²/с, что соответствует гидродинамическому радиусу около 3.2 нм, согласующемуся с размером фермента. Мелкая фракция с коэффициентом (6.59±0.77)×10⁻¹⁰ м²/с соответствовала свободному флуорофору. Важно, что диффузия не зависела от активности фермента: мутант двигался так же, как дикий тип, что исключает эффект усиленной диффузии (EED). Модель Михаэлиса–Ментен с пространственно-временной концентрацией фермента и дополнительным фактором затухания активности f(t) = 0.92·exp(−4.6×10⁻⁵ t) + 0.08·exp(−2.7×10⁻⁶ t) (в секундах) точно воспроизвела все экспериментальные карты подвижности. Для мутанта достаточно было одной экспоненты с константой 1.03×10⁻⁵ с⁻¹.
Значение
Работа стоит несколько особняком среди соседей: те исследуют либо динамику полимеров без ферментов, либо транспорт молекул в клетке без учёта разрушения матрицы. Здесь впервые соединены оба измерения в одном эксперименте, причём с миллиметровым пространственным разрешением и временным разрешением в десятки миллисекунд. Это позволило разделить вклады диффузии и кинетики реакции и выявить ключевую роль медленной дезактивации фермента. Такой подход может стать эталоном для изучения направленной ферментативной деградации в плотных средах.
Развитие
Методика Fluo-PCI применима к любым парам фермент–биополимер, где возможна флуоресцентная метка. Можно исследовать влияние вязкости, размера пор, заряда и специфических взаимодействий на связь между диффузией и деградацией. Перспективно изучение систем с несколькими ферментами, работающими синергетически, например целлюлазных коктейлей для переработки лигноцеллюлозы. Развитие модели с учётом пространственной неоднородности дезактивации и возможного ингибирования продуктами позволит точнее предсказывать динамику процесса в реальных биореакторах.
Влияние
Результаты напрямую влияют на оптимизацию ферментативного гидролиза биомассы для производства биотоплива и биопластиков, а также на разработку систем контролируемой доставки лекарств с фермент-чувствительными носителями.
Следующие шаги
Проверить универсальность модели на других субстратах и ферментах, в том числе с разной степенью сшивки полимерной сетки. Исследовать механизм дезактивации фермента в плотной матрице на молекулярном уровне.
Ключевые проблемы
В области ферментативной деградации биополимеров остаётся открытым вопрос о природе усиленной диффузии ферментов (EED): в одних системах она наблюдается, в других нет. Данная работа показывает отсутствие EED для ксиланазы в полуразбавленном растворе арабиноксилана, что добавляет аргумент в дискуссию. Также нерешённой проблемой является предсказание эффективности ферментативных коктейлей в гетерогенных субстратах, где локальная доступность субстрата и инактивация фермента меняются в пространстве и времени.
Взгляд машины знаний
Этот раздел адресован автору работы и его коллегам. Соседние работы нашёл смысловой поиск по нашему архиву — не по совпадению слов, а по смыслу. Мы не рецензируем: мы показываем поле вокруг.
Что сделано в работе
Авторы создали установку Fluo-PCI, которая одновременно измеряет диффузию флуоресцентно меченного фермента и микроскопическую подвижность полимерных цепей в геле. Они показали, что фронт разрушения продвигается по степенному закону, а диффузия фермента не зависит от его активности и концентрации полимера. Модель Михаэлиса–Ментен с учётом затухания активности воспроизводит экспериментальные данные.
В чём сила
Работа впервые связывает проникновение фермента с разрушением субстрата в условиях направленной деградации, предоставляя количественную основу для оптимизации биотехнологических процессов.
Куда можно двигаться
- Рядом лежит работа об энтропийных силах в растущих биополимерных каплях: возможно, аналогичные механизмы влияют на локальную подвижность цепей вблизи фронта разрушения.опора: Энтропийный фронтир: почему растущие биополимерные капли сжимаются с краёв arXiv:2606.31786
- Может быть интересно сопоставить наблюдаемую динамику фронта с моделями активных сред, где полимерные сети перестраиваются под действием молекулярных моторов.опора: Как моторы клетки задают размер капель arXiv:2604.08316
- В архиве есть разбор о влиянии растворителей на клеточную стенку: перенос подхода к другим биополимерным матрицам мог бы выявить универсальные закономерности деградации.опора: Как спирт и хлороформ расшатывают клеточную стенку arXiv:2605.08780
Что можно попробовать
- Проверить, меняется ли распределение размеров пор в геле по мере продвижения фронта, используя методы из работы о порах в мембране.
- Апробировать модель с учётом неоднородности полимерной сети, как в анализе энтропийного фронтира.
- Сопоставить кинетику деградации с динамикой сборки цитоскелета, чтобы выявить общие принципы перестройки биополимеров.
Почему это может быть важно
Понимание связи между транспортом фермента и разрушением матрицы важно для рационального дизайна ферментативных процессов в биотехнологии, включая переработку биомассы и доставку лекарств.
Работы рядом в нашем архиве
- Белки гнут мембрану, как ложка гнёт плёнку на молокеблизость 0.53
- Энтропийный фронтир: почему растущие биополимерные капли сжимаются с краёвблизость 0.51
- Как клетки строят границу ростаблизость 0.50
- Как моторы клетки задают размер капельблизость 0.50
- Космические нити тянут в две стороныблизость 0.49
- Поры в мембране: три ключа к точному расчётублизость 0.49
- Как спирт и хлороформ расшатывают клеточную стенкублизость 0.48
Вокруг этой работы в архиве пусто: ближайший разбор всего на 0.53, при обычных 0.64. Похоже, рядом почти не бурили.
Показатель степени 0.5 в законе движения фронта для дикого фермента сначала наводил на мысль о чисто диффузионном контроле, но данные для мутанта с показателем 0.7 и моделирование показали, что это совпадение: на самом деле фронт замедляется из-за постепенной потери активности фермента.
Ключевые числа
- коэффициент диффузии фермента: 1.02×10⁻¹⁰ м²/с
- гидродинамический радиус фермента: 3.2 нм
- показатель степени фронта для WT: 0.515±0.003
- константа быстрой дезактивации: 4.6×10⁻⁵ с⁻¹
- константа медленной дезактивации: 2.7×10⁻⁶ с⁻¹