Por qué las proteínas en la frontera celular se agrupan en manchas separadas y no se fusionan ✛
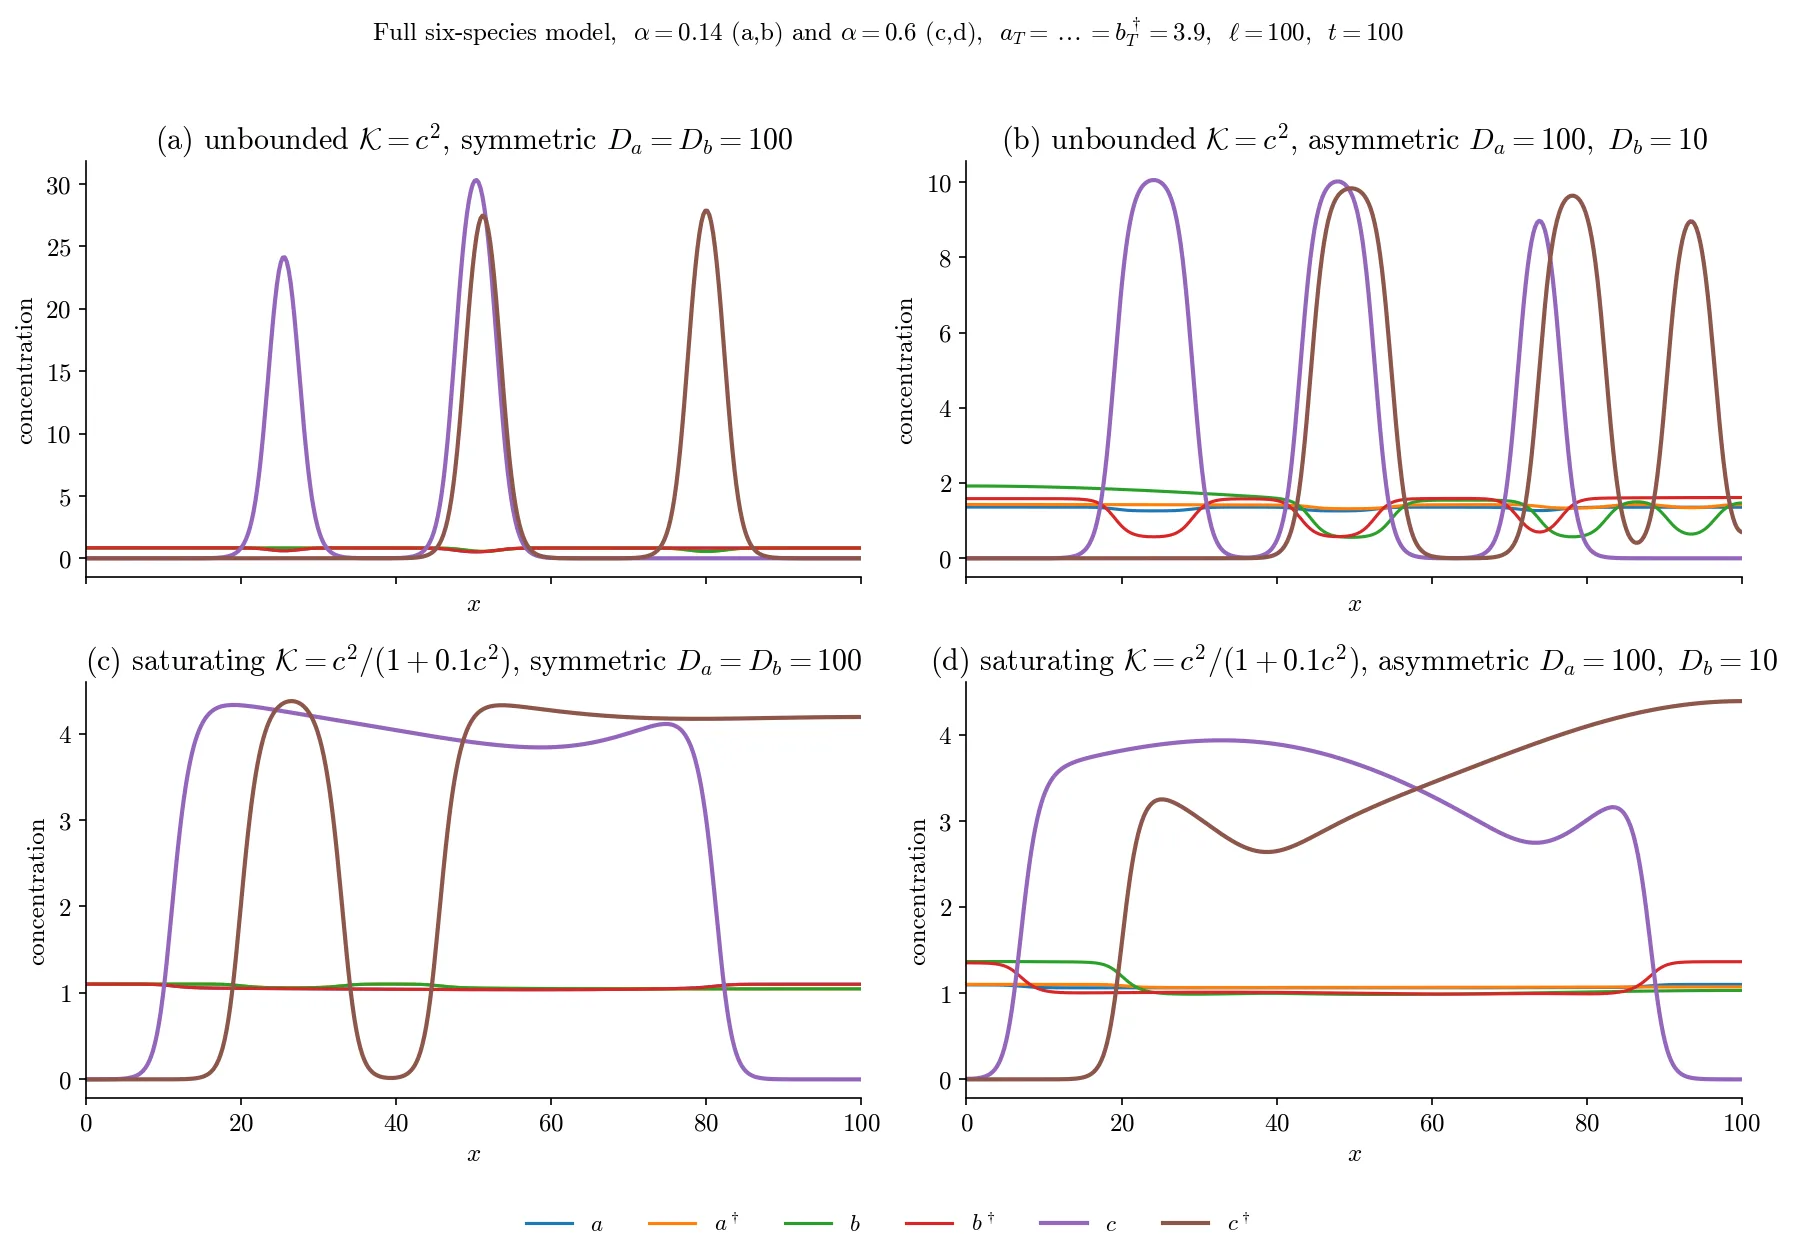
En el límite entre dos células, las proteínas se agrupan en manchas separadas, como gotas de tinta sobre papel. Unas gotas miran hacia un lado, otras hacia el opuesto. Durante mucho tiempo no se entendió por qué estas manchas no se fusionan en una sola grande ni cómo deciden dónde colocarse. Resulta que todo depende de dos reglas simples: la cantidad total de proteína en el contacto es constante y la interacción entre manchas depende de su orientación.
Imagina dos depósitos de tinta situados a ambos lados de la unión celular. De ellos fluyen dos tipos de monómeros, rápidos y móviles. Al encontrarse, forman complejos viscosos que casi no se mueven. Si los complejos se vuelven numerosos, empiezan a atraer más monómeros, lo que se conoce como retroalimentación de agrupamiento. Como resultado, la distribución homogénea de la proteína pierde estabilidad y surgen puntos separados. Pero lo importante es esto: si dos puntos tienen la misma orientación, siempre se fusionan lentamente en uno solo. Por eso el número de puntos que observamos no está predeterminado, sino que depende del tiempo transcurrido desde su formación.
Ahora añadimos la segunda regla: supongamos que los complejos de una orientación aceleran la descomposición de los complejos de la orientación opuesta. Entonces las manchas de distinto «color» empiezan a repelerse y a separarse en direcciones opuestas. Esto convierte la agrupación caótica en una clasificación: en un extremo del contacto se reúnen complejos de una orientación y en el otro, de la contraria. Y lo más sorprendente: controlar el número de manchas y separarlas por orientación son dos mecanismos independientes. La célula puede ajustarlos por separado, como un artista que primero decide cuántas gotas aplicar y luego cuáles mirarán a la izquierda y cuáles a la derecha.
Así, un modelo simple con dos depósitos de tinta explica cómo las interacciones moleculares generan orden en la frontera celular. Hoy ayuda a interpretar las imágenes de los conglomerados de proteínas bajo el microscopio: conociendo la movilidad de los monómeros, se puede predecir el número y el tamaño de los puntos. Y en el futuro, las mismas reglas quizá revelen cómo la célula elige la dirección de crecimiento y cómo esa elección se transmite a todo el tejido.
El ancho de un punto de proteína aislado en el modelo resulta universal: no depende ni de la cantidad de proteína ni de la fuerza de la retroalimentación, sino solo de la difusión del complejo y su velocidad de descomposición. Esto es similar a cómo el ancho de un atasco de tráfico no depende del número de coches, sino solo de la velocidad de reacción de los conductores.