Agrupación frente a clasificación: cómo las proteínas se ensamblan en puntos en el contacto celular ✛
Contexto
La polaridad celular planar es un mecanismo fundamental que establece la orientación de las células en los tejidos. Está precedida por la agrupación de proteínas polares en subdominios de membrana discretos (puntos) con recambio reducido. Sin embargo, las interacciones mínimas que originan los puntos, determinan su número y separan las orientaciones opuestas, seguían sin estar claras. Los modelos existentes describían principalmente la alineación y coordinación a nivel de células y tejidos, tratando cada contacto como bien mezclado, por lo que no podían resolver los propios puntos. Este trabajo se sitúa en la intersección con la investigación de sistemas de reacción-difusión con conservación de masa, donde se conocen mecanismos de fijación y fusión de ondas, pero no se consideraban dos reservorios independientes de monómeros ni la clasificación de orientaciones. Así, el artículo llena el vacío entre la escala molecular de los puntos y la polaridad tisular, proponiendo un modelo mínimo que vincula agrupación y clasificación.
Métodos
Los autores construyen un modelo unidimensional de reacción-difusión en el contacto celular con flujos nulos en los extremos. Dos tipos de monómeros (A y B) difunden rápidamente y se unen reversiblemente a través del contacto en transcomplejos de dos orientaciones (C y C†), que difunden lentamente. La retroalimentación entra solo a través de velocidades dependientes de la concentración: la retroalimentación agrupadora K(c) potencia la unión en presencia de complejos, y la modulación cruzada V(c†) altera la descomposición de los complejos según la concentración de la orientación opuesta. Se consideran dos variantes de K(c): ilimitada (c²) y saturante (c²/(1+ρc²)). El sistema se adimensionaliza, y el análisis incluye estabilidad lineal del estado homogéneo, asintótica de monómeros rápidos para un punto aislado, métodos espectrales para arreglos de puntos y simulación numérica mediante diferencias finitas con esquema semimplícito.
Resultados
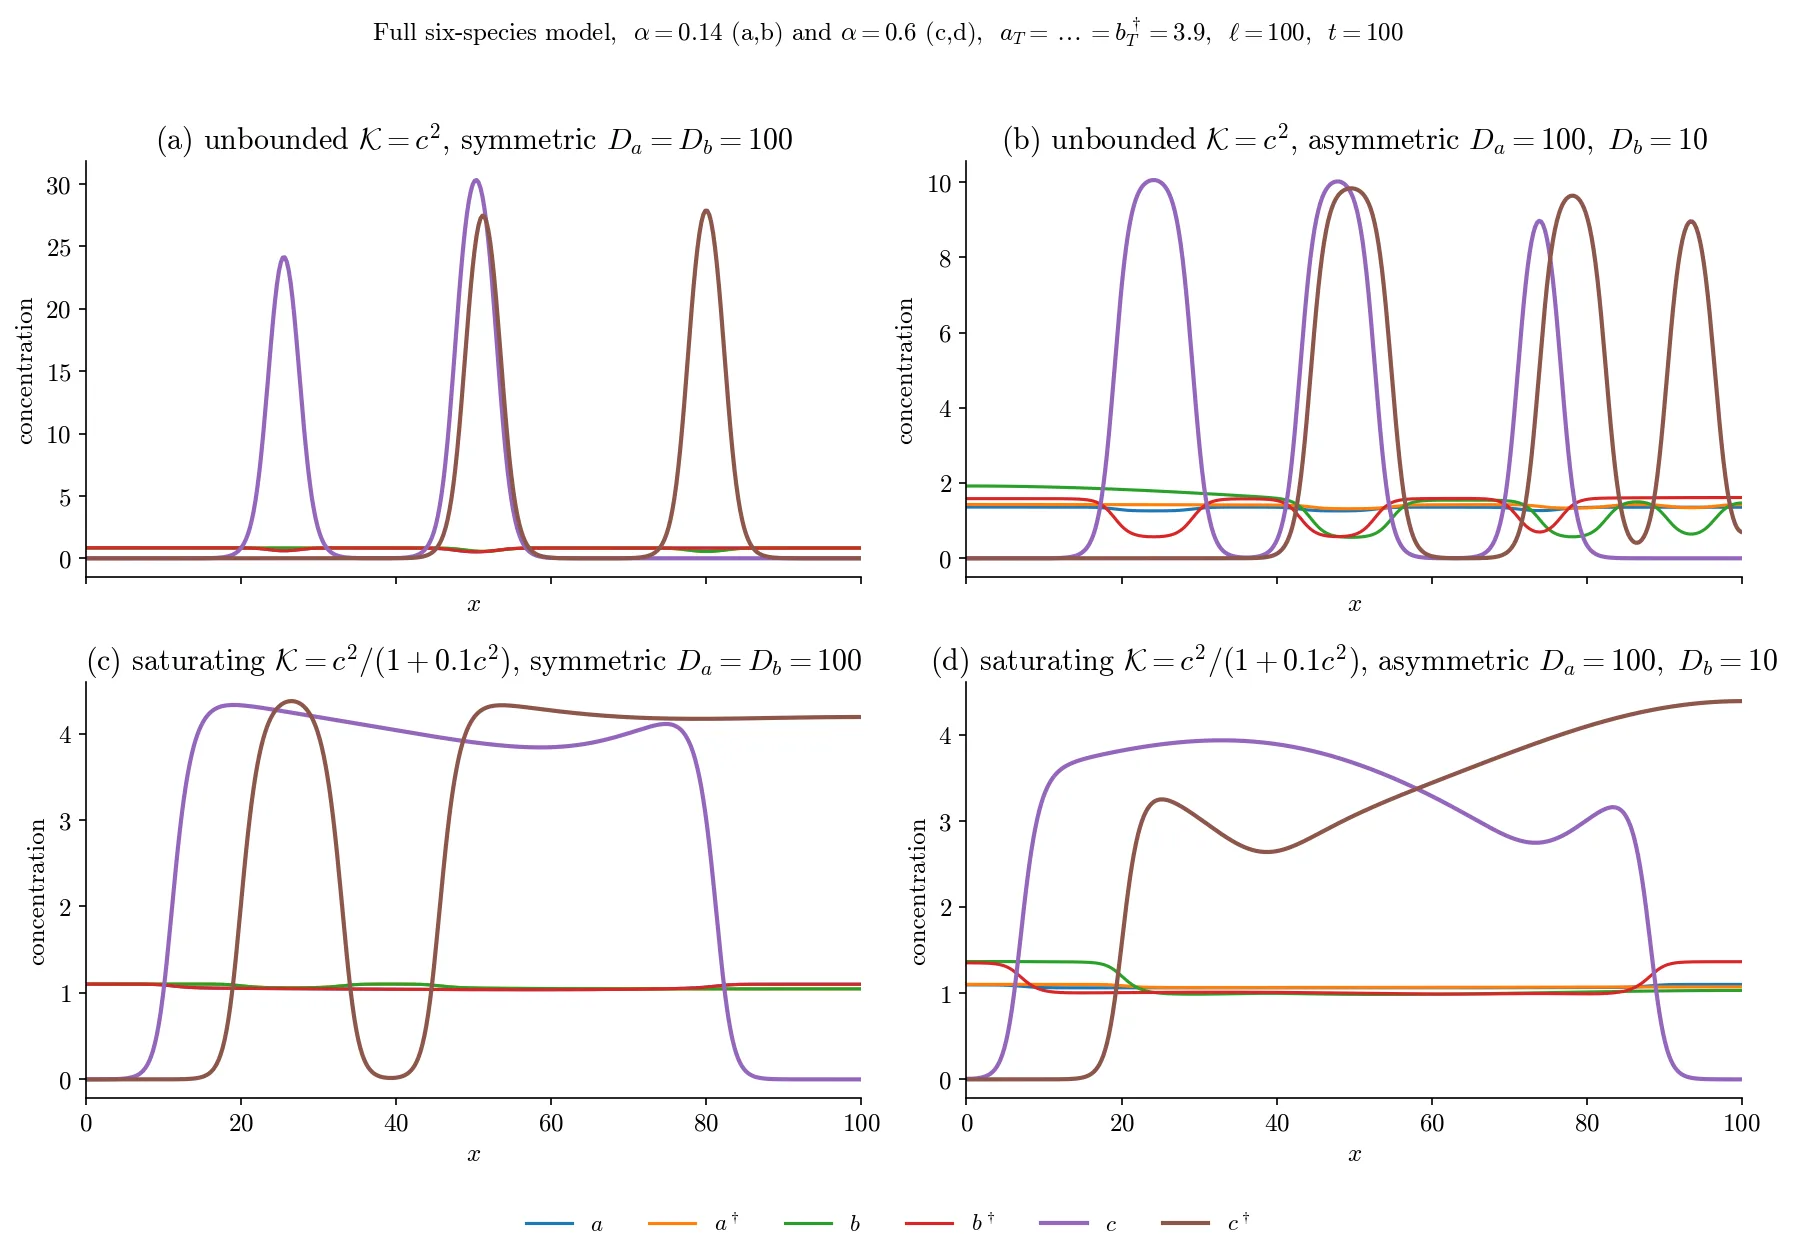
El estado homogéneo pierde estabilidad mediante un modo de redistribución de masa de longitud de onda larga, siempre que los monómeros difundan más rápido que el complejo y la retroalimentación agrupadora sea suficientemente fuerte. Para la retroalimentación ilimitada surgen picos estrechos con amplitud cmax = 3/(2αāƀ), ancho universal a media altura 4 arccosh(√2) ≈ 3.53 y distancia dada por la longitud de apantallamiento de los monómeros. Para la retroalimentación saturante se forman mesetas anchas, cuya posición del frente se determina mediante la construcción de Maxwell. Se demuestra que cualquier arreglo de puntos igualmente orientados es inestable y se fusiona en un solo punto; la velocidad de fusión para dos picos es λcomp = αā³D/(3ℓ) en el caso simétrico, y con difusiones desiguales de monómeros está determinada por la media armónica de sus coeficientes de difusión. El espectro de un punto aislado no contiene inestabilidades oscilatorias, es decir, los puntos no parpadean. La introducción de una modulación cruzada positiva V′ > 0 convierte la agrupación en clasificación: los puntos colocalizados de orientaciones opuestas se separan con velocidad λpol = 8V′cmax/7, y el criterio de clasificación no depende de la forma de la retroalimentación agrupadora.
Implicaciones
El trabajo se distingue de estudios vecinos porque considera por primera vez un transcomplejo con dos reservorios de monómeros independientemente conservados y vincula analíticamente la agrupación con la clasificación de orientaciones. A diferencia de modelos que ignoran la estructura espacial a nivel subcelular o consideran solo una especie conservada, aquí se muestra que la presencia de dos reservorios conduce a una ley de competencia cualitativamente nueva mediante la media armónica de las difusiones. Además, el trabajo proporciona un criterio exacto de clasificación basado solo en el signo de la modulación cruzada, lo que no se había establecido previamente para puntos completamente formados. Esto permite separar el control del número de puntos y su segregación orientacional en ingredientes matemáticamente independientes.
Desarrollo futuro
El tema puede desarrollarse hacia la inclusión de actores moleculares explícitos y la derivación de las funciones de retroalimentación a partir de la cinética de fosforilación y endocitosis. Otra dirección es pasar de un contacto a una célula completa, donde es necesario conectar los contactos a través de reservorios comunes e introducir un sesgo que seleccione qué orientación domina en cada borde. También es interesante encontrar la violación mínima de la conservación de masa que estabilizaría arreglos regulares de puntos, manteniendo el mecanismo de clasificación.
Impacto
El modelo puede aplicarse al análisis de datos de visualización de grupos de proteínas en contactos celulares, en particular para predecir la dependencia del número y tamaño de los puntos con la movilidad de los monómeros. También proporciona una base para construir modelos más detallados de polaridad planar que conecten las escalas molecular y celular.
Próximos pasos
El siguiente paso es desarrollar una versión biofísicamente mecanicista del modelo con componentes moleculares explícitos, donde las velocidades K y V se deriven de la cinética de fosforilación y endocitosis. Luego es necesario investigar cómo la auto-organización molecular de los puntos se transmite al nivel de polaridad celular a través del acoplamiento de contactos y la ruptura de simetría.
Problemas abiertos clave
El trabajo está directamente relacionado con el problema no resuelto de cómo las interacciones moleculares generan estructuras subcelulares estables y cómo estas estructuras se coordinan a nivel tisular. En el campo de la biología celular sigue abierta la cuestión de qué ingredientes mínimos son suficientes para la formación y mantenimiento de grupos de proteínas con recambio reducido, y cómo estos grupos contribuyen a la generación de asimetría celular. Este modelo muestra que la conservación de masa y el signo de la regulación cruzada son clave, pero para una comprensión completa se necesitan mediciones experimentales de parámetros y la verificación de las predicciones sobre la selección cinética del número de puntos.
La mirada de la máquina del conocimiento
Esta sección está dirigida al autor del trabajo y a sus colegas. Los trabajos vecinos los encontró la búsqueda por significado en nuestro archivo, no por coincidencia de palabras. No evaluamos: mostramos el campo alrededor.
Qué hace el trabajo
El trabajo construye un modelo unidimensional de reacción-difusión con conservación de masa para la agrupación de proteínas de polaridad celular planar en puntos de contacto celular. El modelo incluye dos tipos de monómeros que se unen reversiblemente en transcomplejos de dos orientaciones, con retroalimentación a través de velocidades dependientes de la concentración. Se demuestra que la agrupación surge a través de un modo de redistribución de masa de longitud de onda larga, la morfología de los puntos depende de la forma de la retroalimentación, los arreglos de puntos con la misma orientación son inestables, y la modulación cruzada del recambio de complejos conduce a la clasificación de orientaciones.
Dónde está su fuerza
Separar la agrupación y la clasificación en ingredientes matemáticamente independientes (la retroalimentación agrupadora K(c) y la modulación cruzada V(c†)) es un resultado sólido que permite estudiar estos procesos por separado. También es valiosa la conclusión de que el número de puntos está determinado cinéticamente y no por ondas, lo que conecta el modelo con la variabilidad real de los puntos.
Hacia dónde puede avanzar
- Podría ser interesante ver cómo el mecanismo de agrupación propuesto se relaciona con la dinámica observada de las proteínas de polaridad planar en tejido vivo: en el archivo hay un análisis de un trabajo sobre cómo las células construyen la frontera de crecimiento, donde se examina la organización espacial de proteínas en los contactos celulares.se apoya en: Cómo las células construyen la frontera del crecimiento arXiv:2603.28630
- Cerca hay una idea similar: en un trabajo sobre cómo las células eligen la forma del cuerpo se discute el papel de la polaridad planar en la morfogénesis; quizás su modelo de agrupación podría integrarse en una descripción a mayor escala de la polaridad tisular para vincular los puntos moleculares con la coordinación celular.se apoya en: Cómo las células eligen la forma del cuerpo arXiv:2603.07082
- En el archivo hay un análisis de un trabajo sobre cómo las proteínas curvan la membrana; dado que la agrupación de proteínas polares puede influir en la curvatura local de la membrana, podría valer la pena considerar el acoplamiento entre su mecanismo de agrupación y la deformación de la membrana.se apoya en: Las proteínas doblan la membrana como una cuchara dobla la nata de la leche arXiv:2601.15477
Vale la pena probar
- Comprobar si la separación entre agrupación y clasificación se mantiene al introducir un acoplamiento débil entre ellas, por ejemplo, mediante la dependencia de K de ambas orientaciones.
- Probar el modelo en una geometría bidimensional del contacto celular para ver cómo cambian la forma y la disposición de los puntos al considerar la geometría real.
- Comparar la dependencia predicha del número de puntos con la densidad de proteínas con datos cuantitativos de puntos en células con diferentes niveles de expresión de proteínas de polaridad.
Por qué puede importar
Si el mecanismo propuesto de agrupación y clasificación se confirma en sistemas biológicos, proporcionará una base mínima para comprender cómo las interacciones moleculares en el contacto celular generan polaridad tisular, y podría ayudar a interpretar mutaciones que alteran los puntos.
Trabajos cercanos en nuestro archivo
- Cómo la luz revela las fibras de los tejidoscercanía 0.54
- Cómo la célula ensambla rápidamente copias de ADNcercanía 0.52
- La luz se enrolla en espiral dentro del tumorcercanía 0.51
- Cómo las células construyen la frontera del crecimientocercanía 0.51
- Cómo las células eligen la forma del cuerpocercanía 0.50
- Las proteínas doblan la membrana como una cuchara dobla la nata de la lechecercanía 0.50
El archivo está vacío alrededor de este trabajo: el análisis más cercano queda en 0.54, frente a un 0.64 habitual. Parece que aquí al lado casi nadie ha perforado.
El ancho de un punto de proteína aislado en el modelo resulta universal: no depende ni de la cantidad de proteína ni de la fuerza de la retroalimentación, sino solo de la difusión del complejo y su velocidad de descomposición. Esto es similar a cómo el ancho de un atasco de tráfico no depende del número de coches, sino solo de la velocidad de reacción de los conductores.
Cifras clave
- ancho universal del punto: 3.53 (en unidades de longitud de difusión del complejo)
- densidad umbral para retroalimentación ilimitada: nf = 1.5*(12/(αℓ))^(1/3)
- coeficiente de deriva del punto en contacto: 8/7
- coeficiente de deriva del punto lejos: 5
- velocidad de fusión de ocho puntos en comparación con dos: un orden de magnitud más rápida