Manchas de tinta en el borde celular: cómo las proteínas deciden por sí mismas dónde reunirse y hacia dónde mirar ✛
Dos depósitos de tinta se encuentran a ambos lados de la unión celular. De ellos fluyen hacia la membrana dos tipos de monómeros que, al encontrarse, forman gotas viscosas de complejos. Las gotas apenas se mueven, mientras que los monómeros libres se desplazan rápidamente, como moléculas de perfume en una habitación. Así comienza la historia de cómo la célula dibuja en su borde puntos, cúmulos discretos de proteínas que más tarde marcarán la dirección del crecimiento de todo el tejido.
El modelo que construyeron los autores es simple en sus ingredientes: dos tipos de monómeros (A y B) difunden rápido, se unen reversiblemente en complejos de dos orientaciones (C y C†), y estos se arrastran lentamente. La retroalimentación entra solo a través de las velocidades de reacción: la retroalimentación agrupadora K(c) refuerza la unión donde ya hay muchos complejos, y la modulación cruzada V(c†) modifica la descomposición de los complejos según la concentración de la orientación opuesta. Sin señales externas, solo reglas locales. Y aquí comienza lo esencial: si los monómeros difunden más rápido que el complejo y la retroalimentación es suficientemente fuerte, el estado homogéneo pierde estabilidad. Pero no mediante la bifurcación de Turing de onda finita, como cabría esperar, sino mediante un modo de onda larga, una redistribución lenta de la masa total.
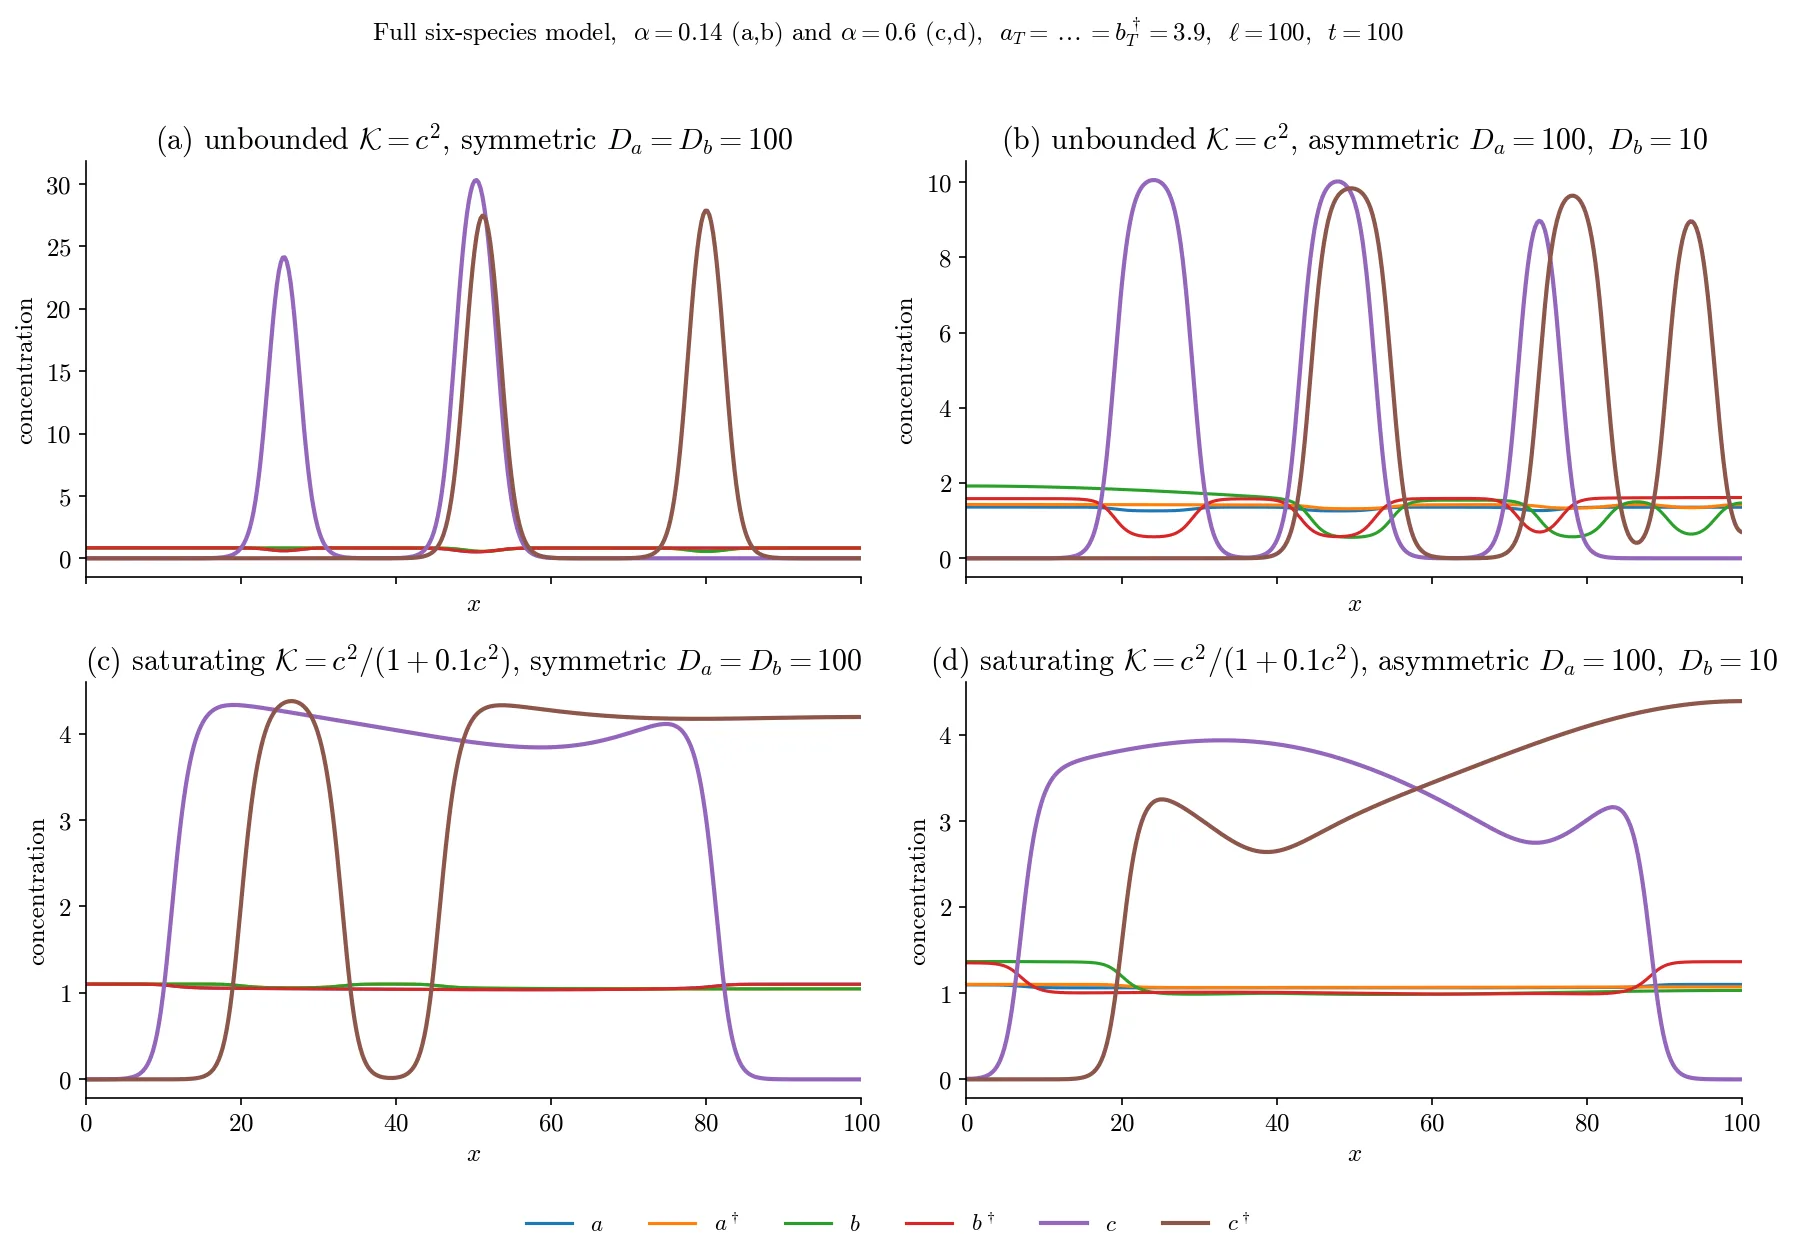
Luego, la forma de la retroalimentación decide qué se obtiene: mesetas anchas o picos estrechos. Para la retroalimentación no acotada (c²) surgen picos estrechos con una amplitud inversamente proporcional al producto de las concentraciones medias de los monómeros, y un ancho universal a media altura de 4 arccosh(√2) ≈ 3.53 en unidades de longitud de difusión del complejo. Para la retroalimentación saturante (c²/(1+ρc²)) se forman mesetas anchas, cuya posición del frente se determina mediante la construcción de Maxwell, la misma regla que describe el equilibrio de fases en física. Pero el resultado más inesperado se refiere al número de puntos. Cualquier arreglo de puntos con la misma orientación es inestable y se fusiona en uno grande. La velocidad de fusión para dos picos es proporcional al cubo de la concentración media de los monómeros y al coeficiente de difusión, y cuando las difusiones de los monómeros son desiguales, está determinada por la media armónica de sus coeficientes de difusión. Por lo tanto, el número de puntos que vemos en el contacto celular no está fijado por una longitud de onda determinada, sino que se determina cinéticamente, como la lenta coalescencia de gotas sobre un vidrio.
Ahora introducimos la modulación cruzada: supongamos que los complejos de una orientación aceleran la descomposición de los complejos de la orientación opuesta. Entonces la agrupación se convierte en clasificación. Los puntos colocalizados de orientaciones opuestas comienzan a separarse con una velocidad proporcional a la pendiente de la modulación y a la amplitud del punto. El criterio de clasificación depende solo del signo de la modulación cruzada, no de la forma de la retroalimentación agrupadora. Esto significa que el control del número de puntos y su segregación por orientación son ingredientes matemáticamente separables. La célula puede ajustarlos de manera independiente, como un artista que decide por separado cuántas manchas aplicar sobre el lienzo y cuáles de ellas mirarán hacia la izquierda y cuáles hacia la derecha.
Así, el modelo que comenzó con dos depósitos de tinta ofrece una respuesta simple a una pregunta compleja: la conservación de masa y la retroalimentación agrupadora son suficientes para la formación de puntos, su número se determina cinéticamente debido a la lenta fusión, y la clasificación de orientaciones requiere una modulación cruzada de signo definido en el recambio. Hoy esto puede usarse para interpretar experimentos de visualización de cúmulos de proteínas en contactos celulares: conociendo la movilidad de los monómeros, el modelo predice cuántos puntos se formarán y qué tamaño tendrán. Y mañana, quizás, la misma tinta ayude a dibujar un mapa de cómo la autoorganización molecular se convierte en polaridad de todo un tejido.
El ancho de un punto de proteína aislado en el modelo resulta universal: no depende ni de la cantidad de proteína ni de la fuerza de la retroalimentación, sino solo de la difusión del complejo y su velocidad de descomposición. Esto es similar a cómo el ancho de un atasco de tráfico no depende del número de coches, sino solo de la velocidad de reacción de los conductores.