Le facteur enzymatique : pourquoi le gel fond plus lentement qu'il n'avance ✛
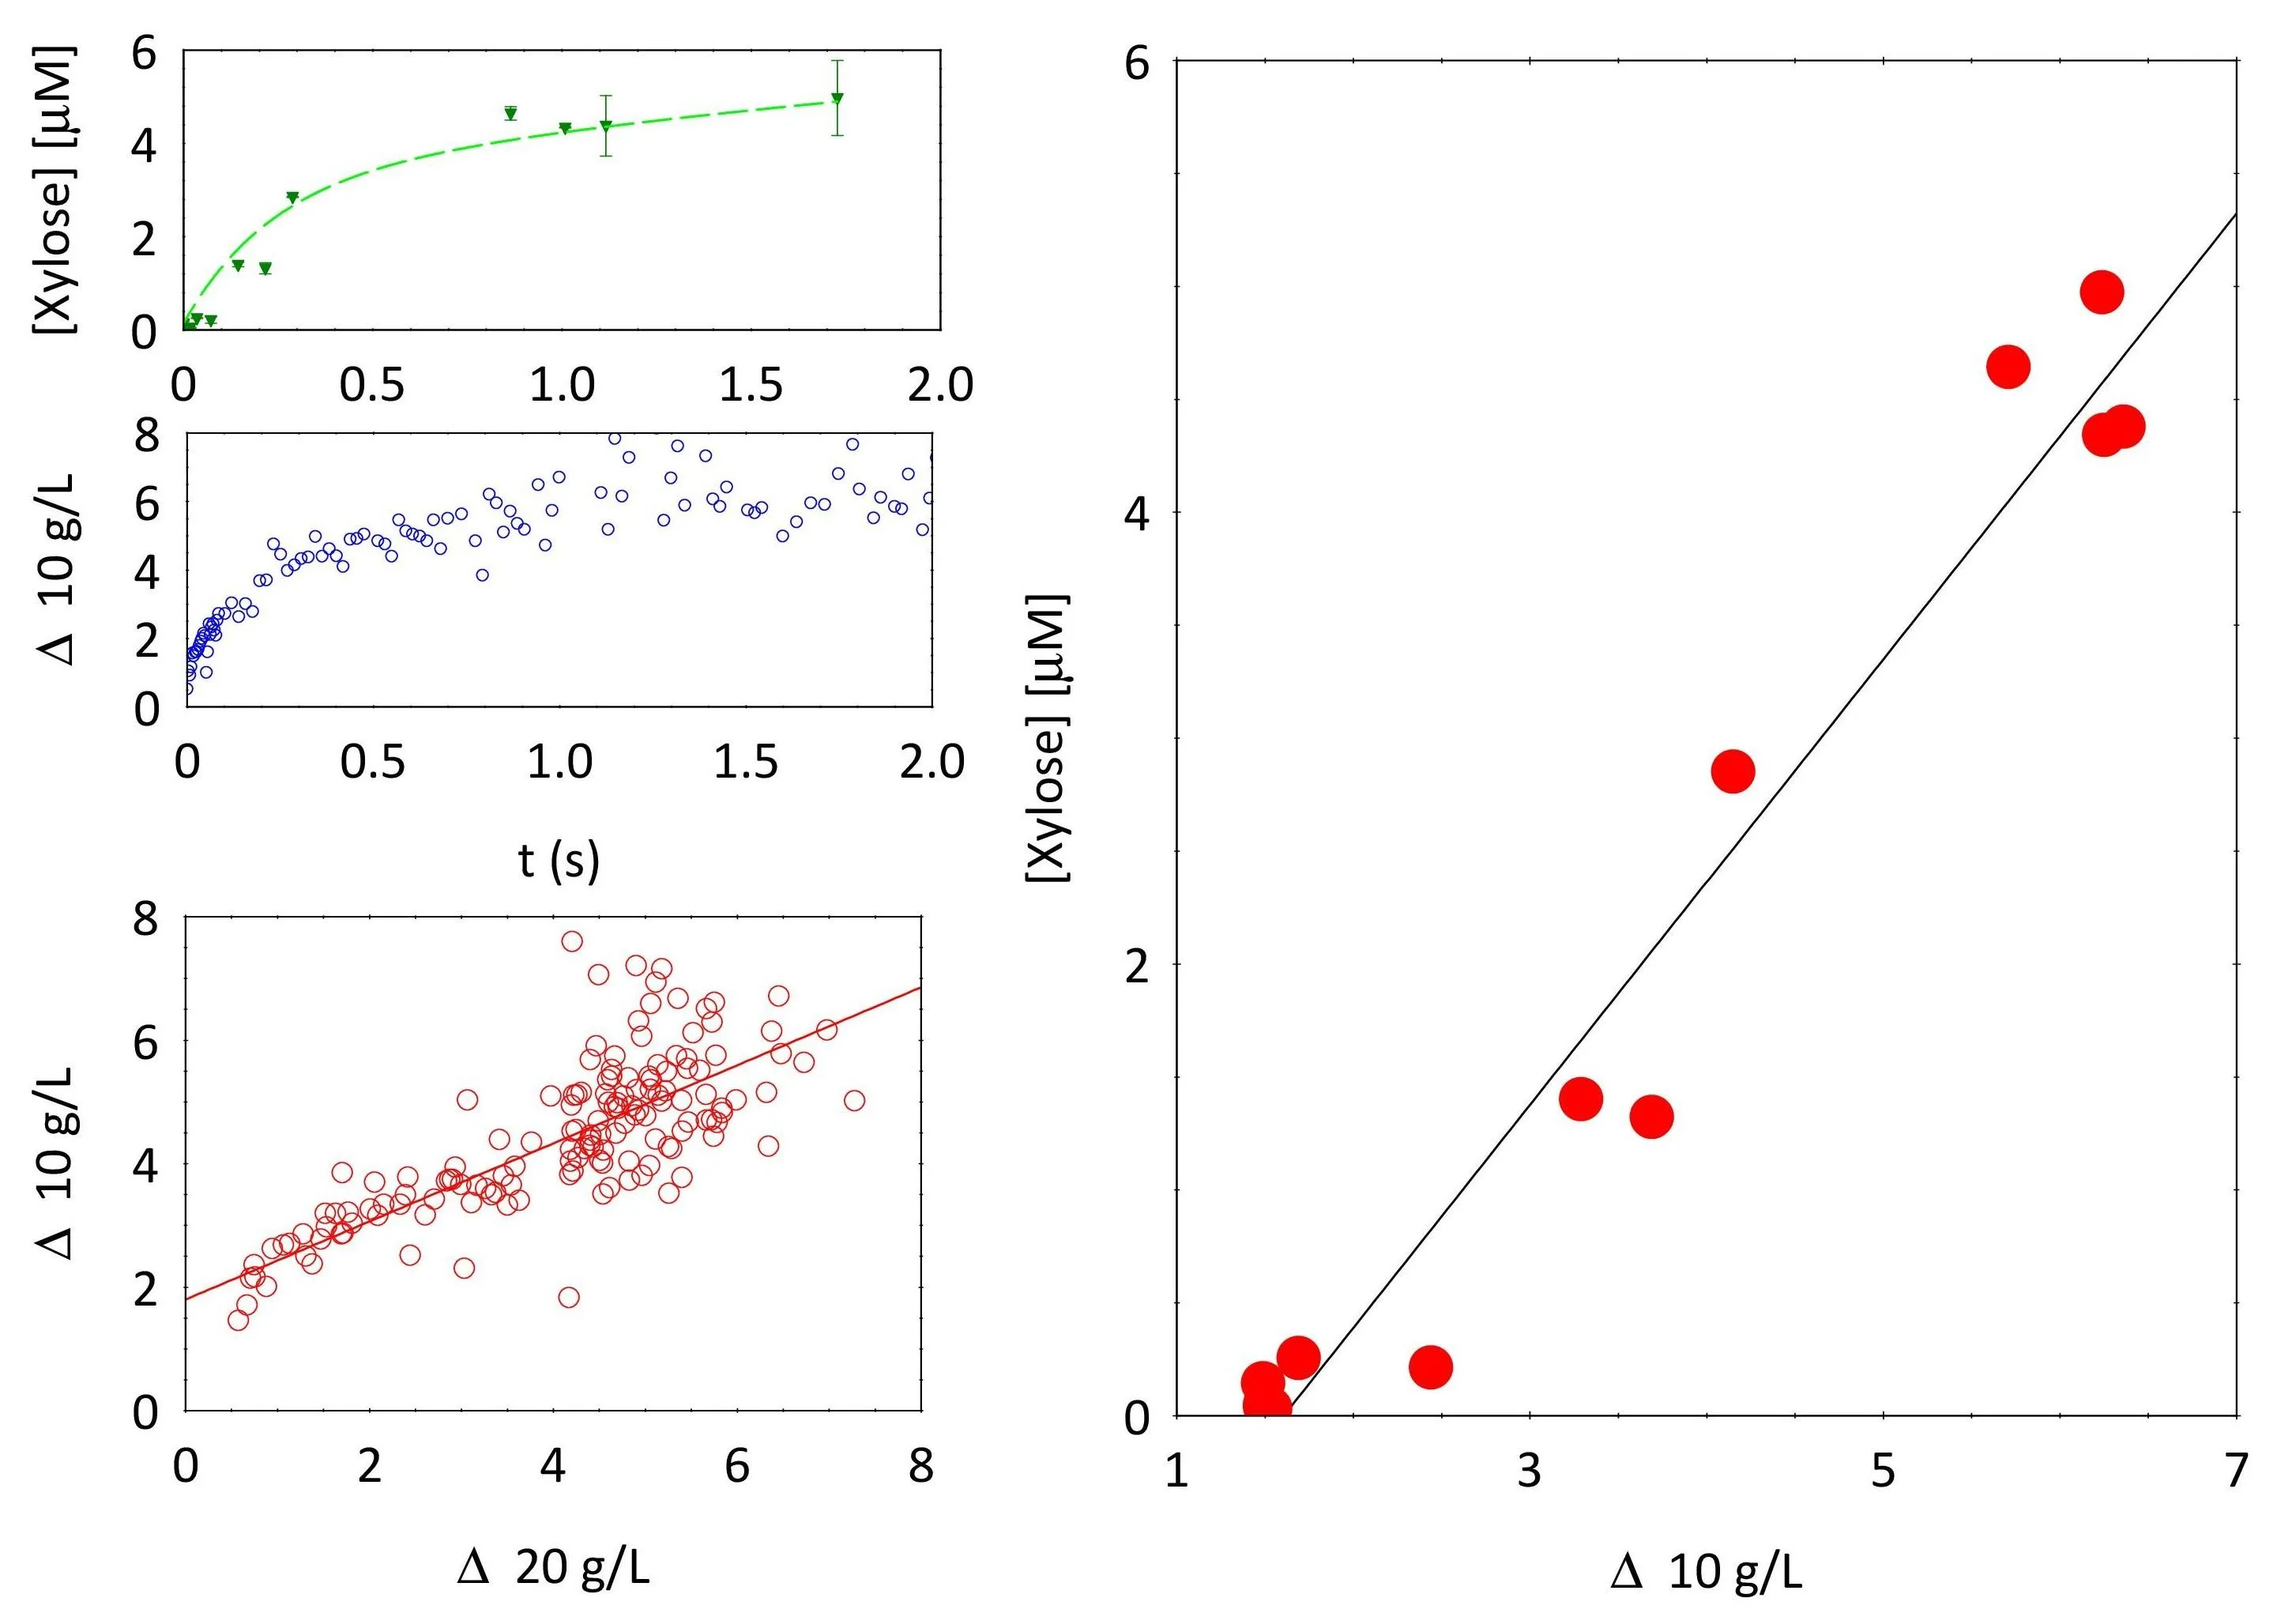
Original: "Simultaneous measurements of enzyme propagation and biopolymer mobility elucidate the directional degradation of a dense biopolymer matrix"
arXiv:2609.03792v1 · 2026-09-03 · CC BY 4.0 · 1 min
Pour la première fois, des scientifiques ont filmé simultanément un enzyme se déplacer dans un gel dense et ce gel se dégrader. Il s'avère que le lent déclin de l'énergie de l'enzyme est plus important que sa vitesse de déplacement.

Un facteur muni de ciseaux pénètre dans une forêt dense de cordes entrelacées. Il doit couper le plus de cordes possible pour se frayer un chemin vers l'intérieur. Jusqu'ici, personne ne pouvait voir à la fois le facteur avancer et la forêt s'éclaircir.

Le nouveau dispositif a filmé les deux scènes en même temps : une caméra suivait le scintillement de la lumière laser, révélant les mouvements des cordes, tandis que l'autre captait la lueur du facteur.

Il s'avère que le facteur se déplace à la même vitesse, quelle que soit sa force ou la densité de la forêt. Son mouvement n'est dicté que par l'agitation thermique des molécules. Mais la forêt fond plus lentement qu'on ne l'attendrait, car le facteur s'essouffle progressivement. Sa capacité à couper diminue d'abord rapidement, puis lentement, et c'est ce lent déclin qui détermine la vitesse à laquelle les cordes disparaissent.

Maintenant que les deux processus sont mesurés ensemble, on peut calculer plus précisément combien de facteurs et avec quelle force il faut les envoyer pour dégager la forêt dans le temps imparti. Cela sera utile pour transformer les déchets végétaux en carburant et pour concevoir des médicaments qui doivent se libérer au bon endroit dans le corps.

L'exposant 0.5 dans la loi de progression du front pour l'enzyme sauvage a d'abord suggéré un contrôle purement diffusionnel, mais les données du mutant avec un exposant de 0.7 et la modélisation ont montré qu'il s'agissait d'une coïncidence : en réalité, le front ralentit en raison de la perte progressive d'activité de l'enzyme.

f(t) = \chi \exp(-k_\alpha t) + (1-\chi) \exp(-k_\beta t)
La fraction d'enzyme active diminue selon la somme de deux exponentielles : une composante rapide avec la constante k_α et une lente avec k_β, leurs poids étant donnés par χ.
\frac{d\Delta(z,t)}{dt} = \frac{k_{cat}}{A} E(z,t) f(t) \frac{C - \Delta(z,t)}{(K_m/A) + C - \Delta(z,t)}
La vitesse d'augmentation de la mobilité du polymère Δ au point z dépend de la concentration locale d'enzyme E, de la fraction d'enzyme active f(t) et de la saturation du substrat, décrite par la constante de Michaelis K_m.
\Delta(z,t) - \frac{K_m}{A} \ln\left(\frac{C - \Delta(z,t)}{C}\right) = \frac{k_{cat}}{A} \Phi(z,t)
La mobilité Δ est déterminée par l'intégrale Φ du produit de la concentration d'enzyme par le facteur d'activité au cours du temps, ce qui donne une courbe universelle pour toutes les profondeurs.
Notions
enzyme chimiotaxie dynamique de nage des micro-organismes expression génique protéine biofilm découverte de médicaments diffusion division cellulaire biomolécule biomarqueur bioinformatique équation de Michaelis-Menten modèle épidémique transfert d'énergie mouvement collectif microbien repliement des protéines transport d'électrolyte dynamique stochastique biologique