Un facteur enzymatique dans un gel dense : qui donne le rythme ? ✛
Original: "Simultaneous measurements of enzyme propagation and biopolymer mobility elucidate the directional degradation of a dense biopolymer matrix"
arXiv:2609.03792v1 · 2026-09-03 · CC BY 4.0 · 2 min
L'enregistrement simultané du mouvement d'une enzyme et de la dégradation du gel a montré que la vitesse du processus n'est pas limitée par la diffusion, mais par la lente décroissance de l'activité enzymatique.

Un coursier chargé d'un colis s'enfonce dans une forêt dense de cordes entrelacées. Il doit livrer sa cargaison au cœur du bois, mais en chemin il perd ses forces, et chaque pas lui coûte davantage. Voilà à quoi ressemble une enzyme qui dégrade un gel dense de molécules biologiques. Jusqu'à récemment, personne ne pouvait voir à la fois comment le coursier se déplace et comment la forêt s'éclaircit.

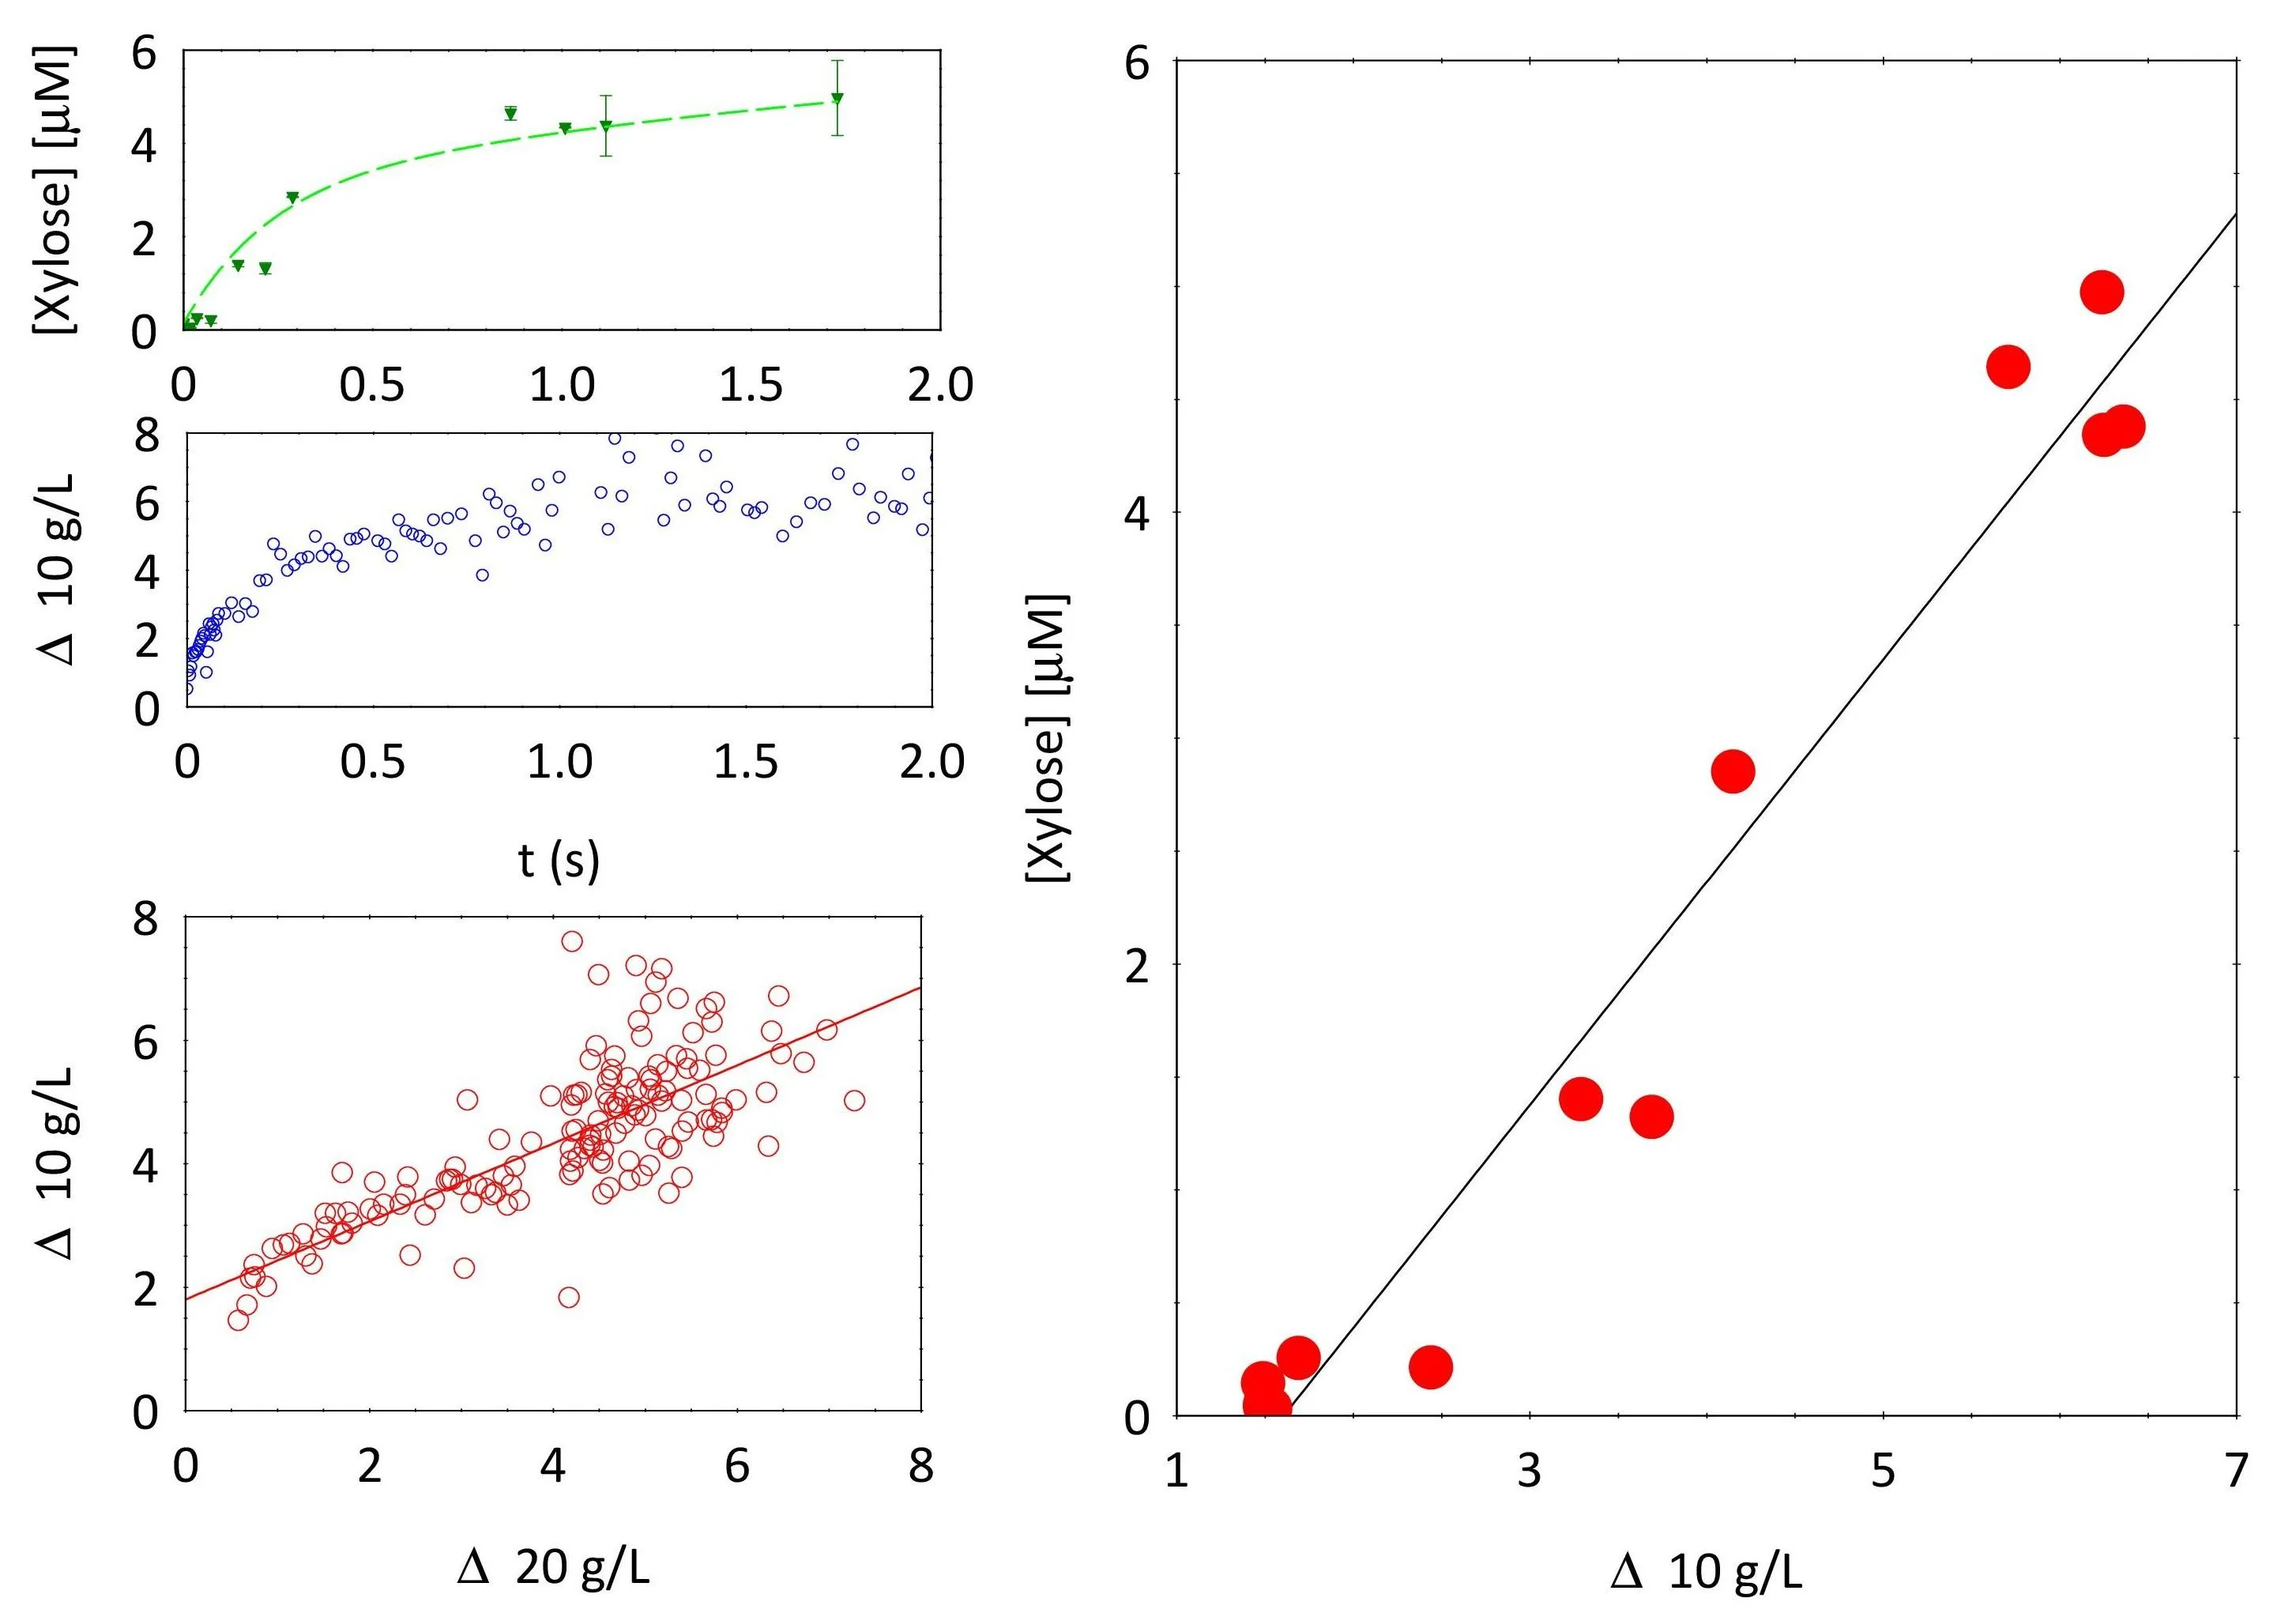
Le dispositif Fluo-PCI a, pour la première fois, capturé les deux images en même temps : une nappe laser éclairait l'échantillon, une caméra suivait les scintillements de lumière pour révéler la mobilité des chaînes polymères, tandis qu'une autre captait la fluorescence de l'enzyme marquée.

Il s'avère que le coursier avance à la même vitesse, qu'il soit plus ou moins vigoureux et que la forêt soit plus ou moins dense. Seul le mouvement thermique des molécules impose son allure. En revanche, la frontière où la forêt est déjà abattue progresse plus lentement que ce que la simple pénétration du coursier laisserait prévoir.

La raison ? Le coursier s'essouffle progressivement. Son activité décroît selon deux exponentielles : une grande partie de ses forces se perd rapidement, tandis qu'une petite fraction persiste longtemps. C'est cette lente extinction, et non la vitesse de marche, qui détermine la vitesse à laquelle la forêt fond.

Un modèle construit sur l'équation de Michaelis-Menten, enrichi d'une activité décroissante, a reproduit avec exactitude toutes les cartes expérimentales. Pour un mutant à la force affaiblie, une seule exponentielle a suffi.

Auparavant, on pensait que la dégradation du gel pouvait accélérer le déplacement de l'enzyme, mais cela ne s'est pas produit ici. Le coursier ne reçoit aucun vent favorable de son propre travail. Maintenant que les deux processus sont mesurés ensemble, on peut calculer plus précisément quelle quantité d'enzyme, et de quel type, est nécessaire pour transformer la biomasse en carburant ou pour acheminer un médicament vers le point précis du corps.

L'exposant 0.5 dans la loi de progression du front pour l'enzyme sauvage a d'abord suggéré un contrôle purement diffusionnel, mais les données du mutant avec un exposant de 0.7 et la modélisation ont montré qu'il s'agissait d'une coïncidence : en réalité, le front ralentit en raison de la perte progressive d'activité de l'enzyme.

f(t) = \chi \exp(-k_\alpha t) + (1-\chi) \exp(-k_\beta t)
La fraction d'enzyme active diminue selon la somme de deux exponentielles : une composante rapide avec la constante k_α et une lente avec k_β, leurs poids étant donnés par χ.
\frac{d\Delta(z,t)}{dt} = \frac{k_{cat}}{A} E(z,t) f(t) \frac{C - \Delta(z,t)}{(K_m/A) + C - \Delta(z,t)}
La vitesse d'augmentation de la mobilité du polymère Δ au point z dépend de la concentration locale d'enzyme E, de la fraction d'enzyme active f(t) et de la saturation du substrat, décrite par la constante de Michaelis K_m.
\Delta(z,t) - \frac{K_m}{A} \ln\left(\frac{C - \Delta(z,t)}{C}\right) = \frac{k_{cat}}{A} \Phi(z,t)
La mobilité Δ est déterminée par l'intégrale Φ du produit de la concentration d'enzyme par le facteur d'activité au cours du temps, ce qui donne une courbe universelle pour toutes les profondeurs.
Notions
enzyme chimiotaxie dynamique de nage des micro-organismes expression génique protéine biofilm découverte de médicaments diffusion division cellulaire biomolécule biomarqueur bioinformatique équation de Michaelis-Menten modèle épidémique transfert d'énergie mouvement collectif microbien repliement des protéines transport d'électrolyte dynamique stochastique biologique