Por qué el reconocimiento biológico no se rompe, sino que cambia suavemente exprés
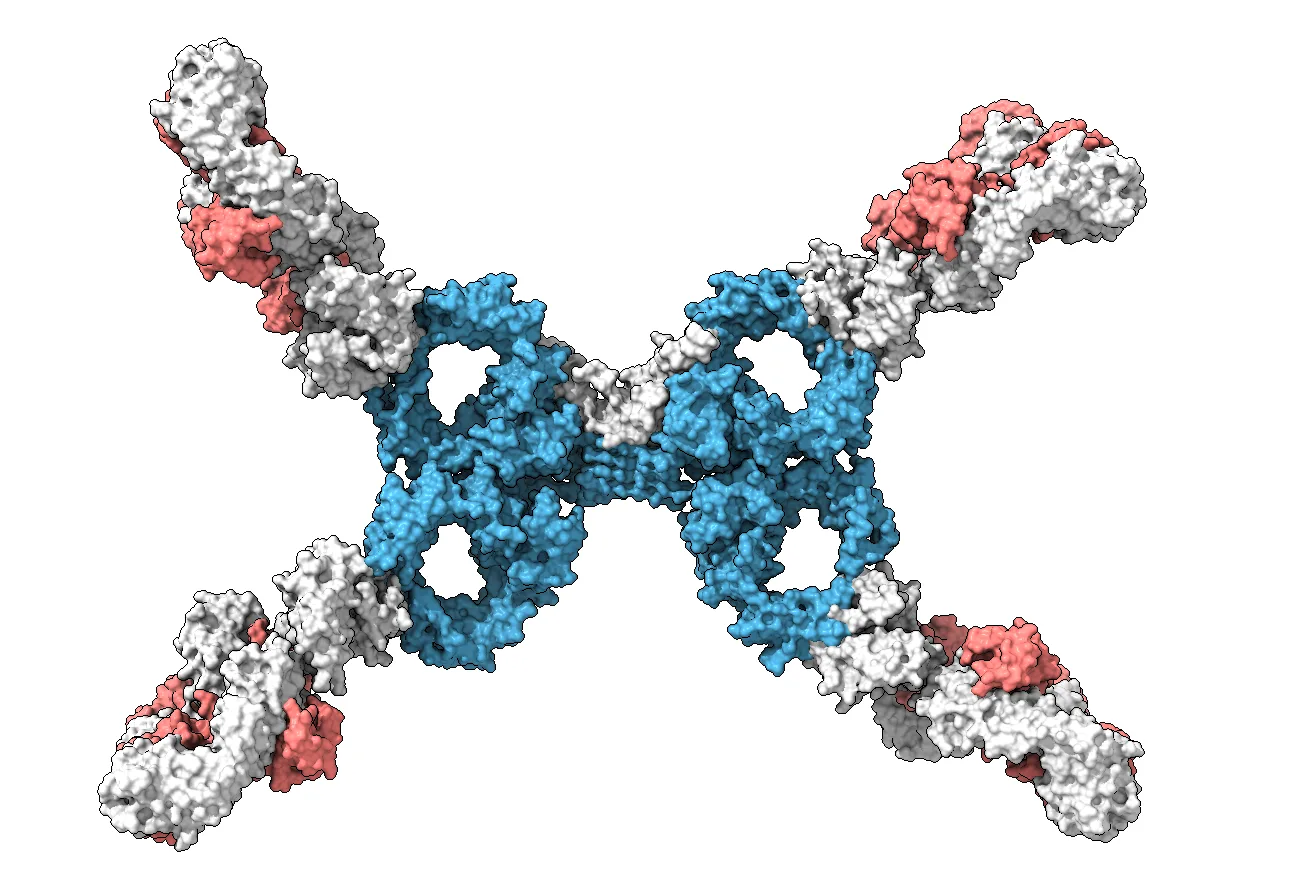
Cuando un anticuerpo encuentra un virus, no se aferra a él con un único agarre mortal. Más bien, se parece a dos racimos de uvas que ruedan en el agua y se enganchan entre sí con decenas de zarcillos cortos. Cada zarcillo por sí solo es débil: se rompe fácilmente por el temblor térmico de las moléculas de agua, pero juntos sujetan con firmeza.
En la nueva revisión, este proceso se ha reformulado en el lenguaje de la mecánica estadística. Resulta que la tarea de contar todas las formas posibles de acoplamiento entre dos superficies cubiertas de velcro se reduce a un viejo rompecabezas matemático: el problema de monómeros y dímeros en un grafo. Y la solución de este rompecabezas dice sin ambigüedad: la unión multidiente no conoce transiciones de fase bruscas. El cambio es siempre suave, como girar una perilla de volumen, no como un chasquido de interruptor. Por eso la célula viva puede ajustar finamente sus respuestas.
De este comportamiento suave se derivan tres restricciones estrictas. Primero, el abrigo repulsivo en la superficie de la molécula no es un capricho de la evolución, sino un detalle obligatorio: sin él, todos los velcros se pegarían caóticamente. Segundo, los enlaces no actúan de forma independiente: el cierre de uno afecta la disponibilidad de los vecinos. Tercero, dado que la energía de enlace entra en la velocidad de reacción a través de una exponencial, un cambio diminuto en el número de receptores —digamos, de diez a doce— puede alargar el tiempo de retención en cientos de veces. Las mismas ecuaciones describen el trabajo de los anticuerpos, la captura de partículas grasas por las lipoproteínas, y cómo las células T examinan la superficie de otras células en busca de un extraño. En todos los casos, lo decisivo no es la fuerza de un contacto individual, sino cómo la pegajosidad total se distribuye entre muchos puntos débiles. La afinidad es una propiedad de una molécula individual, pero la selectividad es una propiedad de todo el conjunto.
Así que el reconocimiento biológico no se parece a una cerradura con llave, sino a una multitud de personas que se sujetan unas a otras por la ropa: nadie agarra con fuerza, pero todos juntos evitan que alguien se caiga. Y si uno suelta el borde del abrigo, toda la estructura se reajusta suavemente, no se derrumba de golpe.
Resumen original
tal como lo escribieron los autores, en inglés arXiv:2608.08571v1
Biological recognition rarely rests on one strong bond. It works by forming many weak ones at once, between crowded, deformable surfaces in water. This review develops that process as a problem in statistical mechanics. Counting the ways two multivalent objects can bind proves to be the classical monomer-dimer problem on a graph, with a rigorous consequence: the apparent switching of multivalent binding is always a smooth crossover, never a phase transition. Three constraints follow. A repulsive surface layer is obligatory rather than a design choice; bonds do not act independently; and since free energies enter rates exponentially, small changes in receptor number shift binding lifetimes by orders of magnitude. One set of equations then covers antibodies, lipoproteins, and T cell recognition. In each, what decides the outcome is not the strength of any single bond but how a fixed total is spread over many: affinity is a property of a molecule, selectivity a property of an assembly.
Una célula T, al revisar una célula del cuerpo, forma y rompe cientos de contactos débiles por segundo, como una persona que tantea rápidamente las teclas buscando la nota correcta.