A principios del siglo XX, el fisiólogo británico Archibald Hill estudiaba cómo se contraen los músculos y notó un patrón extraño: la unión del oxígeno a la hemoglobina no era lineal, sino que se aceleraba. Dedujo una ecuación que más tarde se adoptó en la cinética enzimática. La esencia es simple: muchas proteínas enzimáticas no trabajan solas, sino en equipo. Cuando una molécula de sustrato se une a la enzima, facilita la unión de la siguiente — esto es cooperatividad. La gráfica de velocidad frente a concentración se asemeja a una letra S: inicio plano, subida empinada, meseta. La ecuación de Hill condensa este comportamiento en dos números: la velocidad máxima y la constante de semisaturación — la concentración a la que la enzima está ocupada a la mitad. Y el coeficiente de cooperatividad (símbolo n) indica qué tan coordinadamente trabajan las subunidades: si n=1, cada una por su cuenta; si n>1, una reacción en cadena de ayuda mutua.
Historia
Archibald Hill, en 1910, siendo estudiante en Cambridge, investigó la curva de disociación del oxígeno para la hemoglobina. Observó que los modelos hiperbólicos simples no describían la forma de S de la gráfica y propuso una ecuación empírica con un exponente variable. Más tarde, en los años 1920, Leonor Michaelis y Maud Menten desarrollaron una teoría cinética más rigurosa para enzimas no cooperativas, pero la ecuación de Hill se mantuvo como una herramienta práctica para evaluar rápidamente la cooperatividad. El propio Hill recibió el Premio Nobel en 1922 por sus investigaciones sobre los músculos, y su ecuación se convirtió en un estándar en bioquímica y farmacología.
Cómo funciona
Se utiliza para determinar parámetros de unión: en la gráfica de log(v/(V_max-v)) frente a log[S] (gráfica de Hill), la pendiente de la recta da n, y la intersección con el eje da log(K_0.5). En farmacocinética, la ecuación describe la saturación de enzimas que metabolizan fármacos, lo cual es crítico para el cálculo de dosis. Límites de aplicabilidad: el modelo supone cooperatividad infinita (todo o nada), lo que rara vez se cumple en sistemas reales; para una descripción precisa de la cooperatividad parcial se usan modelos como el de Adair o el de Monod-Wyman-Changeux.
En la práctica
Cálculo de dosis de medicamentos para que las enzimas hepáticas no se saturen por sobrecarga, y diseño de biorreactores con velocidad de reacción óptima.
Dato curioso
La hemoglobina es un ejemplo clásico de cooperatividad: en los pulmones capta oxígeno ávidamente (n≈2.8), y en los tejidos, donde hay poco oxígeno, lo libera con la misma brusquedad. Sin esta curva en forma de S, nos asfixiaríamos incluso con un esfuerzo leve.
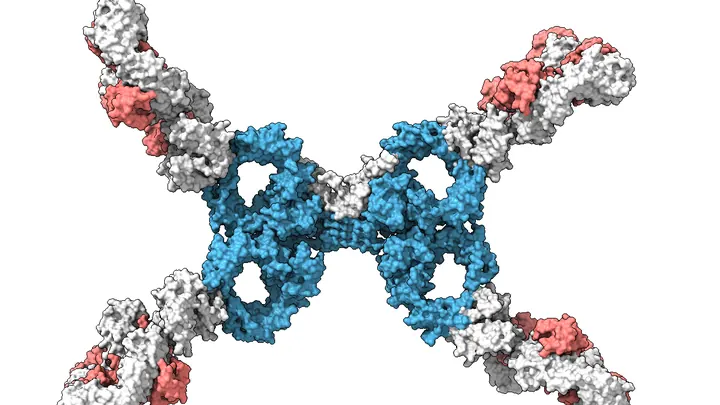
Cuando un anticuerpo encuentra un virus, no se aferra a él con un único agarre mortal. Más bien, se parece a dos racimos de uvas que ruedan en el agua y se enganchan entre sí con decenas de zarcillos cortos. Cada zarcillo por sí solo es débil: se rompe fácilmente por el temblor térmico de las moléculas de agua, pero juntos sujetan con firmeza.
Dentro de cada célula, constantemente hay moléculas que se encuentran y se separan. Algunas parejas se mantienen unidas con fuerza, como un velcro; otras apenas se rozan, como el polen al viento. Son precisamente estos roces fugaces, cuya fuerza de unión es comparable a la disolución de un grano de sal en un vaso de agua, los que controlan muchas señales y decisiones celulares.
Un coro en el que cada cantante entona perfectamente suena más fuerte de lo que se esperaría de la simple suma de voces. Cien personas no cantan cien veces más fuerte que una, sino diez mil veces más. En el mundo atómico ocurre algo similar. En lo que se conoce como comportamiento colectivo, descubierto por Robert H.
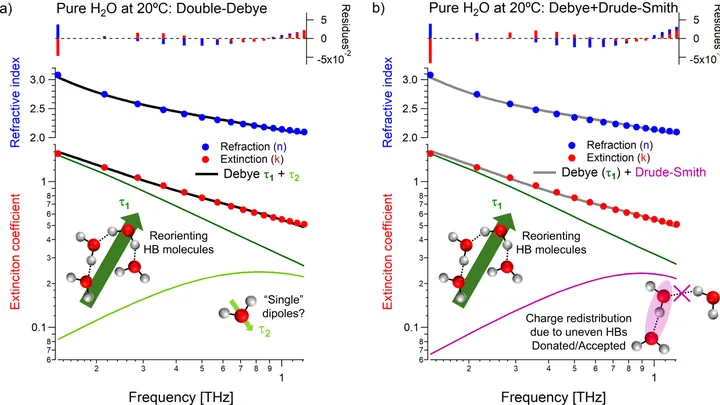
El agua no es simplemente una sustancia mojada. A escala de picosegundos, se asemeja a una pista de baile donde las moléculas rompen y crean enlaces continuamente. Normalmente, este baile se describe con un movimiento principal: la relajación colectiva, como si toda la multitud se desacelerara al mismo tiempo después de apagar la música.
Una esponja de cocina empapada en almíbar: en algunos lugares hay más almíbar y el dedo se pega de inmediato; en otros, apenas lo toca. Así es más o menos la superficie de un catalizador. Las moléculas no reaccionan en todas partes, sino en puntos especialmente pegajosos: los centros activos.
Una proteína es un imán diminuto de forma compleja, y una nanopartícula es una esfera lisa. Dependiendo de qué lado de la proteína se acerque a la esfera, la fuerza de atracción es diferente.
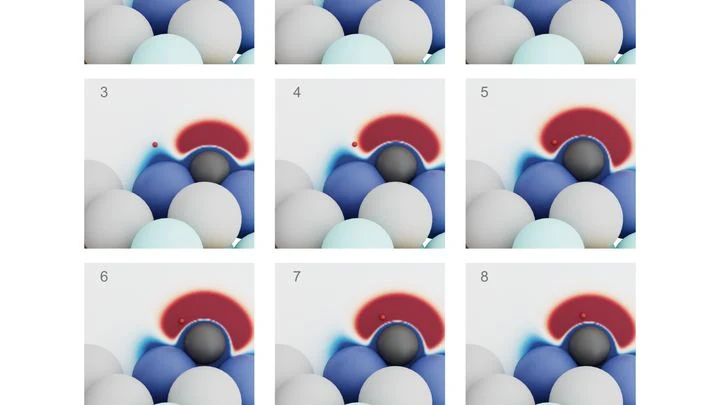
El hidrógeno es el combustible más ligero, y su conversión en electricidad sobre la superficie de un metal recuerda a un partido de ping-pong: los átomos de hidrógeno se unen y se desprenden del electrodo. Pero el marcador de este juego no depende de la acidez de la disolución como se esperaba.
Dentro de cada músculo hay un equipo de remeros: las proteínas de miosina, que se agarran a los filamentos de actina, dan una palada y sueltan. El combustible para la palada es la molécula de ATP. Cuando los remeros trabajan coordinados, el músculo se contrae y el cuerpo se mueve.
Una reacción química ordinaria es como una pelota que rueda cuesta abajo: tiene un único camino natural. Pero si colocas las moléculas en una diminuta caja de espejos —un microresonador óptico—, la luz en su interior comienza a interferir con el movimiento de la pelota. Puede empujarla, frenarla o incluso dividir su trayectoria en dos.
Un intérprete se distrae con cada ruido en la sala y la reunión de una hora se convierte en dos. Algo parecido hacen las moléculas individuales atrapadas entre dos contactos metálicos: cambian constantemente de forma y de posición, y eso influye en cómo circulan por ellas la corriente y el calor.
En 1979, Su, Schrieffer y Heeger propusieron un modelo que explicaba las extrañas propiedades eléctricas del poliacetileno, un polímero orgánico que conduce la electricidad casi como un metal.