La partition de la reproduction : comment l'entropie prédit l'âge reproductif
Un orchestre joue une partition où chaque note est une naissance à un âge donné. Chez certaines espèces, les notes sont regroupées en une courte phrase sonore, chez d'autres elles s'étirent sur toute la vie. Le rythme de cette distribution obéit, on l'a découvert, à une loi mathématique que l'on peut calculer à partir des tables de survie.
Des chercheurs de Lisbonne et de San Antonio ont pris pour base les matrices de Leslie, des tableaux où figurent, pour chaque âge, les chances de survivre et le nombre de petits mis au monde. De ces tableaux, ils ont tiré une grandeur qu'ils ont appelée entropie évolutive. Elle mesure à quel point la reproduction est répartie uniformément selon l'âge : si une espèce se reproduit toujours au même âge, l'entropie est faible ; si les contributions s'étalent sur des décennies, elle est élevée. Étonnamment, l'entropie ne dépend ni de la fécondité de l'espèce ni de sa longévité, mais uniquement de la forme de la distribution.
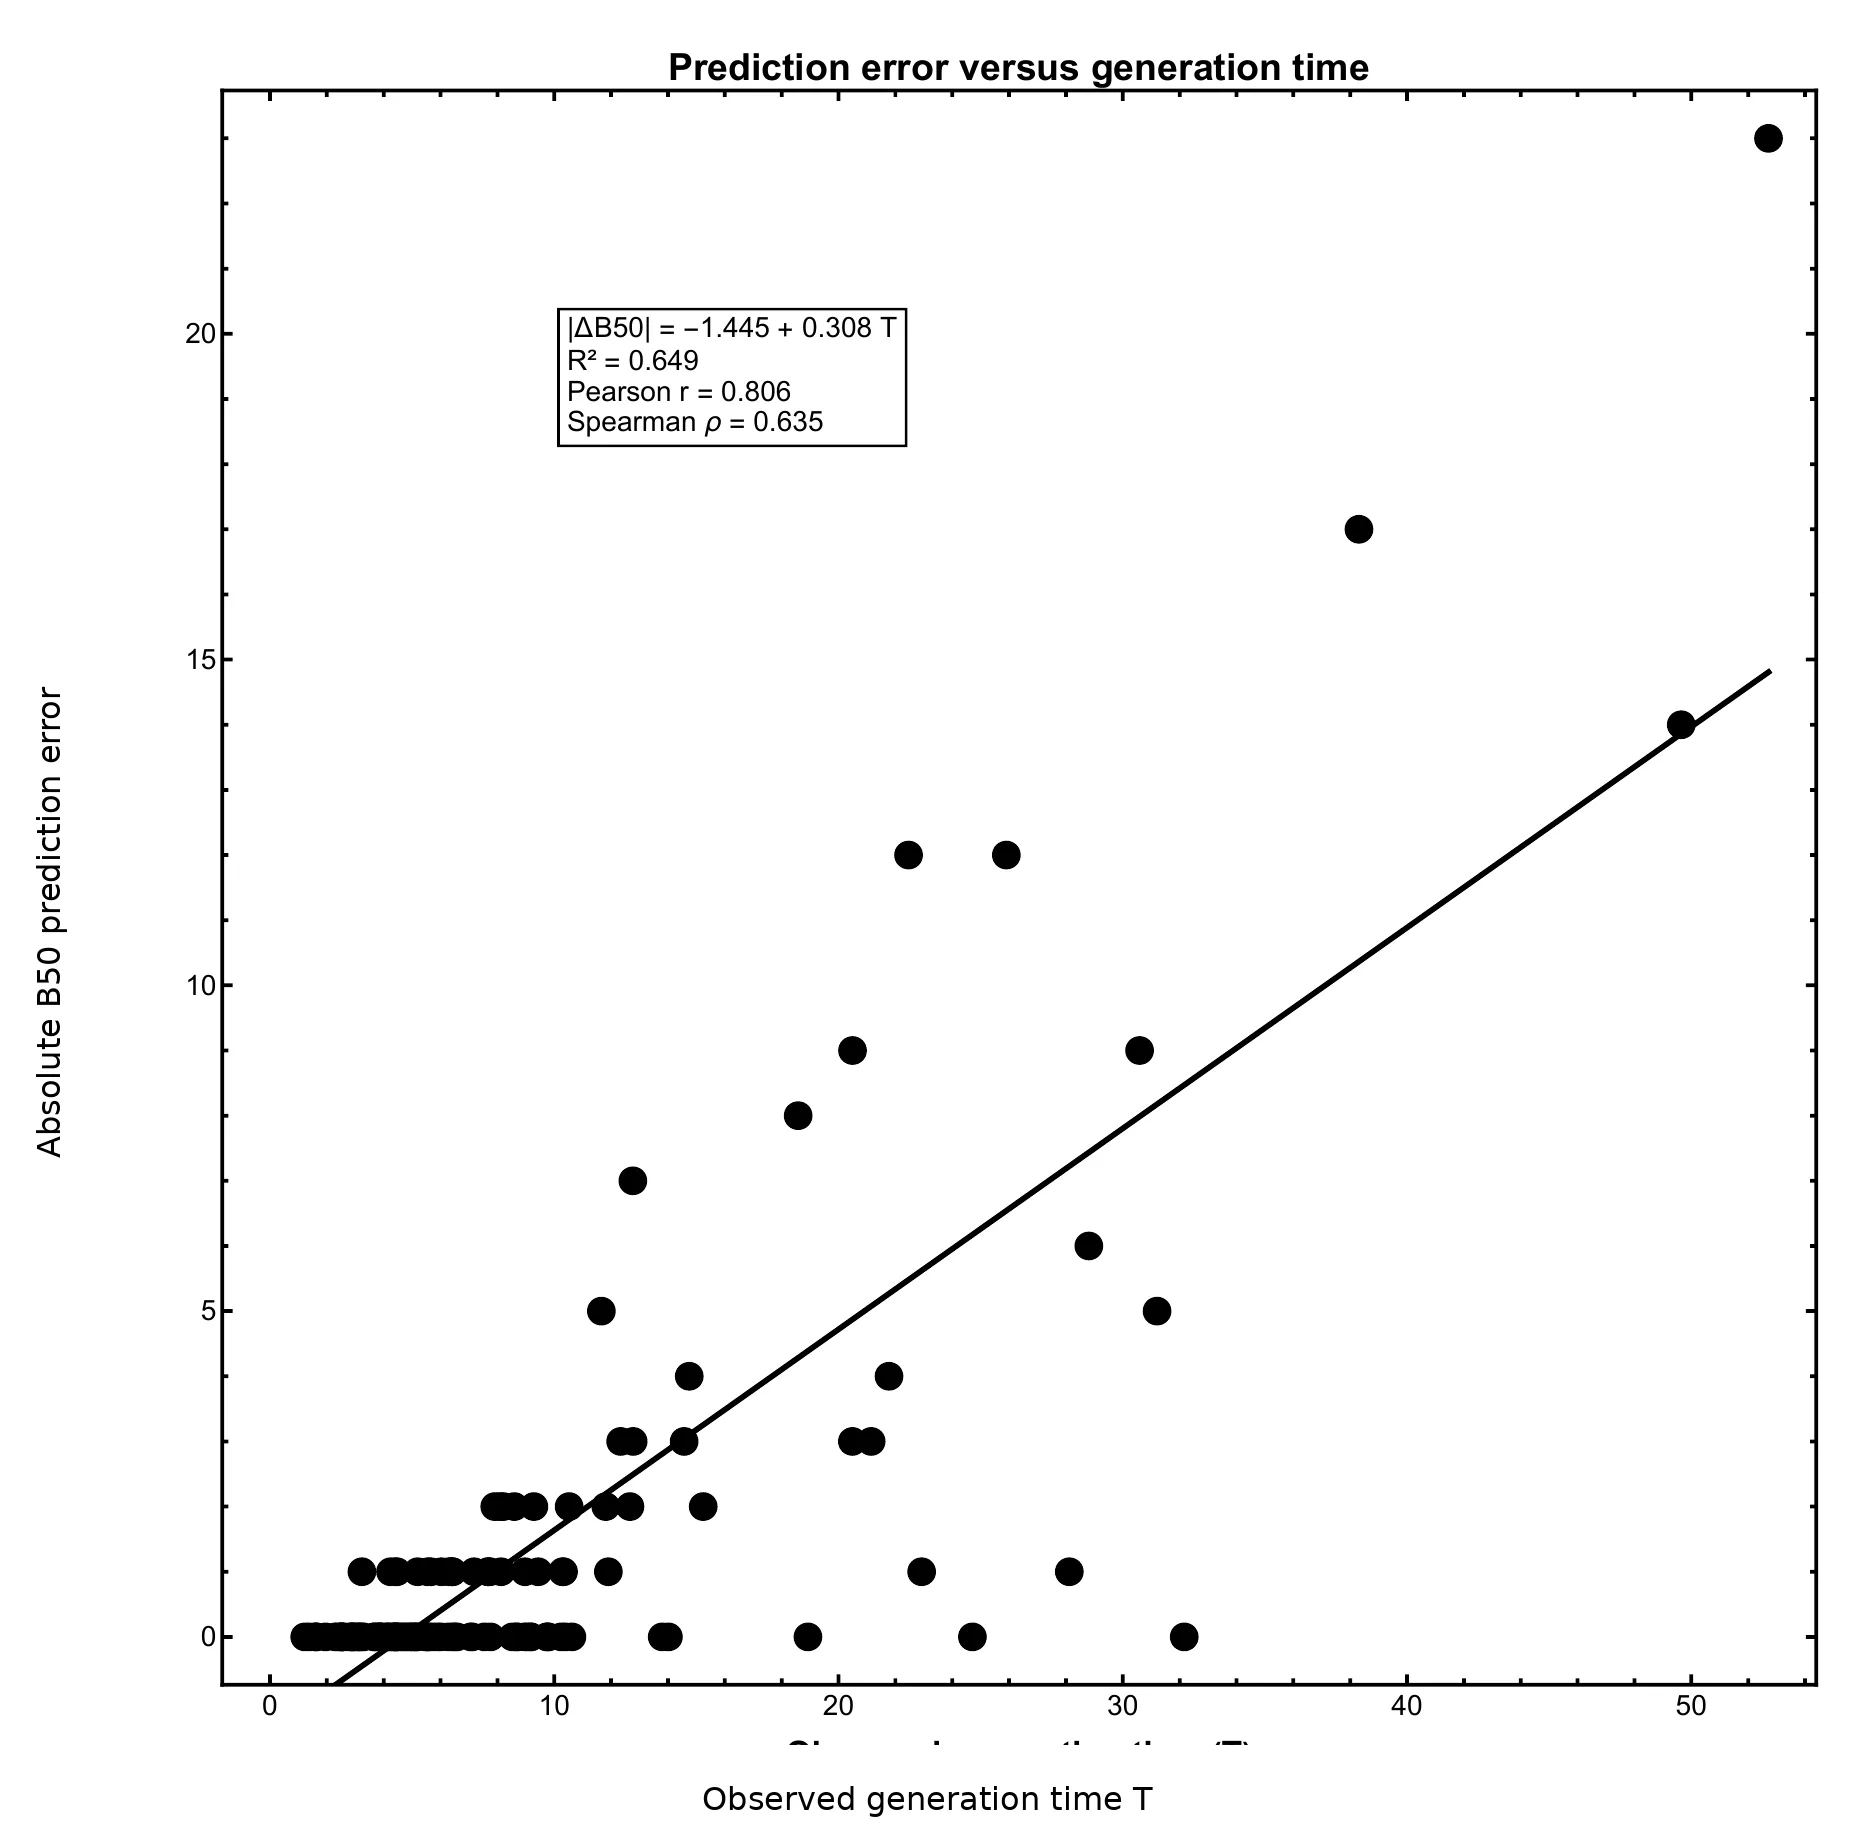
Une vérification sur 130 espèces animales de la base COMADRE a montré une forte concordance. Chez 61 % des espèces, les médianes reproductives prédite et observée coïncidaient exactement, et chez 85,8 % à deux classes d'âge près. Même après avoir tenu compte de la parenté entre espèces, la corrélation entre la médiane prédite et l'âge reproductif moyen atteignait 0,884. Autrement dit, la partition de la reproduction est réglée sur le maximum d'entropie chez la plupart des espèces.
On pensait auparavant que le calendrier reproductif était déterminé par les courbes de survie, de type I, II ou III. Mais le modèle a montré que des espèces aux courbes différentes peuvent avoir des distributions reproductives identiques. L'optimisation entropique fournit des bornes inférieures biologiquement pertinentes pour la durée de la reproduction, et les distributions géométriques, qui apparaissent naturellement dans les populations ouvertes, y jouent un rôle central.
L'intérêt pratique est évident : à partir des seules tables démographiques, on peut évaluer la stratégie reproductive d'une espèce sans passer des années en observations de terrain. C'est un outil pour la démographie comparée et la conservation de la nature. L'orchestre de la vie joue une partition que l'on peut désormais lire.
Parmi les espèces analysées figure le béluga (Huso huso), l'un des poissons les plus longévifs, dont la prédiction de la médiane reproductive s'écarte de 23 classes d'âge : la plus grande dispersion de l'échantillon.
L'idée que la répartition des contributions reproductives puisse se décrire par l'entropie fait écho à la notion de « pression démographique » dans le roman Les Dépossédés d'Ursula Le Guin, où une société régule consciemment sa reproduction pour maintenir l'équilibre.