Entropie de la vie : comment la répartition de la reproduction prédit l'âge reproductif
Contexte
Ce travail se situe en marge des recherches en démographie évolutive, où les articles voisins étudient le vieillissement cellulaire, le bruit dans les systèmes biologiques, les réseaux phylogénétiques et le transfert horizontal de gènes. Contrairement à eux, il se concentre sur la structure par âge des populations et sur l'optimisation mathématique du calendrier reproductif. La démographie classique décrit une population par son taux net de reproduction et son taux de croissance, mais n'explique pas comment la contribution reproductive se répartit dans le temps. Cet article comble cette lacune en montrant que l'entropie évolutive, introduite par Demetrius, est une mesure de l'organisation temporelle de la reproduction et peut prédire les fenêtres de reproduction.
Méthodes
Les auteurs ont élaboré un appareil mathématique pour les populations structurées par âge, décrites par des matrices de Leslie. Ils ont dérivé une fonctionnelle d'entropie évolutive ne dépendant que de la distribution normalisée des contributions reproductives, et démontré un théorème d'homogénéité : l'entropie ne change pas lorsqu'on multiplie la survie ou la fécondité par une constante. Pour les populations finies et ouvertes à queue géométrique, des formules explicites de l'entropie ont été obtenues. Le résultat clé est un théorème de seuil : il existe une valeur critique du paramètre q (rapport entre survie et taux de croissance), qui sépare les régimes à maximum fini d'entropie et ceux à croissance monotone. La théorie a été testée sur 130 espèces animales de la base COMADRE, en comparant les classes d'âge optimales du point de vue entropique à des données indépendantes sur l'âge de première reproduction, la durée reproductive moyenne et d'autres traits d'histoire de vie.
Résultats
L'accord empirique s'est révélé solide. Chez 61 % des espèces, les médianes reproductives prédites et observées coïncident exactement ; chez 85,8 %, à deux classes d'âge près ; et plus de 90 % des espèces sont prédites à trois classes près. Les coefficients de recouvrement et de Bhattacharyya montrent que les distributions dérivées de l'entropie saisissent la forme de la contribution reproductive, et pas seulement un âge de synthèse. Après correction phylogénétique fondée sur Open Tree of Life, les corrélations restent fortes : par exemple, entre la médiane prédite et l'âge reproductif moyen observé, r = 0,884 (p < 10⁻³⁰). Le théorème de seuil a correctement classé les régimes d'entropie pour toutes les populations ouvertes, sauf trois espèces dont la survie franchissait le seuil.
Implications
Ce travail se distingue des études voisines en traduisant la question de l'organisation reproductive, des courbes descriptives de survie vers le langage des distributions de probabilité. Il montre que les types classiques de courbes de survie (I, II, III) ont un pouvoir explicatif limité pour le calendrier reproductif : des espèces aux courbes différentes peuvent avoir des distributions reproductives semblables. L'optimisation entropique fournit des bornes inférieures biologiquement pertinentes de la durée reproductive, et les distributions géométriques, qui apparaissent naturellement dans les populations ouvertes, y jouent un rôle central. C'est le premier test à grande échelle de la théorie de la maximisation de l'entropie sur des données réelles avec correction phylogénétique.
Développements futurs
Le sujet peut se développer dans trois directions : propager l'incertitude des matrices démographiques vers les calculs d'entropie ; analyser directement des modèles structurés par stade et saisonniers au lieu de les ramener de force à des matrices de Leslie annuelles ; et intégrer la stochasticité environnementale via des produits aléatoires de matrices. Chacune de ces extensions permettra de vérifier si la régularité mise au jour est une propriété robuste de l'organisation reproductive ou un artefact des matrices annuelles déterministes.
Impact
Les résultats influeront sur la démographie comparative, la biologie évolutive des cycles de vie et, peut-être, sur les modèles de gestion des populations en conservation de la nature.
Prochaines étapes
L'étape suivante consiste à mener une analyse au niveau des populations, en utilisant plusieurs matrices pour une même espèce, afin de tester la robustesse des fenêtres optimales du point de vue entropique face à la variabilité écologique.
Problèmes ouverts clés
L'article est directement lié à un problème non résolu de la démographie évolutive : quels mécanismes déterminent la durée de la vie reproductive. Il n'affirme pas que la sélection naturelle maximise directement l'entropie, mais il met en évidence une régularité quantitative qu'il reste à expliquer. Cela relie le travail à la question fondamentale du rôle des contraintes physiologiques, du filtrage écologique et du hasard historique dans la formation des cycles de vie.
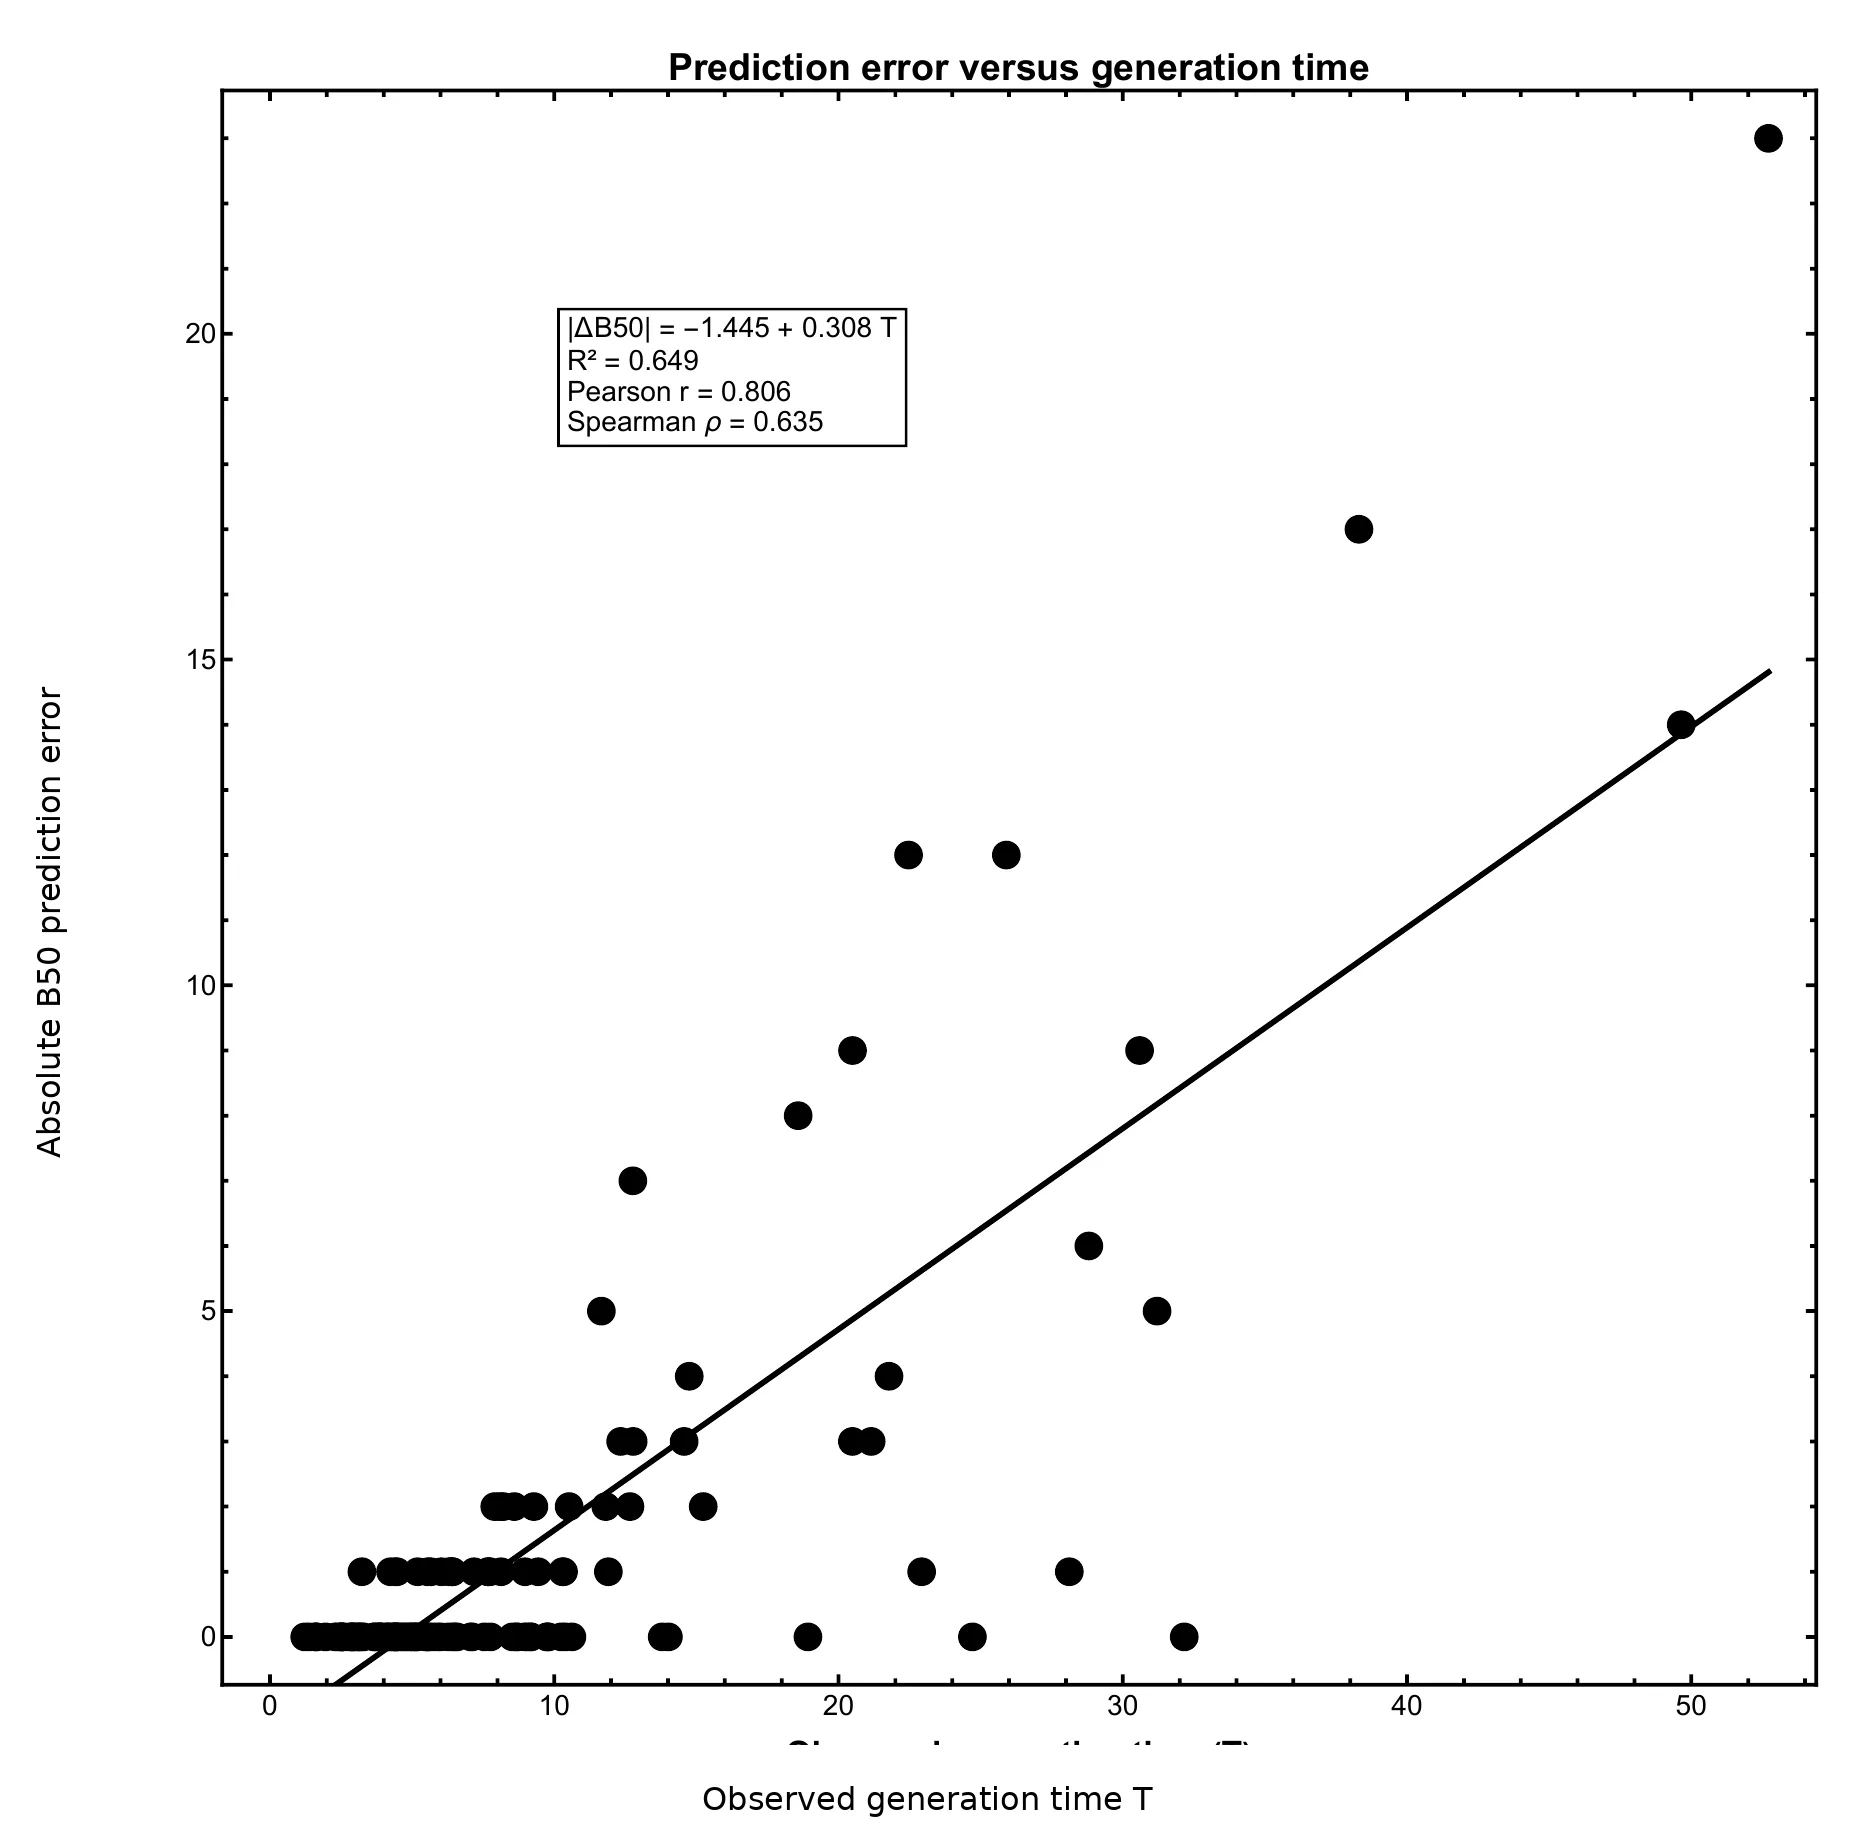
Parmi les espèces analysées figure le béluga (Huso huso), l'un des poissons les plus longévifs, dont la prédiction de la médiane reproductive s'écarte de 23 classes d'âge : la plus grande dispersion de l'échantillon.
L'idée que la répartition des contributions reproductives puisse se décrire par l'entropie fait écho à la notion de « pression démographique » dans le roman Les Dépossédés d'Ursula Le Guin, où une société régule consciemment sa reproduction pour maintenir l'équilibre.
Chiffres clés
- Coïncidence exacte des médianes reproductives: 61 % des espèces
- Prédiction à deux classes d'âge près: 85,8 % des espèces
- Part des matrices de Leslie ouvertes dans les données: 74 %
- Corrélation phylogénétique (Pearson) entre la médiane prédite et l'âge reproductif moyen: 0,884
- Nombre d'espèces dans l'analyse: 130