Des bactéries éclaireuses tissent des tresses pour percer les secrets de la turbulence active ✛
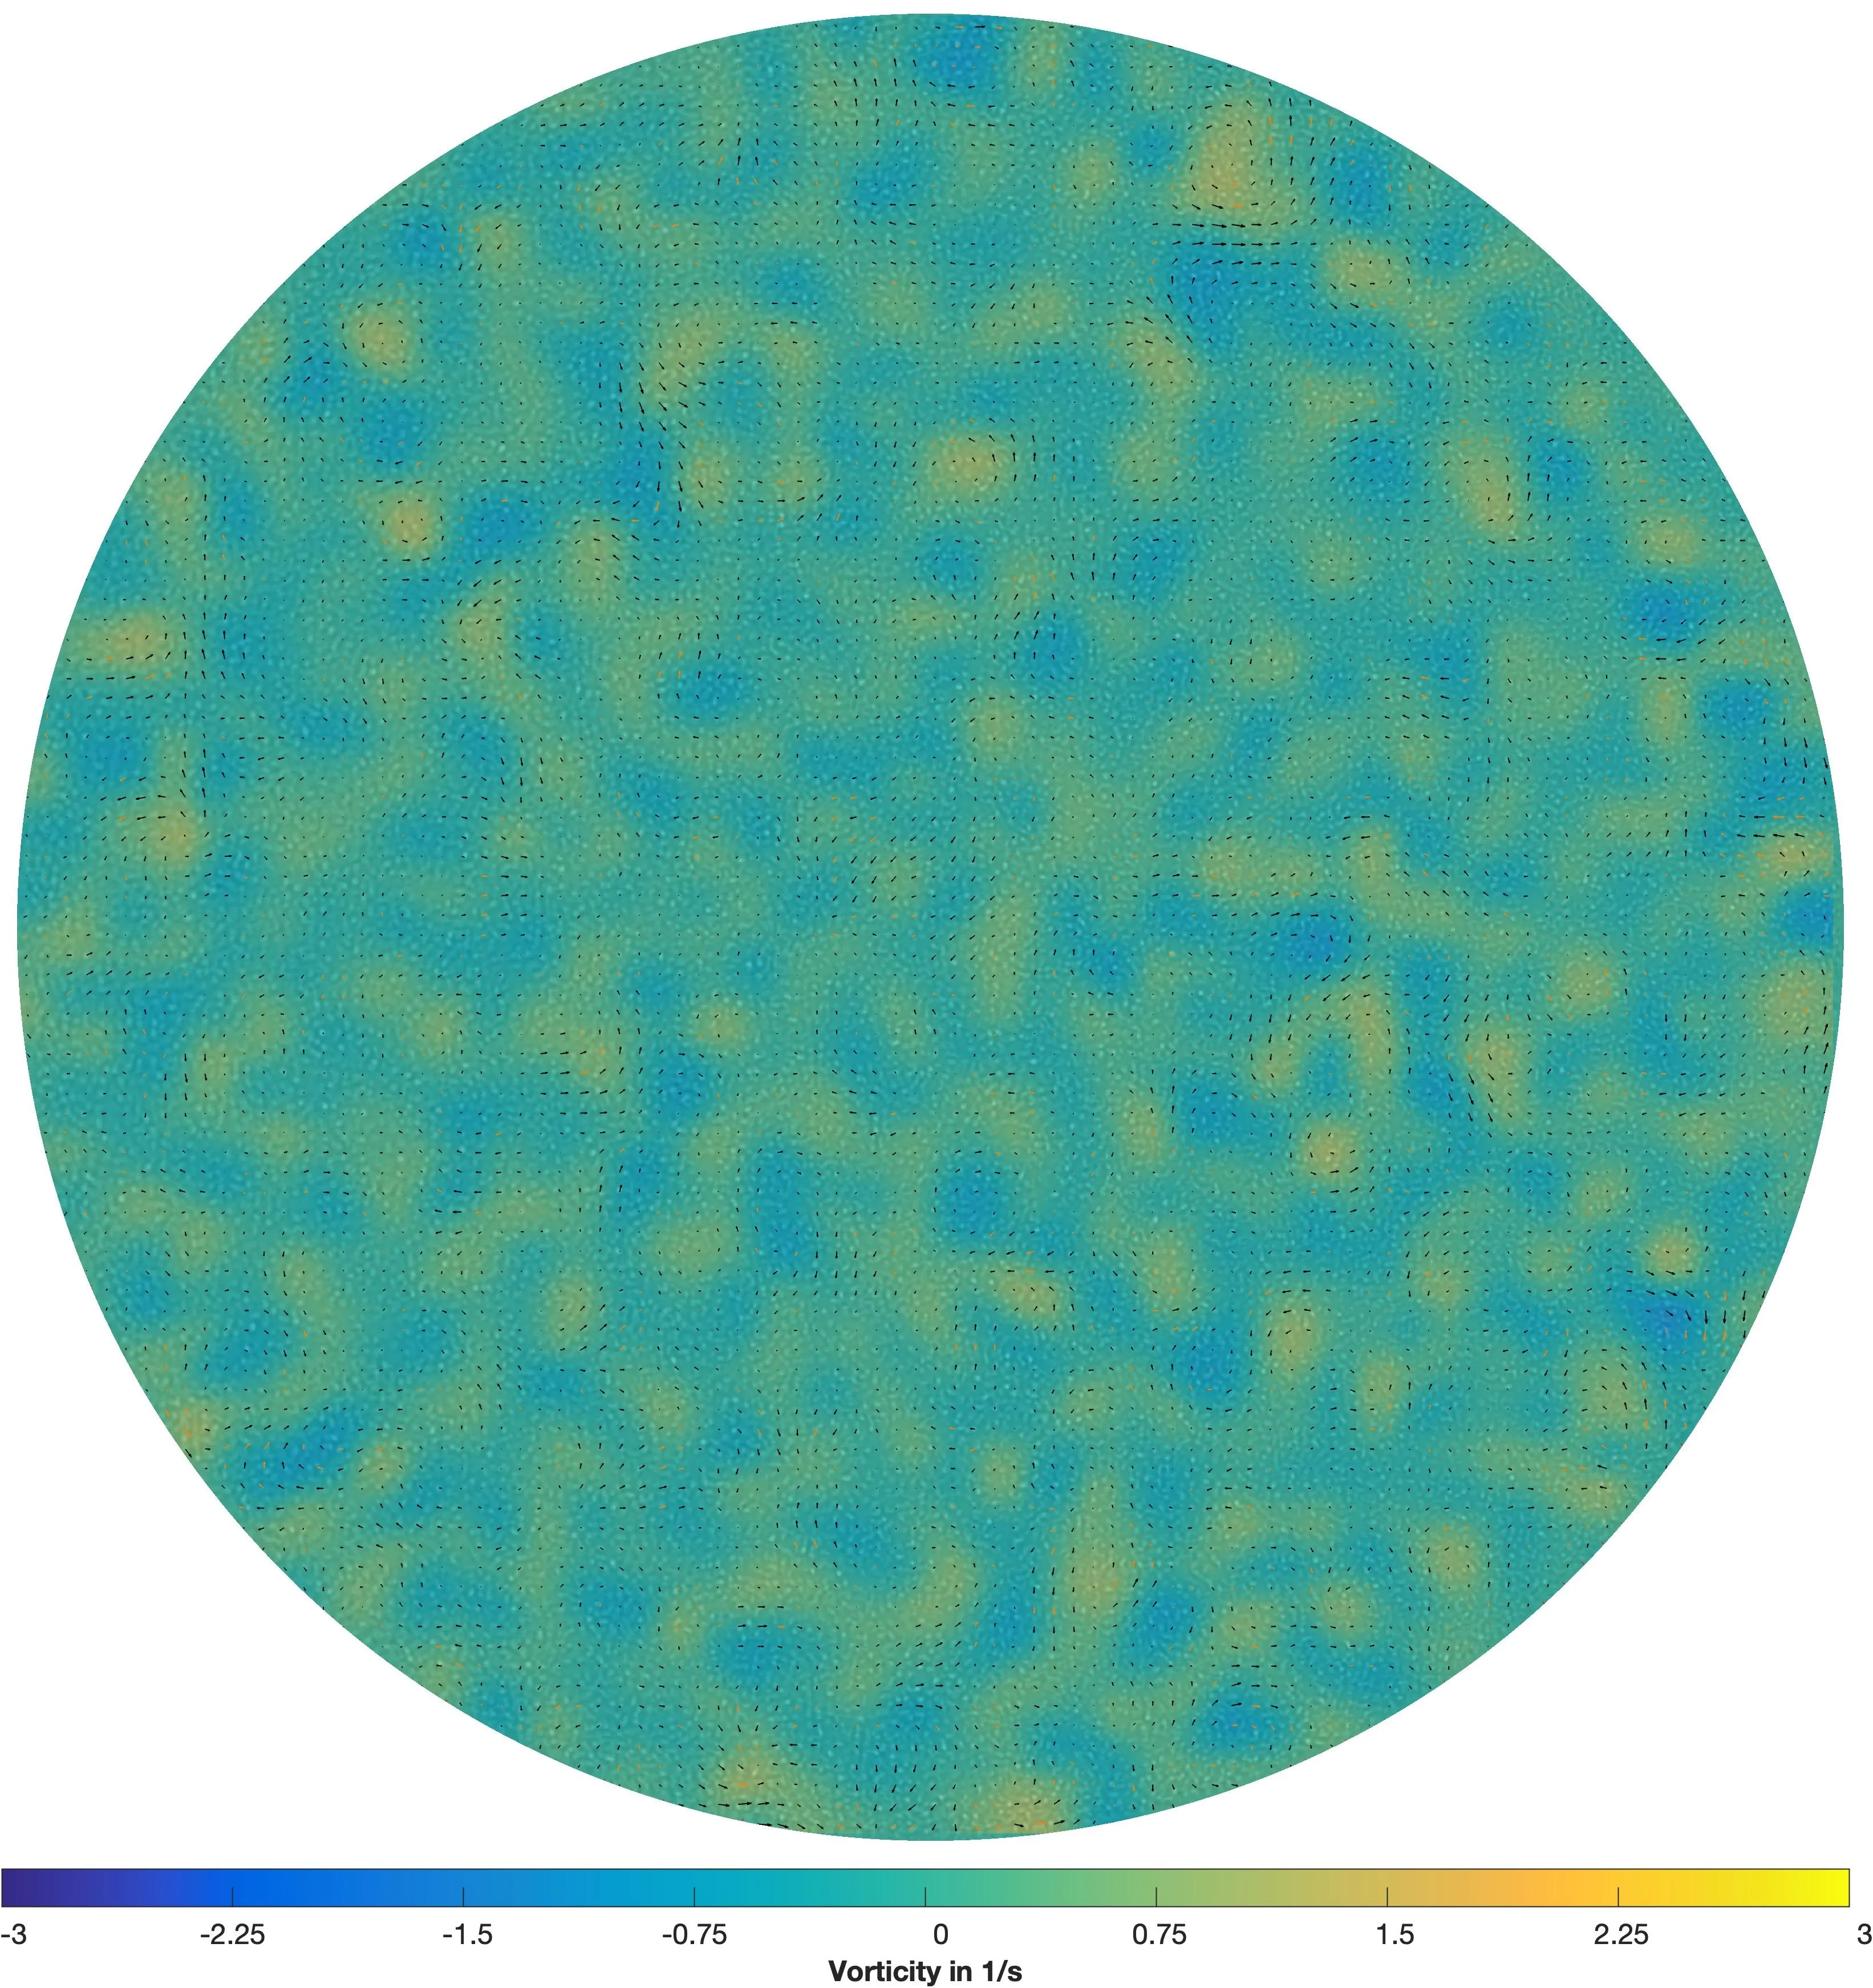
La tisserande est assise à son métier, et ses mains suivent un rythme impossible à prédire à l'avance. Les fils se rapprochent puis s'écartent, formant un motif qui semble aléatoire mais obéit à des règles strictes. C'est à peu près ce que font les bactéries dans une suspension dense : chaque cellule nage le long de sa propre trajectoire, mais ensemble, elles créent un écoulement qui mélange les nutriments bien plus efficacement que n'importe quel mouvement individuel.
Pendant longtemps, les scientifiques n'ont pas compris comment les trajectoires microscopiques s'assemblent en un mélange macroscopique. Car pour voir le motif, il faut suivre chaque fil. Les auteurs de cette nouvelle étude ont ajouté à une suspension de bactéries Escherichia coli ordinaires de rares « éclaireuses » fluorescentes de la même espèce. Ces bactéries lumineuses servaient à la fois de brasseurs et de traceurs : leurs trajectoires étaient enregistrées au microscope, puis élevées dans une troisième dimension, le temps, transformant chaque trajectoire en ligne d'univers.
À partir de ces tresses, ils ont calculé l'exposant de tressage fini (FTBE), c'est-à-dire la vitesse à laquelle la longueur d'une boucle matérielle entourant les traceurs augmente. Cet exposant constitue une borne inférieure de l'entropie topologique de l'écoulement, autrement dit une mesure de son caractère chaotique. Il s'avère que dans un système modérément confiné (hauteur de chambre de 20 micromètres), le FTBE se comporte différemment selon la concentration en bactéries. À faible concentration (jusqu'à 1 %), la vitesse de nage et la diffusion effective croissent linéairement, et le FTBE augmente avec elles. C'est le régime du gaz actif dilué : les bactéries ne se gênent presque pas.
À des concentrations intermédiaires, des vortex cohérents apparaissent, synchronisant les orbites des bactéries, et le FTBE atteint un plateau. Puis, lorsque la densité augmente encore, les vortex se brisent en jets rapides, et le FTBE augmente brusquement avec le début de la turbulence active. Dans ce régime, le mélange devient particulièrement efficace, car les trajectoires s'enchevêtrent au maximum.
Normalisé par le temps caractéristique de rencontre, le FTBE′ présente deux lois d'échelle : $φ^{-1}$/3 dans la limite diluée et $φ^{-2}$/3 dans la limite dense. Cela correspond à une transition entre un régime géométrique discret de rencontres et un mécanisme de fuite surfacique. Le résultat principal est une relation universelle FTBE ∝ $D_{eff}^1$/2, valable pour les deux hauteurs de chambre. Elle signifie que l'entropie topologique croît comme la racine carrée de la diffusion effective, et cette loi ne dépend pas de la géométrie.
Revenons maintenant à la tisserande. Son motif n'est pas un simple entrelacs aléatoire de fils, mais l'enregistrement précis de la manière dont les mouvements microscopiques se composent en un écoulement macroscopique. Les bactéries éclaireuses, en se tressant, inscrivent littéralement la topologie de leur mouvement dans la géométrie de l'écoulement. Cette méthode permet d'évaluer le mélange dans les dispositifs microfluidiques sans reconstruction complète du champ de vitesses, ce qui simplifie le contrôle du mélange dans les bioréacteurs.
À une hauteur de chambre de 5 μm, comparable à la taille d'une bactérie, les interactions hydrodynamiques sont tellement écrantées que le système se comporte comme de la matière active « sèche », alors que le liquide ne disparaît pas.
Dans le roman de Greg Egan « La Cité des permutants », des vies artificielles échangent des informations via des structures topologiques complexes ; ici, les bactéries, en s'entrelaçant en tresses, écrivent littéralement la topologie de leur mouvement dans la géométrie de l'écoulement.