Почему белки на границе клеток собираются в отдельные пятна и не сливаются ✛
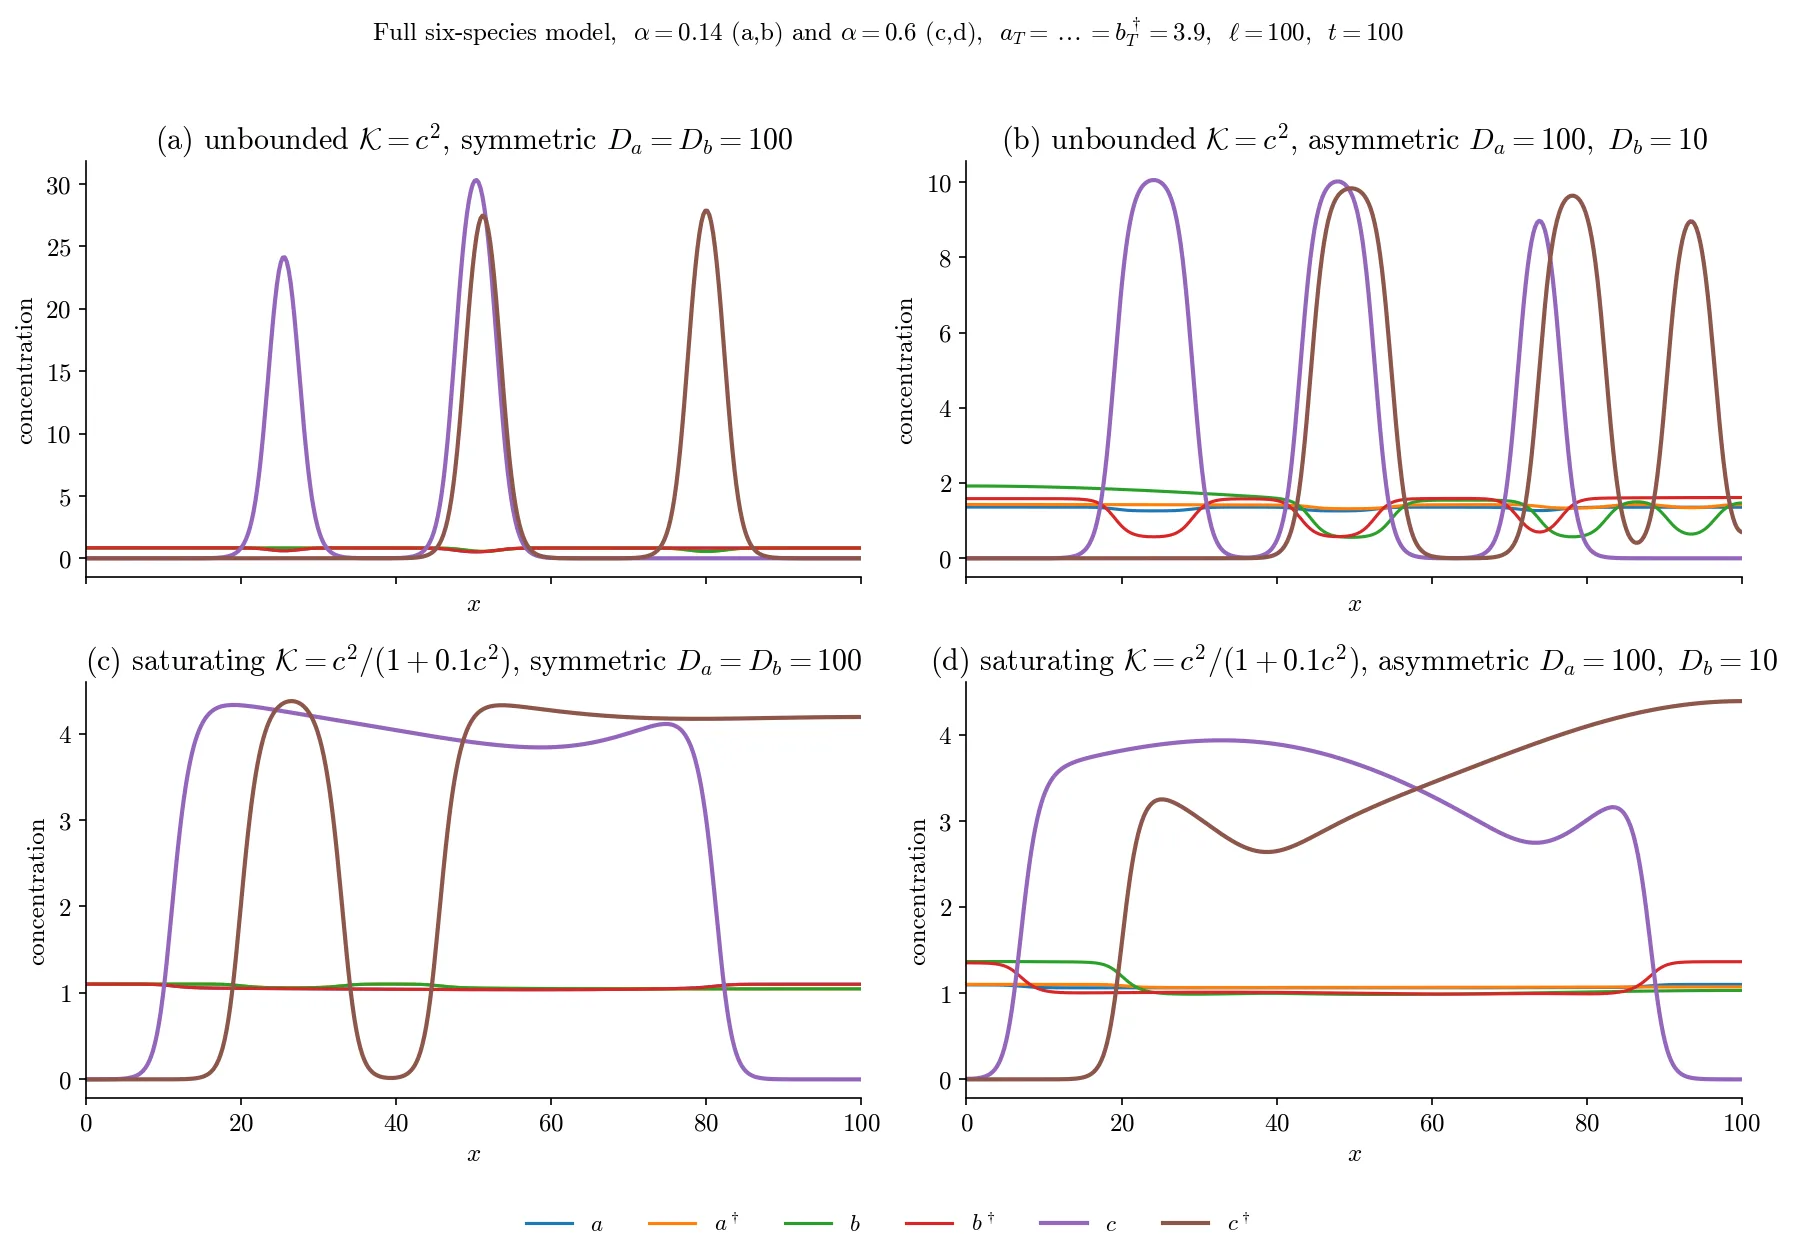
На границе между двумя клетками белки собираются в отдельные пятна, как капли чернил на бумаге. Одни капли смотрят в одну сторону, другие — в противоположную. Долгое время было непонятно, почему эти пятна не сливаются в одно большое и как они решают, кому где стоять. Оказалось, всё дело в двух простых правилах: общее количество белка на контакте постоянно, а взаимодействие между пятнами зависит от их ориентации.
Представьте два резервуара чернил, которые стоят по разные стороны клеточного стыка. Из них вытекают два типа мономеров — быстрые и подвижные. Встретившись, они образуют вязкие комплексы, которые почти не двигаются. Если комплексов становится много, они начинают притягивать к себе ещё больше мономеров — это называется кластеризующей обратной связью. В результате однородное распределение белка теряет устойчивость, и возникают отдельные пункты. Но вот что важно: если два пункта ориентированы одинаково, они всегда медленно сливаются в один. Поэтому число пунктов, которые мы видим, не задано заранее, а определяется тем, сколько времени прошло с момента их образования.
Теперь добавим второе правило: пусть комплексы одной ориентации ускоряют распад комплексов противоположной ориентации. Тогда пятна разного «цвета» начинают отталкиваться и расходиться в разные стороны. Это превращает хаотичную кластеризацию в сортировку: на одном конце контакта собираются комплексы одной ориентации, на другом — другой. И что самое удивительное: управление числом пятен и их разделением по ориентации — это два независимых механизма. Клетка может настраивать их отдельно, как художник, который сначала решает, сколько капель нанести, а потом — какие из них будут смотреть влево, а какие вправо.
Так простая модель с двумя резервуарами чернил объясняет, как молекулярные взаимодействия порождают порядок на клеточной границе. Сегодня это помогает интерпретировать снимки белковых кластеров под микроскопом: зная, насколько подвижны мономеры, можно предсказать число и размер пунктов. А в будущем те же правила, возможно, подскажут, как клетка выбирает направление роста и как этот выбор передаётся всей ткани.
Ширина одиночного белкового пункта в модели оказывается универсальной: она не зависит ни от количества белка, ни от силы обратной связи, а определяется только диффузией комплекса и скоростью его распада. Это похоже на то, как ширина дорожной пробки не зависит от числа машин, а только от скорости реакции водителей.