Кластеризация против сортировки: как белки собираются в пункты на клеточном контакте ✛
Контекст
Планарная клеточная полярность — фундаментальный механизм, задающий ориентацию клеток в тканях. Ей предшествует кластеризация полярных белков в дискретные мембранные субдомены (пункты) с пониженным оборотом. Однако минимальные взаимодействия, которые зарождают пункты, определяют их число и разделяют противоположные ориентации, оставались неясными. Существующие модели в основном описывали выравнивание и координацию на уровне клеток и тканей, рассматривая каждый контакт как хорошо перемешанный, и потому не могли разрешить сами пункты. Данная работа стоит на стыке с исследованиями масс-сохраняющих систем реакции-диффузии, где известны механизмы волнового закрепления и срастания, но не учитывались два независимых резервуара мономеров и сортировка ориентаций. Таким образом, статья заполняет пробел между молекулярным масштабом пунктов и тканевой полярностью, предлагая минимальную модель, которая связывает кластеризацию и сортировку.
Методы
Авторы строят одномерную модель реакции-диффузии на клеточном контакте с нулевыми потоками на концах. Два типа мономеров (A и B) диффундируют быстро и обратимо связываются через контакт в транскомплексы двух ориентаций (C и C†), которые диффундируют медленно. Обратная связь входит только через зависящие от концентрации скорости: кластеризующая обратная связь K(c) усиливает связывание при наличии комплексов, а перекрёстная модуляция V(c†) изменяет распад комплексов в зависимости от концентрации противоположной ориентации. Рассматриваются два варианта K(c): неограниченный (c²) и насыщающийся (c²/(1+ρc²)). Система обезразмеривается, и анализ включает линейную устойчивость однородного состояния, асимптотику быстрых мономеров для одиночного пункта, спектральные методы для массивов пунктов и численное моделирование методом конечных разностей с полунеявной схемой.
Результаты
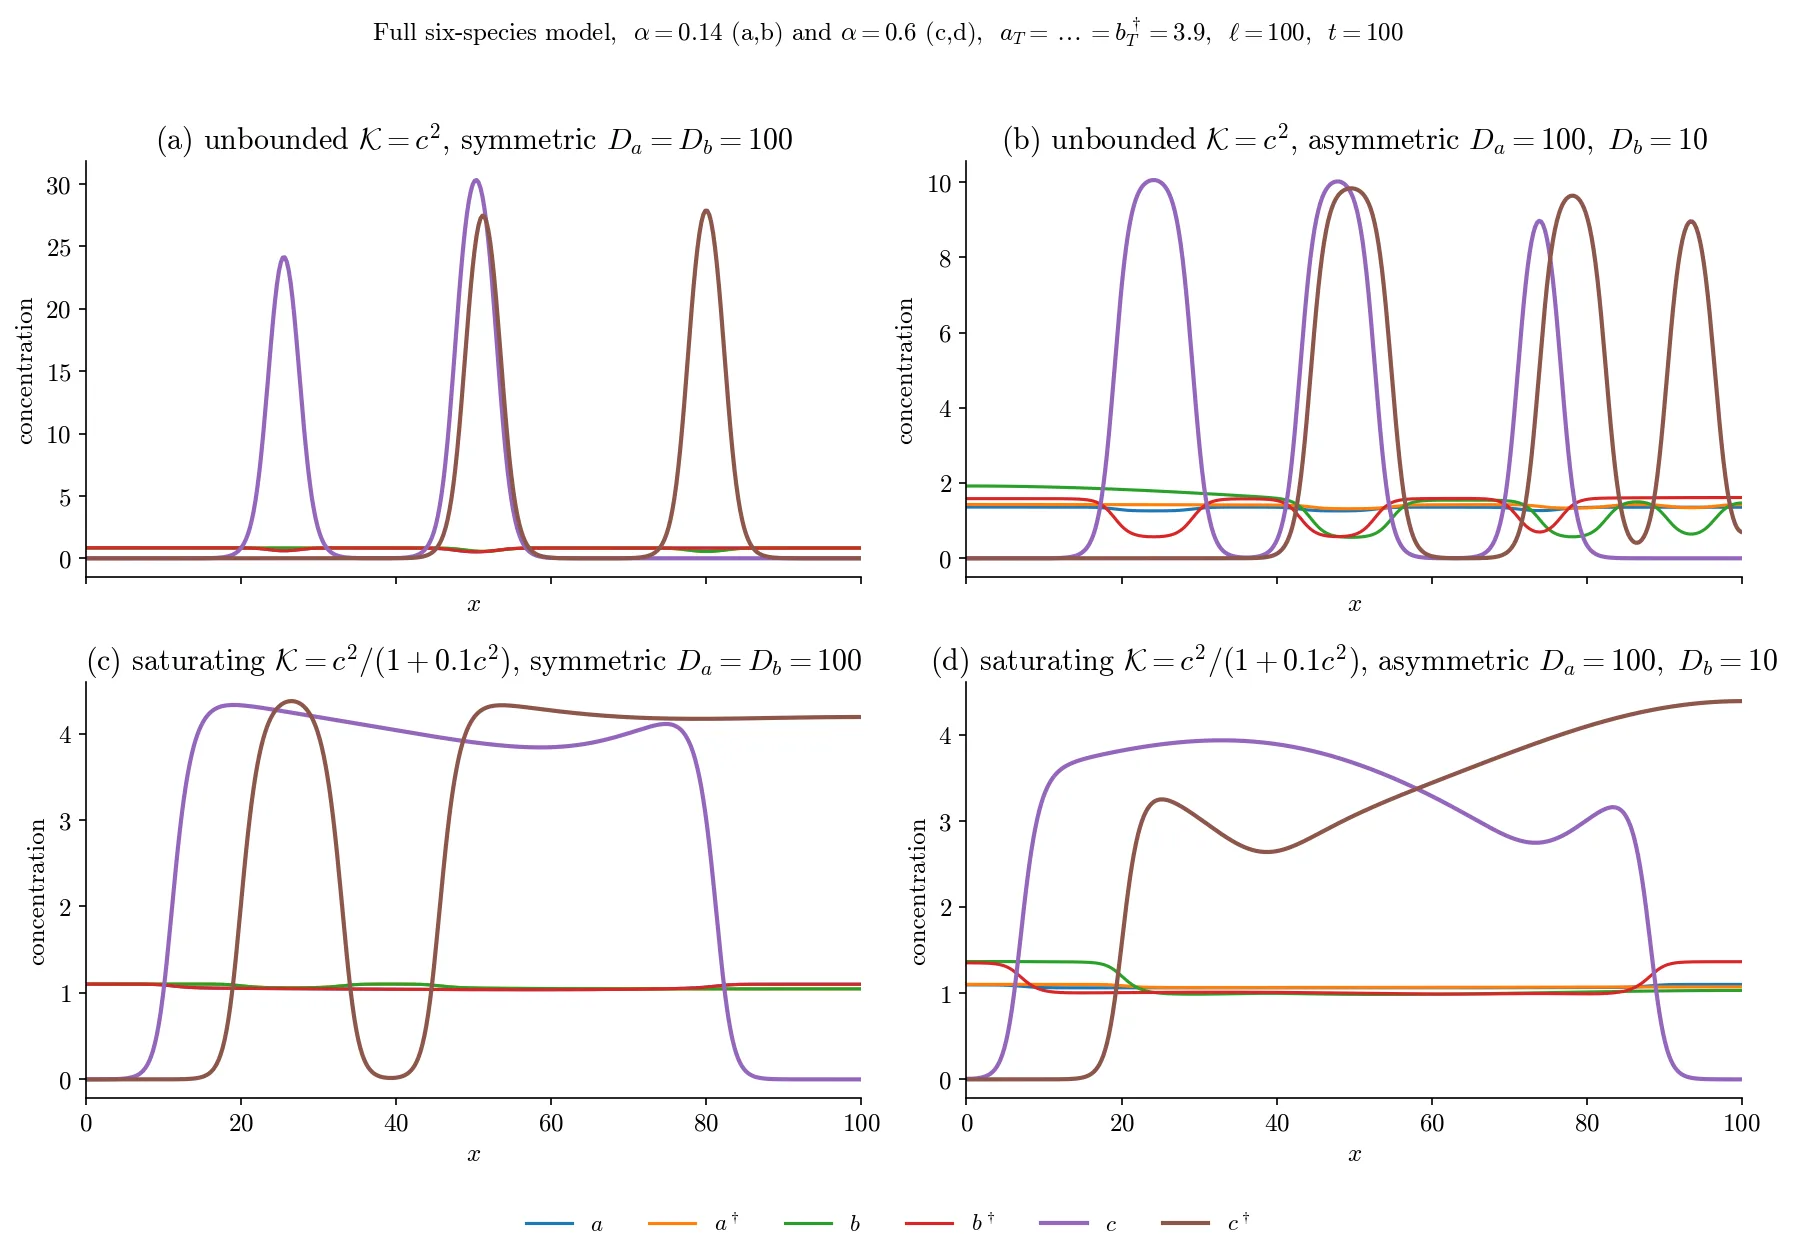
Однородное состояние теряет устойчивость через длинноволновую моду перераспределения массы при условии, что мономеры диффундируют быстрее комплекса и кластеризующая обратная связь достаточно сильна. Для неограниченной обратной связи возникают узкие пики с амплитудой cmax = 3/(2αāƀ), универсальной шириной на полувысоте 4 arccosh(√2) ≈ 3.53 и расстоянием, задаваемым длиной экранирования мономеров. Для насыщающейся обратной связи образуются широкие плато, положение фронта которых определяется конструкцией Максвелла. Доказано, что любой массив одинаково ориентированных пунктов неустойчив и срастается к одному пункту; скорость срастания для двух пиков равна λcomp = αā³D/(3ℓ) в симметричном случае, а при неравных диффузиях мономеров она определяется гармоническим средним их коэффициентов диффузии. Спектр одиночного пункта не содержит колебательных неустойчивостей, то есть пункты не мигают. Введение положительной перекрёстной модуляции V′ > 0 превращает кластеризацию в сортировку: соколокализованные пункты противоположных ориентаций расходятся со скоростью λpol = 8V′cmax/7, причём критерий сортировки не зависит от формы кластеризующей обратной связи.
Значение
Работа отличается от соседних исследований тем, что впервые рассматривает транскомплекс с двумя независимо сохраняющимися резервуарами мономеров и аналитически связывает кластеризацию с сортировкой ориентаций. В отличие от моделей, которые либо игнорируют пространственную структуру на субклеточном уровне, либо рассматривают только один сохраняющийся вид, здесь показано, что наличие двух резервуаров приводит к качественно новому закону конкуренции через гармоническое среднее диффузий. Кроме того, работа даёт точный критерий сортировки, основанный только на знаке перекрёстной модуляции, что ранее не было установлено для полностью сформированных пунктов. Это позволяет разделить управление числом пунктов и их ориентационной сегрегацией на математически независимые ингредиенты.
Развитие
Тема может развиваться в сторону включения явных молекулярных игроков и вывода функций обратной связи из кинетики фосфорилирования и эндоцитоза. Другим направлением является переход от одного контакта к целой клетке, где необходимо связать контакты через общие резервуары и ввести смещение, выбирающее, какая ориентация доминирует на каждом краю. Также интересно найти минимальное нарушение сохранения массы, которое стабилизировало бы регулярные массивы пунктов, сохраняя механизм сортировки.
Влияние
Модель может быть применена к анализу данных визуализации белковых кластеров на клеточных контактах, в частности для предсказания зависимости числа и размера пунктов от подвижности мономеров. Она также даёт основу для построения более детальных моделей планарной полярности, связывающих молекулярный и клеточный масштабы.
Следующие шаги
Следующим шагом является разработка биофизически механистической версии модели с явными молекулярными компонентами, где скорости K и V выводятся из кинетики фосфорилирования и эндоцитоза. Затем необходимо исследовать, как молекулярная самоорганизация пунктов передаётся на уровень клеточной полярности через связывание контактов и нарушение симметрии.
Ключевые проблемы
Работа напрямую связана с нерешённой проблемой о том, как молекулярные взаимодействия порождают устойчивые субклеточные структуры и как эти структуры координируются на уровне ткани. В области клеточной биологии остаётся открытым вопрос о том, какие минимальные ингредиенты достаточны для образования и поддержания белковых кластеров с пониженным оборотом, а также как эти кластеры способствуют генерации клеточной асимметрии. Данная модель показывает, что массовое сохранение и знак перекрёстной регуляции являются ключевыми, но для полного понимания необходимы экспериментальные измерения параметров и проверка предсказаний о кинетическом отборе числа пунктов.
Взгляд машины знаний
Этот раздел адресован автору работы и его коллегам. Соседние работы нашёл смысловой поиск по нашему архиву — не по совпадению слов, а по смыслу. Мы не рецензируем: мы показываем поле вокруг.
Что сделано в работе
Работа строит одномерную модель реакции-диффузии с сохранением массы для кластеризации белков планарной клеточной полярности в пункты на клеточном контакте. Модель включает два типа мономеров, обратимо связывающихся в транскомплексы двух ориентаций, с обратной связью через зависящие от концентрации скорости. Показано, что кластеризация возникает через длинноволновую моду перераспределения массы, морфология пунктов зависит от формы обратной связи, массивы одинаково ориентированных пунктов неустойчивы, а перекрёстная модуляция оборота комплексов приводит к сортировке ориентаций.
В чём сила
Разделение кластеризации и сортировки на математически независимые ингредиенты (кластеризующая обратная связь K(c) и перекрёстная модуляция V(c†)) — сильный результат, позволяющий изучать эти процессы по отдельности. Также ценен вывод о кинетическом, а не волновом определении числа пунктов, что связывает модель с реальной вариабельностью пунктов.
Куда можно двигаться
- Может быть интересно посмотреть, как предложенный механизм кластеризации соотносится с наблюдаемой динамикой белков планарной полярности в живой ткани: в архиве рядом лежит разбор работы о том, как клетки строят границу роста, где рассматривается пространственная организация белков в клеточных контактах.опора: Как клетки строят границу роста arXiv:2603.28630
- Рядом лежит вот такой ход: в работе о том, как клетки выбирают форму тела, обсуждается роль планарной полярности в морфогенезе; возможно, вашу модель кластеризации можно встроить в более крупномасштабное описание тканевой полярности, чтобы связать молекулярные пункты с клеточной координацией.опора: Как клетки выбирают форму тела arXiv:2603.07082
- В архиве есть разбор работы о том, как белки гнут мембрану; поскольку кластеризация полярных белков может влиять на локальную кривизну мембраны, возможно, стоит рассмотреть coupling между вашим механизмом кластеризации и деформацией мембраны.опора: Белки гнут мембрану, как ложка гнёт плёнку на молоке arXiv:2601.15477
Что можно попробовать
- Проверить, сохраняется ли разделение кластеризации и сортировки при введении слабой связи между ними, например, через зависимость K от обеих ориентаций.
- Апробировать модель на двумерной геометрии клеточного контакта, чтобы увидеть, как форма пунктов и их расположение меняются при учёте реальной геометрии.
- Сопоставить предсказанную зависимость числа пунктов от плотности белков с количественными данными по пунктам в клетках с разным уровнем экспрессии полярных белков.
Почему это может быть важно
Если предложенный механизм кластеризации и сортировки подтвердится в биологических системах, это даст минимальную основу для понимания того, как молекулярные взаимодействия на клеточном контакте порождают полярность ткани, и может помочь в интерпретации мутаций, нарушающих пункты.
Работы рядом в нашем архиве
- Как свет раскрывает волокна тканиблизость 0.54
- Как клетка быстро собирает копии ДНКблизость 0.52
- Свет закручивается в опухолиблизость 0.51
- Как клетки строят границу ростаблизость 0.51
- Как клетки выбирают форму телаблизость 0.50
- Белки гнут мембрану, как ложка гнёт плёнку на молокеблизость 0.50
Вокруг этой работы в архиве пусто: ближайший разбор всего на 0.54, при обычных 0.64. Похоже, рядом почти не бурили.
Ширина одиночного белкового пункта в модели оказывается универсальной: она не зависит ни от количества белка, ни от силы обратной связи, а определяется только диффузией комплекса и скоростью его распада. Это похоже на то, как ширина дорожной пробки не зависит от числа машин, а только от скорости реакции водителей.
Ключевые числа
- универсальная ширина пункта: 3.53 (в единицах длины диффузии комплекса)
- пороговая плотность для неограниченной обратной связи: nf = 1.5*(12/(αℓ))^(1/3)
- коэффициент дрейфа пункта при контакте: 8/7
- коэффициент дрейфа пункта вдали: 5
- скорость срастания восьми пунктов по сравнению с двумя: на порядок быстрее