Чернильные пятна на клеточной границе: как белки сами решают, где собраться и куда смотреть ✛
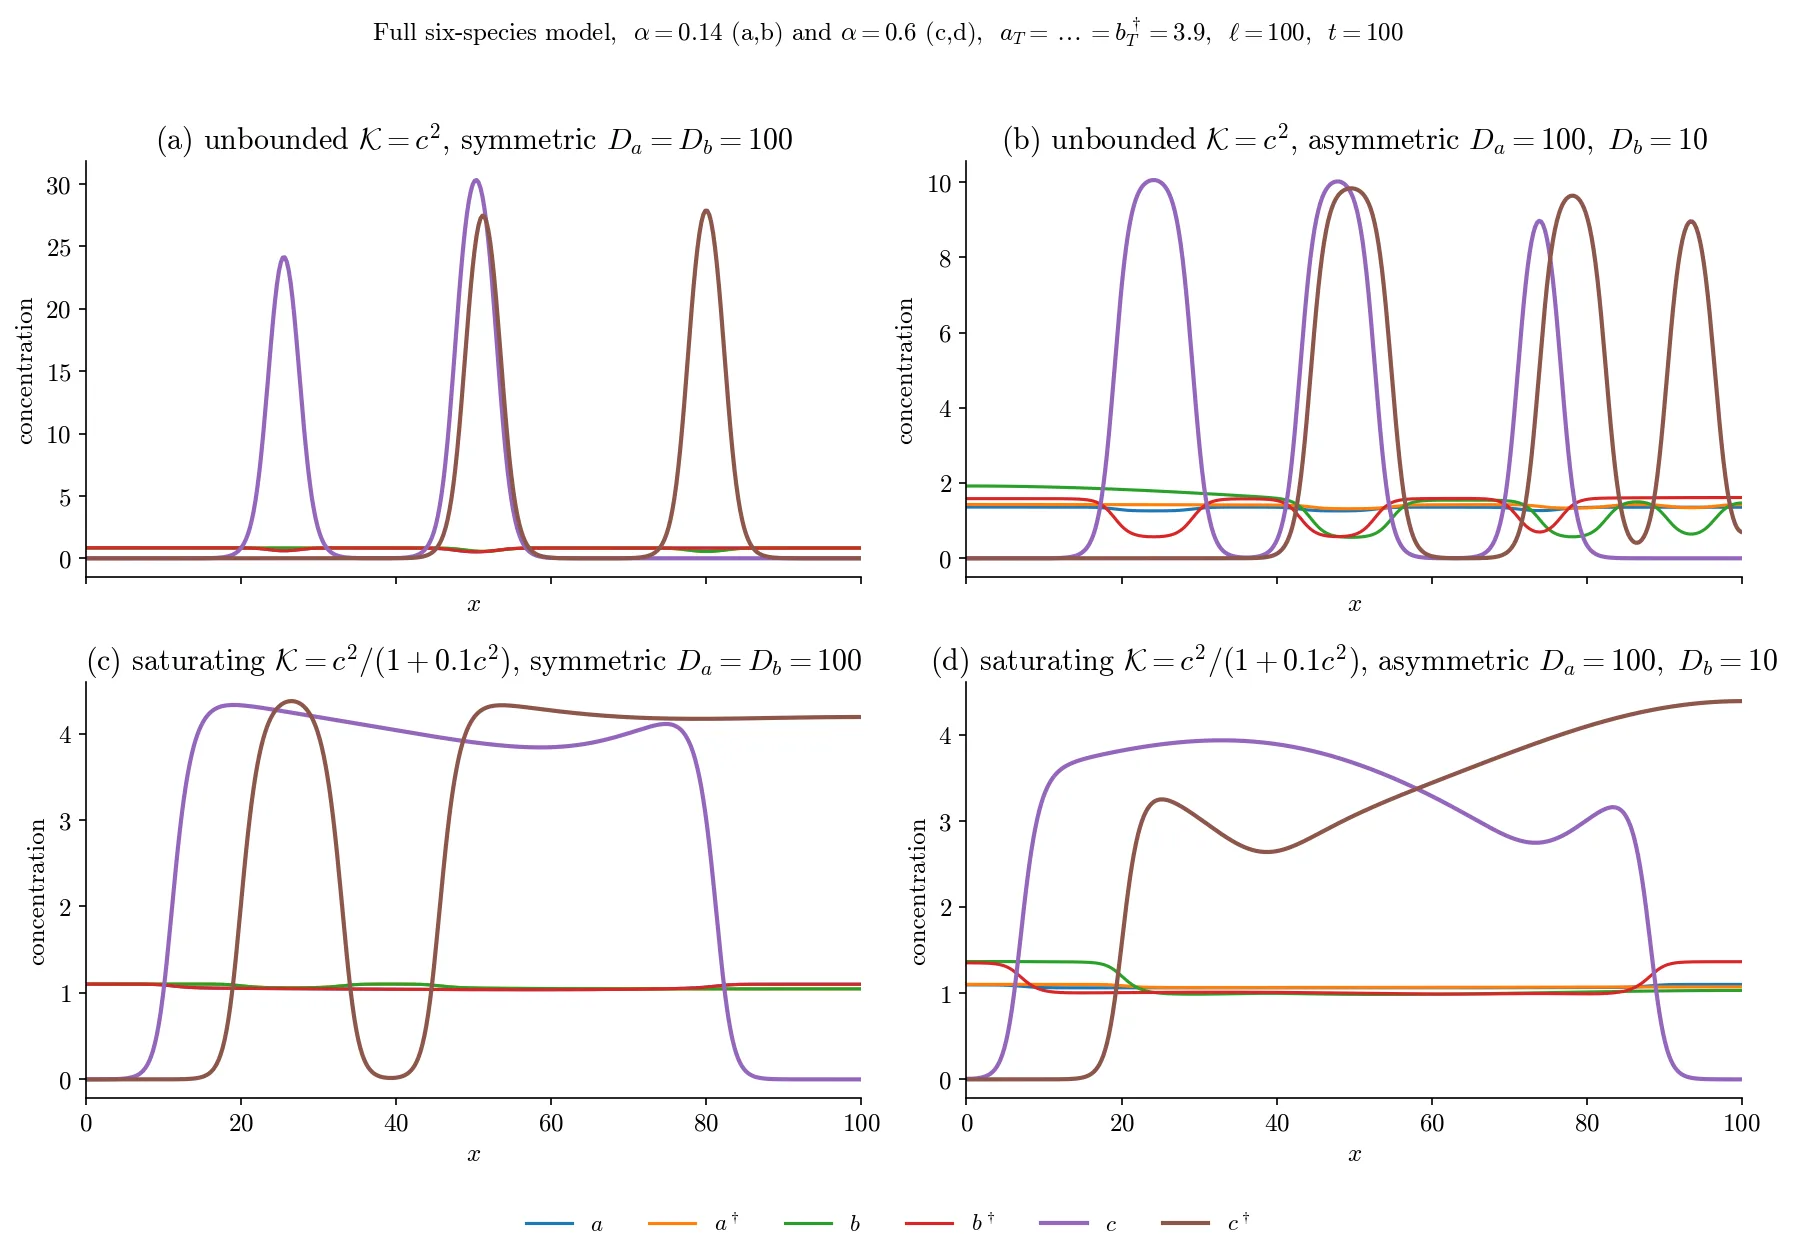
Два резервуара чернил стоят по разные стороны клеточного стыка. Из них на мембрану вытекают два типа мономеров, которые, встретившись, образуют вязкие капли комплексов. Капли почти не двигаются, а вот свободные мономеры шныряют быстро, как молекулы духов в комнате. Так начинается история о том, как клетка рисует на своей границе пункты — дискретные белковые скопления, которые позже зададут направление роста всей ткани.
Модель, которую построили авторы, проста по ингредиентам: два типа мономеров (A и B) диффундируют быстро, обратимо связываются в комплексы двух ориентаций (C и C†), а те уже ползают медленно. Обратная связь входит только через скорости реакций: кластеризующая обратная связь K(c) усиливает связывание там, где комплексов уже много, а перекрёстная модуляция V(c†) меняет распад комплексов в зависимости от концентрации противоположной ориентации. Никаких внешних сигналов, только локальные правила. И вот тут начинается главное: если мономеры диффундируют быстрее комплекса и обратная связь достаточно сильна, однородное состояние теряет устойчивость. Но не через конечноволновую бифуркацию Тьюринга, как можно было бы ожидать, а через длинноволновую моду — медленное перераспределение общей массы.
Дальше форма обратной связи решает, что получится: широкие плато или узкие пики. Для неограниченной обратной связи (c²) возникают узкие пики с амплитудой, обратно пропорциональной произведению средних концентраций мономеров, и универсальной шириной на полувысоте 4 arccosh(√2) ≈ 3.53 в единицах длины диффузии комплекса. Для насыщающейся обратной связи (c²/(1+ρc²)) образуются широкие плато, положение фронта которых определяется конструкцией Максвелла — тем же правилом, что описывает равновесие фаз в физике. Но самый неожиданный результат касается числа пунктов. Любой массив одинаково ориентированных пунктов неустойчив и срастается к одному большому. Скорость срастания для двух пиков пропорциональна кубу средней концентрации мономеров и коэффициенту диффузии, а при неравных диффузиях мономеров она определяется гармоническим средним их коэффициентов диффузии. Поэтому число пунктов, которые мы видим на клеточном контакте, не задано фиксированной длиной волны, а определяется кинетически — как медленное слияние капель на стекле.
Теперь введём перекрёстную модуляцию: пусть комплексы одной ориентации ускоряют распад комплексов противоположной ориентации. Тогда кластеризация превращается в сортировку. Соколокализованные пункты противоположных ориентаций начинают расходиться со скоростью, пропорциональной наклону модуляции и амплитуде пункта. Критерий сортировки зависит только от знака перекрёстной модуляции, а не от формы кластеризующей обратной связи. Это значит, что управление числом пунктов и их ориентационной сегрегацией — математически разделимые ингредиенты. Клетка может настраивать их независимо, как художник, который отдельно решает, сколько пятен нанести на холст, и отдельно — какие из них будут смотреть влево, а какие вправо.
Так модель, начавшаяся с двух резервуаров чернил, даёт простой ответ на сложный вопрос: массовое сохранение и кластеризующая обратная связь достаточны для образования пунктов, их число определяется кинетически из-за медленного срастания, а сортировка ориентаций требует знакоопределённой перекрёстной модуляции оборота. Сегодня это можно использовать для интерпретации экспериментов по визуализации белковых кластеров на клеточных контактах: зная подвижность мономеров, модель предсказывает, сколько пунктов образуется и какого они будут размера. А завтра, возможно, те же чернила помогут нарисовать карту того, как молекулярная самоорганизация переходит в полярность целой ткани.
Ширина одиночного белкового пункта в модели оказывается универсальной: она не зависит ни от количества белка, ни от силы обратной связи, а определяется только диффузией комплекса и скоростью его распада. Это похоже на то, как ширина дорожной пробки не зависит от числа машин, а только от скорости реакции водителей.