Criticalidad autoorganizada en redes neuronales profundas ✛
Contexto
Cerca de las transiciones de fase, los sistemas exhiben propiedades colectivas: mayor susceptibilidad, correlaciones de largo alcance y un amplio repertorio de respuestas dinámicas útiles para el cómputo y la memoria. Junto con las evidencias empíricas de criticalidad en la actividad neuronal, esto ha generado la hipótesis de que el cerebro opera cerca del estado crítico. La criticalidad autoorganizada ofrece un mecanismo para que surjan tales estados sin ajuste externo. En redes adaptativas, la retroalimentación entre la dinámica rápida y la adaptación estructural lenta puede conducir a la autoorganización. Una regla local simple (los nodos inactivos ganan conexiones y los activos las pierden) lleva la conectividad global al punto crítico. Principios análogos operan en redes neuronales biológicamente realistas, donde la plasticidad sináptica dependiente de la actividad autoorganiza la dinámica hacia la criticalidad. En el ámbito del aprendizaje profundo, las redes suelen controlarse mediante objetivos de optimización globales o parámetros arquitectónicos externos. Mantener la criticalidad directamente a través del jacobiano requiere un conocimiento explícito de una propiedad global de la red. La autoorganización adaptativa ofrece una posibilidad cualitativamente distinta: la red regula su estado global mediante plasticidad local, sin medir la distancia al punto crítico. El trabajo se sitúa en un terreno aparte: los trabajos más cercanos en el archivo se ocupan de la dinámica cerebral, las redes recurrentes y la plasticidad sináptica, pero nadie había comprobado si la plasticidad homeostática local puede llevar por sí sola a las redes profundas de propagación hacia adelante al estado crítico.
Métodos
Se consideraron perceptrones multicapa totalmente conectados con 9 capas ocultas de 1000 o 1600 neuronas. La dinámica se describió mediante un mapeo discreto de capa a capa con una activación de tangente hiperbólica escalada. Los pesos se inicializaron uniformemente en el rango [−0.05, 0.05] y se multiplicaron por un factor global m que fija la fuerza de conexión. Para la evaluación cuantitativa se usaron dos indicadores: el parámetro de ramificación σ, que es la razón entre la actividad promedio de la capa de salida y la de entrada, y el mayor exponente de Lyapunov de tiempo finito λ0, calculado a través de los valores singulares del jacobiano entrada-salida mediante diferenciación automática de PyTorch. La regla local: la actividad de una neurona se definió como la desviación estándar de sus activaciones sobre un lote de imágenes MNIST. El umbral T es igual a la actividad promedio de la capa de entrada. Si la actividad está por debajo del umbral, la neurona está inactiva y una conexión entrante aleatoria se refuerza en un paso fijo c; si está por encima, se debilita. En una iteración, el 50% de las neuronas evaluaron su actividad y actualizaron el 1% de sus conexiones entrantes. En el entrenamiento conjunto, primero se realizó un paso de descenso de gradiente estocástico y luego una actualización homeostática. Se usó el conjunto de datos MNIST, con 60 000 imágenes de entrenamiento y 10 000 de prueba, una tasa de aprendizaje de 10⁻³ y sin momento.
Resultados
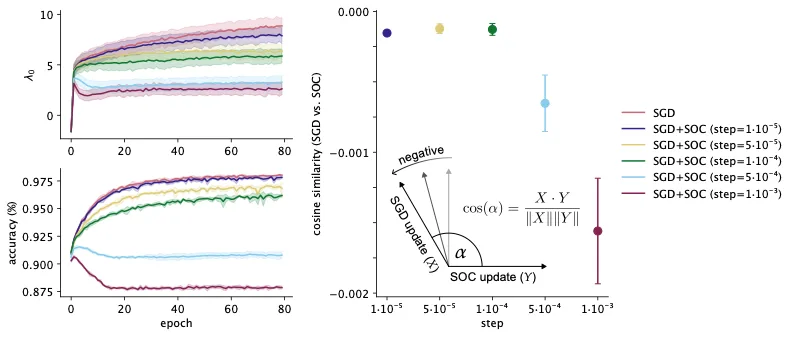
Las redes se inicializaron en un amplio rango de fuerza de conexión, desde fuertemente subcrítico (m=0.25, la actividad se desvanece en pocas capas) hasta supercrítico (m=2.0, la actividad crece de capa en capa). Tras 20 épocas de adaptación homeostática, todas las redes convergieron a un mismo estado estacionario: la actividad se mantuvo aproximadamente constante a lo largo de la profundidad, el parámetro de ramificación σ se acercó a 1, el máximo exponente de Lyapunov λ0 se acercó a 0 y la fuerza de conexión promedio tendió a un valor asintótico común. Esto ocurrió independientemente de las condiciones iniciales. Con entrenamiento por descenso de gradiente sin homeostasis, la red entraba en régimen supercrítico: λ0 se volvía positivo. La adición de la actualización homeostática contrarrestó esta deriva de manera proporcional al paso c. Con un c suficientemente grande, la red permaneció cerca del punto crítico durante todo el entrenamiento. Sin embargo, la precisión de clasificación disminuyó al aumentar c: el SGD puro dio la mayor precisión, y el aumento de la homeostasis deterioró progresivamente el resultado. La similitud coseno entre los vectores de actualización de SGD y SOC fue baja y negativa, lo que indica que los dos mecanismos mueven los pesos en direcciones sustancialmente diferentes en el espacio de parámetros.
Implicaciones
El trabajo muestra que una red profunda de alimentación directa puede acercarse autónomamente al régimen crítico mediante una adaptación sináptica puramente local y dependiente de la actividad. Esto extiende la autoorganización adaptativa hacia la criticalidad, que antes se demostraba principalmente en redes de umbral abstractas y en modelos de sistemas neuronales biológicos, a las redes profundas modernas. El mecanismo clave es la retroalimentación negativa entre la dinámica local y el parámetro de control efectivo del sistema. La actividad neuronal local actúa como sensor de la fase dinámica global: la actividad excesiva debilita las interacciones sinápticas, mientras que la insuficiente las fortalece. Aunque la transición de fase es una propiedad colectiva de toda la red, la actividad local contiene suficiente información sobre de qué lado de la transición se encuentra el sistema para devolverlo a la región crítica. A diferencia de trabajos afines que estudian redes biológicas o utilizan restricciones globales, aquí se muestra por primera vez la posibilidad de autoorganización puramente local en redes profundas de alimentación directa.
Desarrollo futuro
En su forma actual, el mecanismo SOC no mejora el aprendizaje supervisado, sino que compite con él. La baja alineación entre las actualizaciones de gradiente y las homeostáticas indica que los dos mecanismos optimizan objetivos diferentes. La solución podría estar en combinar la señal de la tarea y la criticalidad en una regla de plasticidad común, por ejemplo, mediante una señal moduladora global combinada con actividad local. El desarrollo de reglas de aprendizaje coordinadas de este tipo es una dirección importante para el trabajo futuro.
Impacto
Los resultados podrían influir en el desarrollo de métodos para estabilizar el entrenamiento de redes profundas y prevenir fallos dinámicos, como la pérdida de plasticidad y el colapso del modelo.
Próximos pasos
Desarrollar reglas de plasticidad que reconcilien la regulación homeostática de la criticalidad con la optimización de la función objetivo, posiblemente mediante una señal moduladora.
Problemas abiertos clave
El trabajo vincula la criticalidad autoorganizada con el problema del aprendizaje estable en redes profundas: cómo mantener un régimen dinámico favorable sin comprometer la optimización de la tarea. Esto resuena con la cuestión abierta de cómo el cerebro combina múltiples formas de plasticidad sináptica para regular simultáneamente la función y la estabilidad.
La mirada de la máquina del conocimiento
Esta sección está dirigida al autor del trabajo y a sus colegas. Los trabajos vecinos los encontró la búsqueda por significado en nuestro archivo, no por coincidencia de palabras. No evaluamos: mostramos el campo alrededor.
Qué hace el trabajo
El estudio demuestra que una regla homeostática local (las neuronas activas debilitan sus conexiones entrantes, las inactivas las fortalecen) lleva por sí sola a redes profundas totalmente conectadas de propagación directa a un estado crítico, evaluado mediante el parámetro de ramificación y el exponente de Lyapunov. Cuando se entrena conjuntamente con descenso de gradiente, la homeostasis contrarresta la supercriticalidad, pero compite con la optimización de la tarea.
Dónde está su fuerza
La fortaleza del trabajo reside en demostrar que la criticalidad global puede surgir de una plasticidad puramente local, sin control explícito de las propiedades globales, y en el análisis cuantitativo de la interacción entre la homeostasis y el aprendizaje por gradiente.
Hacia dónde puede avanzar
- Podría ser interesante comparar la autoorganización observada con los mecanismos que mantienen estados críticos en redes biológicamente realistas, donde la plasticidad dependiente de la actividad también conduce a la criticalidad.se apoya en: Cómo el cerebro se mantiene al filo de la navaja arXiv:2604.21832
- Relacionado con esto, está el trabajo sobre cómo las restricciones de conectividad (por ejemplo, la imposibilidad de que las neuronas se conecten con todas las demás) afectan la dinámica de la red; esto podría sugerir cómo funciona la regla local en arquitecturas dispersas.se apoya en: Por qué las neuronas no pueden hacerse amigas de todo el mundo arXiv:2603.19320
- En el archivo hay un análisis de cómo agentes débiles capturan redes mediante interacciones locales; quizás principios análogos de autoorganización ayuden a entender cómo la homeostasis interactúa con el aprendizaje en arquitecturas más complejas.se apoya en: Cómo los agentes de IA débiles se apoderan de las redes: la cristalización de la desigualdad arXiv:2607.01148
Vale la pena probar
- Comprobar si la autoorganización hacia la criticalidad se mantiene al usar conexiones dispersas o arquitecturas convolucionales.
- Investigar si se puede reducir el conflicto entre homeostasis y descenso de gradiente, por ejemplo aplicando la homeostasis solo a una parte de las capas o con un paso variable.
- Utilizar como métrica de criticalidad no solo el parámetro de ramificación y el exponente de Lyapunov, sino también otros indicadores, como la distribución de tamaños de avalanchas de actividad.
Por qué puede importar
Si la plasticidad local puede mantener automáticamente las redes profundas en un régimen crítico, esto abre el camino hacia arquitecturas más robustas y adaptativas que no requieran un ajuste cuidadoso de la inicialización ni un control externo de la dinámica.
Trabajos cercanos en nuestro archivo
- Cómo el cerebro se mantiene al filo de la navajacercanía 0.53
- Un gas que se hace pasar por cerebrocercanía 0.52
- Cómo aprende el cerebro a anticipar sin pistascercanía 0.51
- Por qué las neuronas no pueden hacerse amigas de todo el mundocercanía 0.50
- La orquesta celular: cómo los genes aprenden a tocar al ritmo del caoscercanía 0.50
- Una división que no fragmenta la memoriacercanía 0.50
- Cómo los agentes de IA débiles se apoderan de las redes: la cristalización de la desigualdadcercanía 0.48
El archivo está vacío alrededor de este trabajo: el análisis más cercano queda en 0.53, frente a un 0.64 habitual. Parece que aquí al lado casi nadie ha perforado.
La regla de homeostasis es tan simple que se puede describir en una línea: si una neurona está demasiado activa, debilita la conexión entrante; si está demasiado pasiva, refuérzala. Y con esto basta para que la red encuentre por sí sola el punto crítico.
Cifras clave
- capas ocultas: 9
- neuronas por capa: 1000–1600
- paso de homeostasis c: 0.001
- fracción de neuronas actualizadas por iteración: 50%
- épocas de adaptación: 20