Un mensajero enzimático en un gel denso: quién marca el ritmo ✛
Original: "Simultaneous measurements of enzyme propagation and biopolymer mobility elucidate the directional degradation of a dense biopolymer matrix"
arXiv:2609.03792v1 · 2026-09-03 · CC BY 4.0 · 2 min
La filmación simultánea del movimiento de una enzima y la degradación del gel mostró que la velocidad del proceso no está limitada por la difusión, sino por la lenta pérdida de actividad de la enzima.

Un mensajero con un paquete entra en un bosque espeso de cuerdas entrelazadas. Debe entregar la carga en el interior, pero por el camino va perdiendo fuerzas y cada paso le cuesta más. Así es una enzima que destruye un gel denso de moléculas biológicas. Hasta hace poco, nadie podía ver al mismo tiempo cómo se mueve el mensajero y cómo se aclara el bosque.

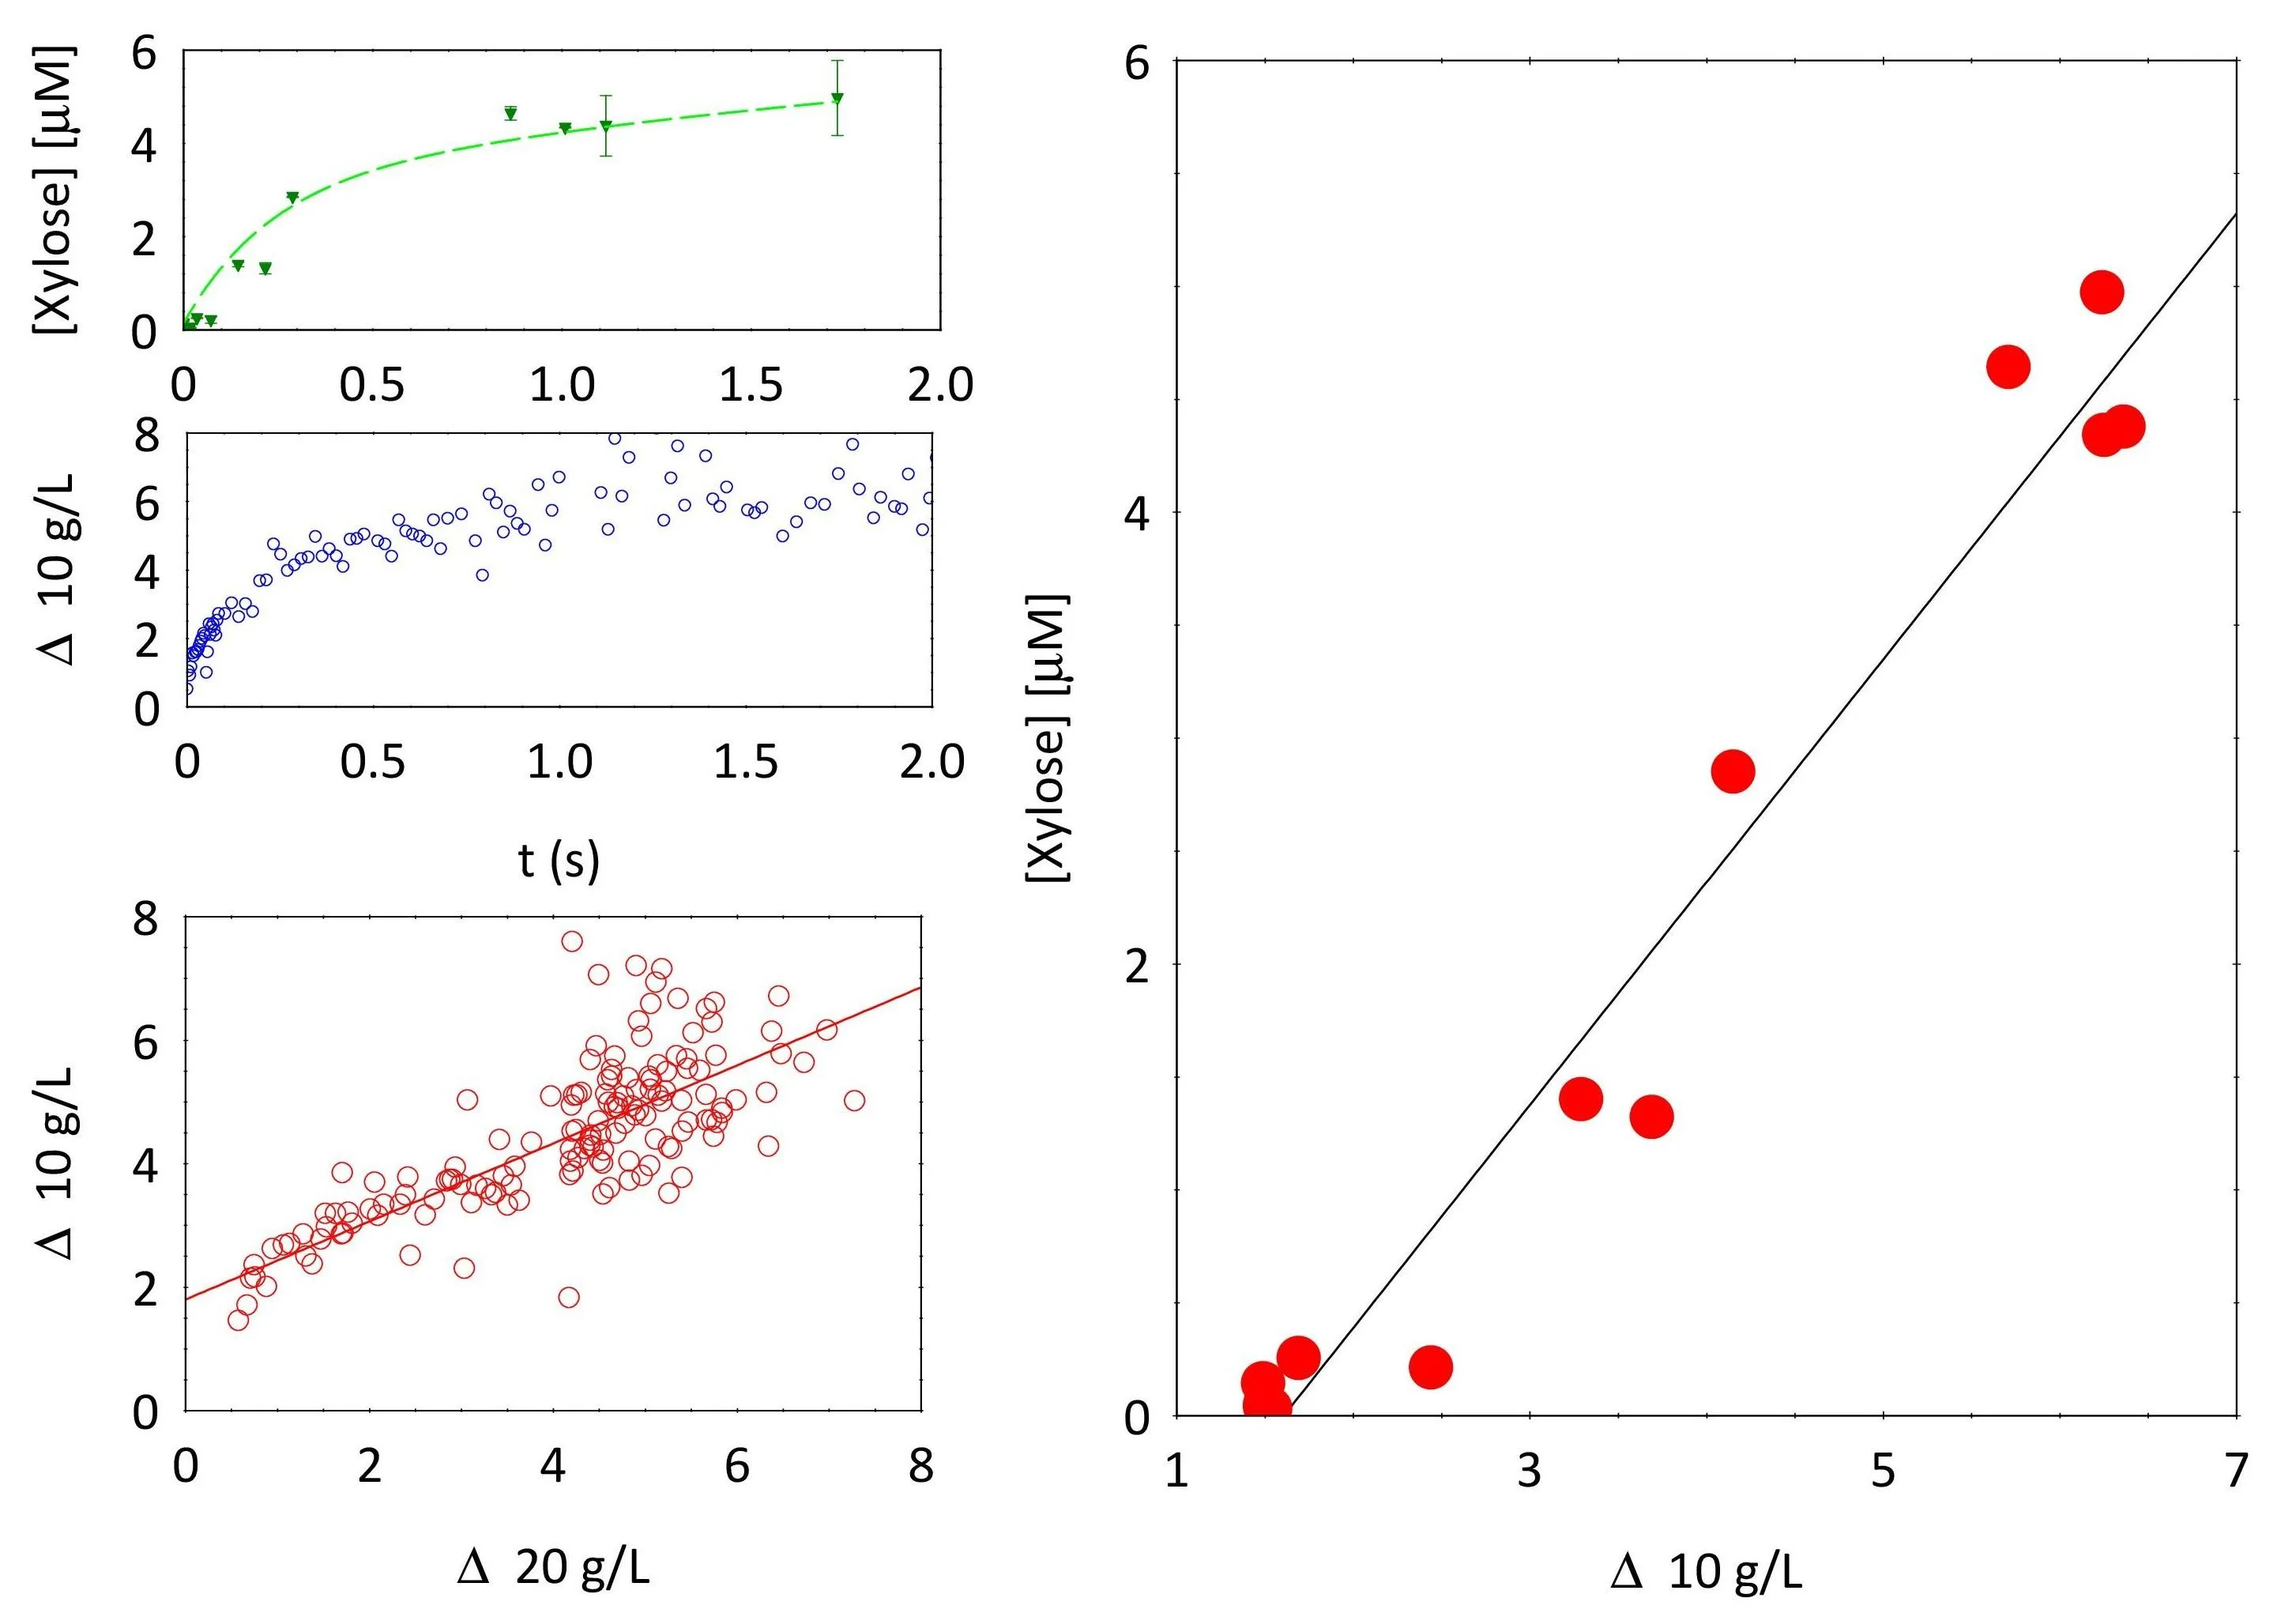
El dispositivo Fluo-PCI registró por primera vez ambas imágenes a la vez: una lámina de luz láser iluminaba la muestra, una cámara seguía el centelleo de la luz, revelando la movilidad de las cadenas poliméricas, y otra captaba la fluorescencia de la enzima marcada.

Resulta que el mensajero avanza a la misma velocidad, sin importar cuán fuerte sea ni cuán denso sea el bosque. La velocidad de su desplazamiento la determina únicamente el movimiento térmico de las moléculas. En cambio, el límite donde el bosque ya ha sido talado avanza más lentamente de lo que se esperaría por la simple penetración del mensajero.

La razón es que el mensajero se va agotando poco a poco. Su actividad decae según dos exponenciales: la mayor parte de las fuerzas se pierde rápidamente, mientras que una pequeña fracción se mantiene durante mucho tiempo. Es esta lenta extinción, y no la velocidad al caminar, lo que determina la rapidez con que se derrite el bosque.

Un modelo basado en la ecuación de Michaelis-Menten con un término de actividad decreciente reprodujo con exactitud todos los mapas experimentales. Para un mutante con fuerza reducida, bastó una sola exponencial.

Antes se pensaba que la degradación del gel podría acelerar el movimiento de la enzima, pero aquí no ocurrió así. El mensajero no recibe viento a favor de su propio trabajo. Ahora que ambos procesos se han medido juntos, se puede calcular con mayor precisión cuánta enzima y de qué tipo se necesita para convertir biomasa en combustible o para llevar un fármaco al punto exacto del cuerpo.

El exponente 0.5 en la ley de avance del frente para la enzima salvaje sugirió en un principio un control puramente difusivo, pero los datos del mutante con exponente 0.7 y la simulación mostraron que se trata de una coincidencia: en realidad, el frente se ralentiza debido a la pérdida gradual de actividad de la enzima.

f(t) = \chi \exp(-k_\alpha t) + (1-\chi) \exp(-k_\beta t)
La fracción de enzima activa disminuye según la suma de dos exponenciales: una componente rápida con constante k_α y una lenta con k_β, cuyos pesos los determina χ.
\frac{d\Delta(z,t)}{dt} = \frac{k_{cat}}{A} E(z,t) f(t) \frac{C - \Delta(z,t)}{(K_m/A) + C - \Delta(z,t)}
La velocidad de aumento de la movilidad del polímero Δ en el punto z depende de la concentración local de enzima E, de la fracción de enzima activa f(t) y de la saturación del sustrato, descrita por la constante de Michaelis K_m.
\Delta(z,t) - \frac{K_m}{A} \ln\left(\frac{C - \Delta(z,t)}{C}\right) = \frac{k_{cat}}{A} \Phi(z,t)
La movilidad Δ está determinada por la integral Φ del producto de la concentración de enzima por el factor de actividad a lo largo del tiempo, lo que da una curva universal para todas las profundidades.
Conceptos
enzima quimiotaxis dinámica de natación de microorganismos expresión génica proteína biopelícula descubrimiento de fármacos difusión división celular biomolécula biomarcador bioinformática ecuación de Michaelis-Menten modelo epidémico transferencia de energía movimiento colectivo microbiano plegamiento de proteínas transporte de electrolitos dinámica estocástica biológica