Enzimas en un biopolímero denso: quién lidera a quién ✛
Contexto
La degradación enzimática de biopolímeros se encuentra en todas partes: desde la digestión hasta la conversión de biomasa vegetal en biocombustibles. En la mayoría de las aplicaciones, la enzima se suministra desde un lado de la matriz densa y la degradación avanza como un frente cuya dirección la marca el gradiente de concentración de la enzima. En el archivo, alrededor de este trabajo, hay estudios sobre la dinámica de gotas de biopolímeros, el transporte de moléculas en la célula y el comportamiento de polímeros en medios activos. Sin embargo, todos ellos consideran o bien una distribución homogénea de la enzima, o bien solo un aspecto del proceso: el movimiento de la enzima o el cambio de la matriz. La relación entre la penetración de la enzima y la degradación del sustrato en condiciones de degradación dirigida seguía sin aclararse. Este trabajo mide por primera vez ambos procesos simultáneamente con resolución espacial y temporal.
Métodos
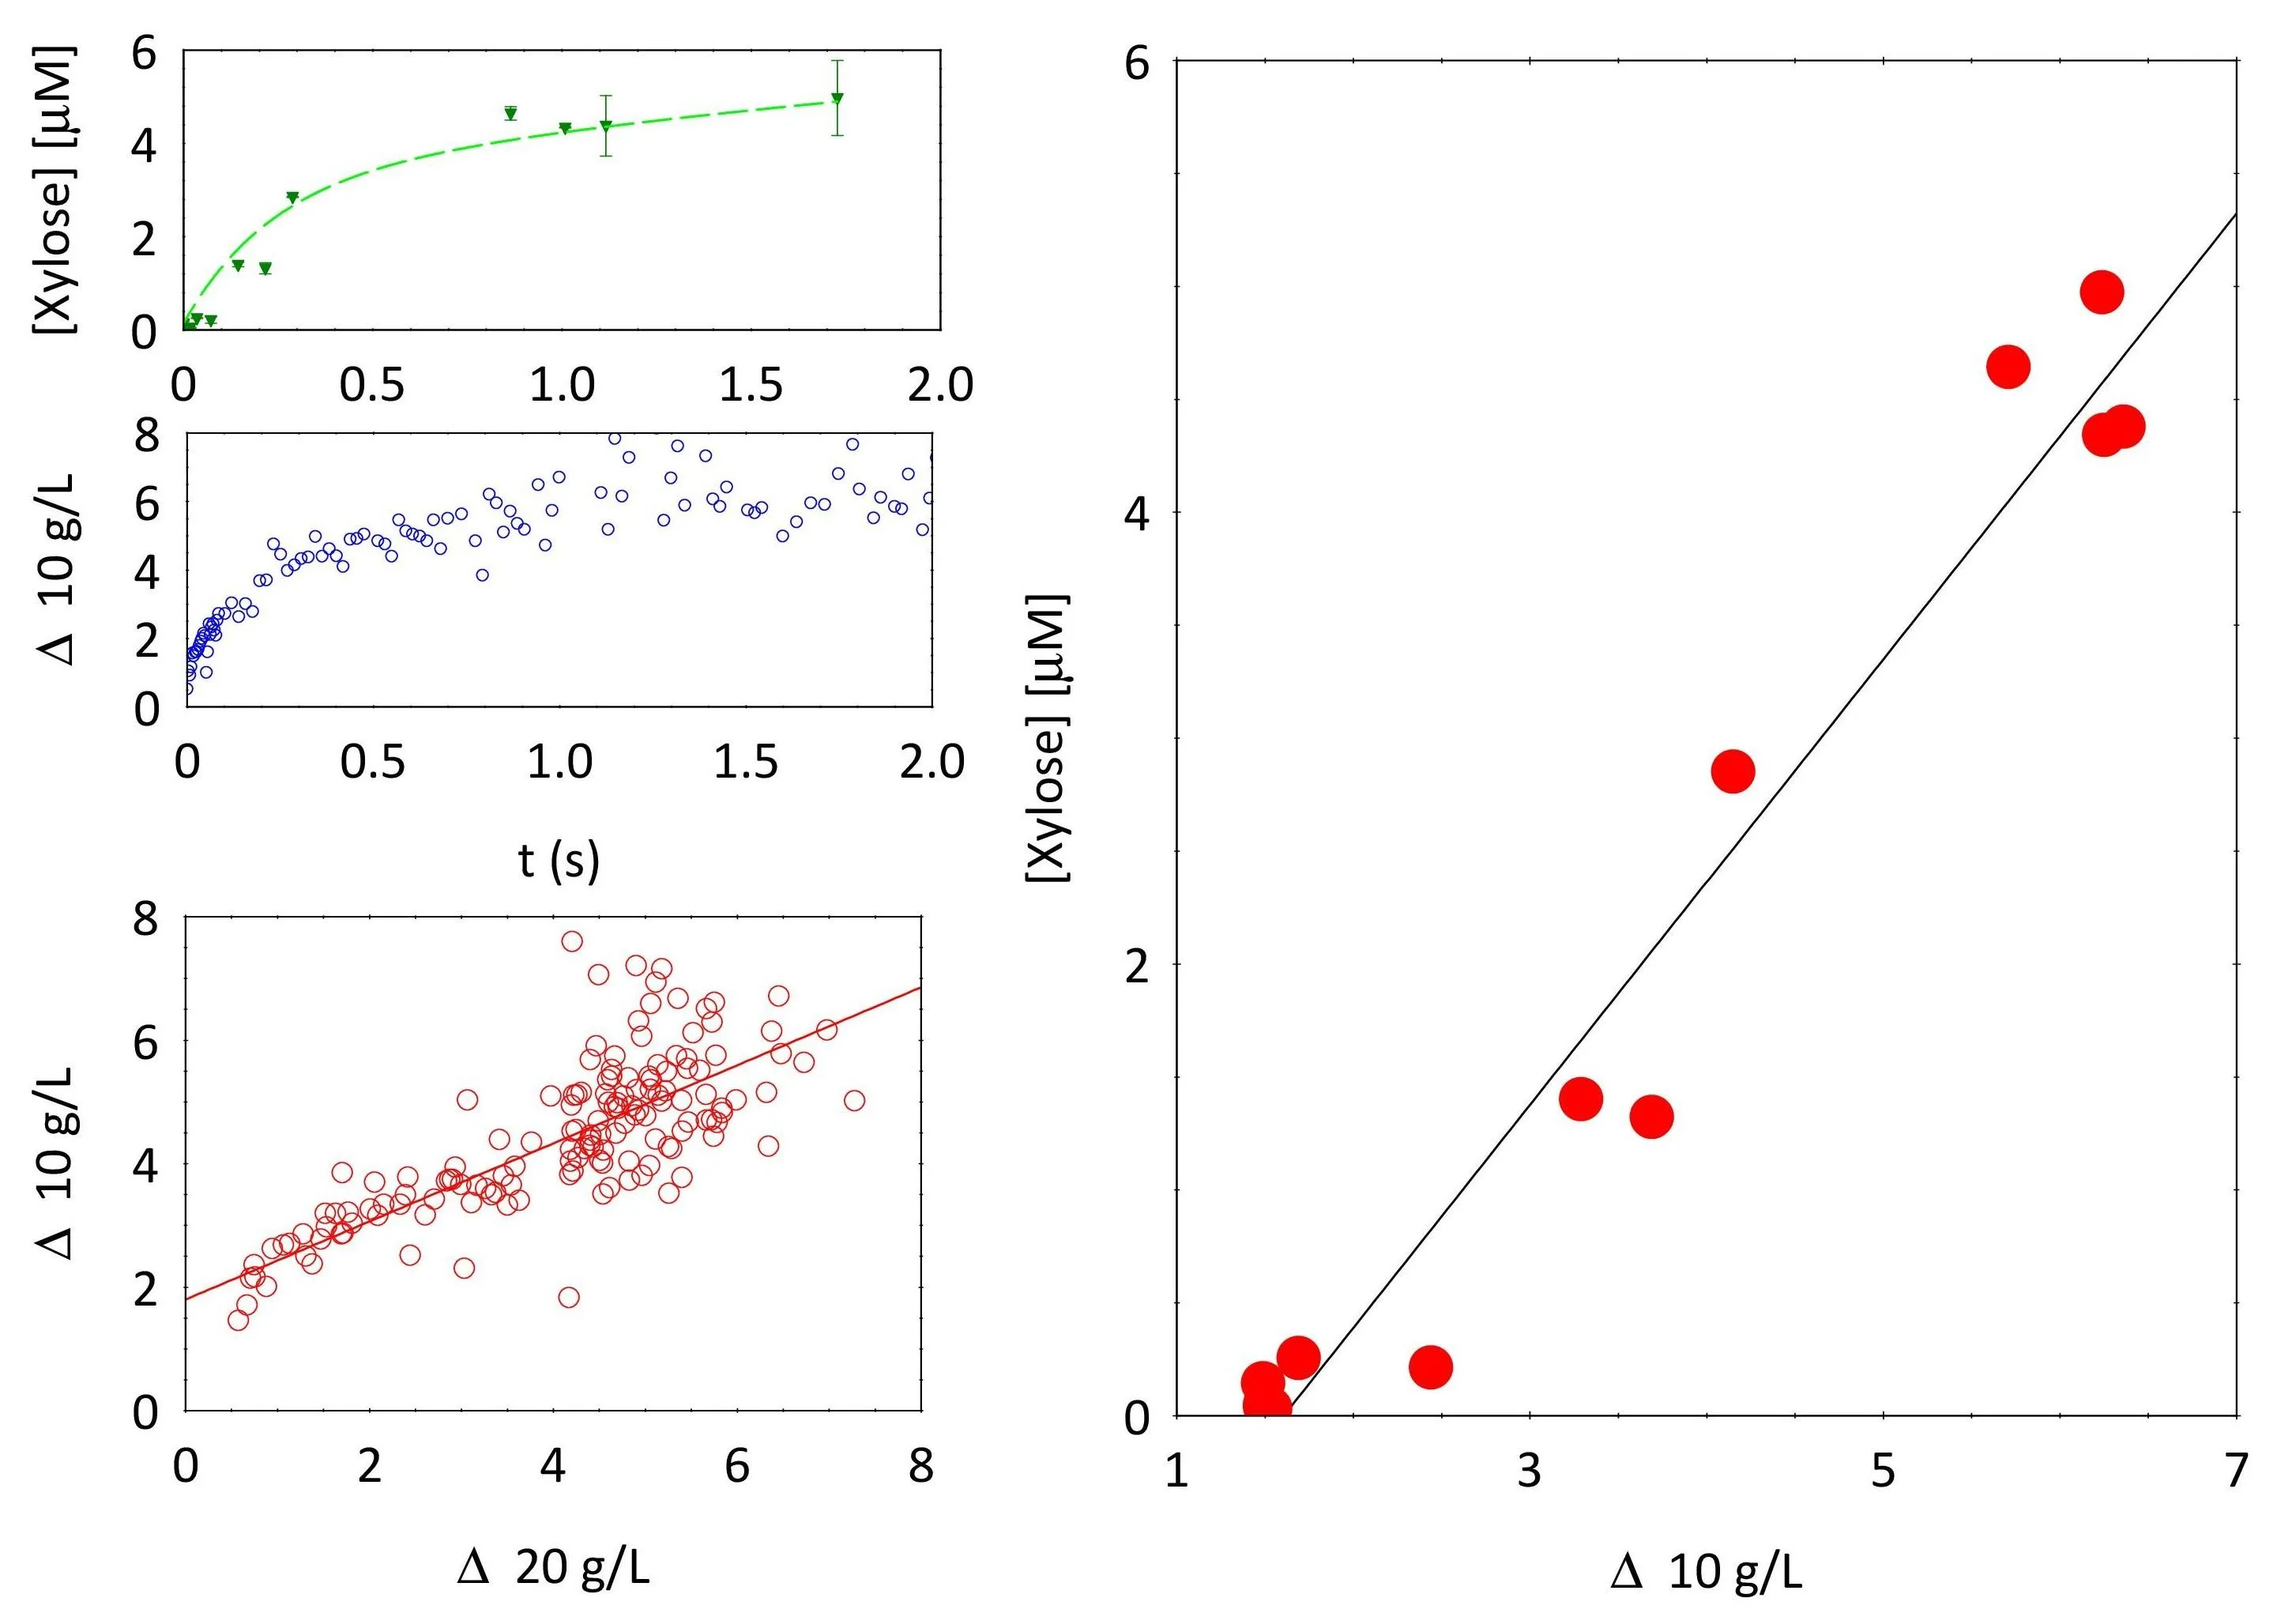
Los autores utilizaron un par modelo: arabinoxilano feruloilado (FAX), un polisacárido de las paredes celulares de los cereales, y xilanasa, una enzima que corta sus cadenas al azar. Se colocó una solución de FAX a una concentración de 10 o 20 g/L en una cubeta, y por encima se vertió cuidadosamente una solución de la enzima marcada con fluorescencia. El dispositivo especialmente diseñado, Fluo-PCI, combinaba la visualización de correlación fotónica (PCI) y la microscopía de fluorescencia: una lámina láser iluminaba la muestra, la luz dispersada iba a una cámara para medir la movilidad microscópica del polímero, y la fluorescencia a otra para rastrear la concentración de la enzima. La movilidad del polímero Δ(z,t) se calculaba a partir del grado de correlación de la luz dispersada, lo que permitía construir mapas de degradación en coordenadas profundidad-tiempo. El frente de degradación se determinaba mediante un umbral de movilidad con el algoritmo de Otsu. La difusión de la enzima se describió con la solución analítica de la ecuación de difusión unidimensional para dos tipos de partículas: grandes (la enzima) y pequeñas (fluoróforo libre).
Resultados
El frente de degradación avanzaba según una ley cercana a una potencia: z* ~ (t*)^0.5 para la enzima de tipo salvaje y con un exponente de aproximadamente 0.7 para el mutante con actividad muy reducida. La velocidad del frente aumentaba al disminuir la concentración del polímero y al aumentar la concentración de la enzima. La difusión de la enzima resultó ser la misma en todas las condiciones: el coeficiente de difusión de las partículas grandes fue (1.02±0.37)×10⁻¹⁰ m²/s, lo que corresponde a un radio hidrodinámico de unos 3.2 nm, consistente con el tamaño de la enzima. La fracción pequeña, con un coeficiente de (6.59±0.77)×10⁻¹⁰ m²/s, correspondía al fluoróforo libre. Es importante que la difusión no dependía de la actividad de la enzima: el mutante se movía igual que el tipo salvaje, lo que excluye el efecto de difusión mejorada (EED). El modelo de Michaelis-Menten con concentración de enzima espacio-temporal y un factor adicional de atenuación de la actividad f(t) = 0.92·exp(−4.6×10⁻⁵ t) + 0.08·exp(−2.7×10⁻⁶ t) (en segundos) reprodujo con precisión todos los mapas experimentales de movilidad. Para el mutante bastaba una sola exponencial con constante 1.03×10⁻⁵ s⁻¹.
Implicaciones
Este trabajo se sitúa un poco aparte de los vecinos: estos estudian o bien la dinámica de polímeros sin enzimas, o bien el transporte de moléculas en la célula sin tener en cuenta la degradación de la matriz. Aquí se combinan por primera vez ambas mediciones en un mismo experimento, además con resolución espacial milimétrica y resolución temporal de decenas de milisegundos. Esto permitió separar las contribuciones de la difusión y de la cinética de la reacción, y revelar el papel clave de la lenta desactivación de la enzima. Este enfoque podría convertirse en un estándar para estudiar la degradación enzimática dirigida en medios densos.
Desarrollo futuro
La metodología Fluo-PCI es aplicable a cualquier par enzima-biopolímero en el que sea posible un marcaje fluorescente. Se puede investigar la influencia de la viscosidad, el tamaño de poro, la carga y las interacciones específicas en la relación entre difusión y degradación. Es prometedor estudiar sistemas con múltiples enzimas que trabajan sinérgicamente, por ejemplo, cócteles de celulasas para el procesamiento de lignocelulosa. El desarrollo del modelo que tenga en cuenta la heterogeneidad espacial de la desactivación y la posible inhibición por productos permitirá predecir con mayor precisión la dinámica del proceso en biorreactores reales.
Impacto
Los resultados afectan directamente a la optimización de la hidrólisis enzimática de biomasa para la producción de biocombustibles y bioplásticos, así como al desarrollo de sistemas de administración controlada de fármacos con portadores sensibles a enzimas.
Próximos pasos
Verificar la universalidad del modelo en otros sustratos y enzimas, incluyendo diferentes grados de entrecruzamiento de la red polimérica. Investigar el mecanismo de desactivación de la enzima en la matriz densa a nivel molecular.
Problemas abiertos clave
En el campo de la degradación enzimática de biopolímeros sigue abierta la cuestión de la naturaleza de la difusión mejorada de enzimas (EED): en algunos sistemas se observa, en otros no. Este trabajo muestra la ausencia de EED para la xilanasa en una solución semidiluida de arabinoxilano, lo que añade un argumento a la discusión. También sigue sin resolverse el problema de predecir la eficacia de los cócteles enzimáticos en sustratos heterogéneos, donde la disponibilidad local del sustrato y la inactivación de la enzima cambian en el espacio y el tiempo.
La mirada de la máquina del conocimiento
Esta sección está dirigida al autor del trabajo y a sus colegas. Los trabajos vecinos los encontró la búsqueda por significado en nuestro archivo, no por coincidencia de palabras. No evaluamos: mostramos el campo alrededor.
Qué hace el trabajo
Los autores construyeron un dispositivo llamado Fluo-PCI que mide simultáneamente la difusión de una enzima marcada con fluorescencia y la movilidad microscópica de las cadenas poliméricas en un gel. Demostraron que el frente de degradación avanza según una ley de potencias, y que la difusión de la enzima no depende de su actividad ni de la concentración del polímero. El modelo de Michaelis-Menten, que incorpora la disminución de la actividad, reproduce los datos experimentales.
Dónde está su fuerza
Este trabajo establece por primera vez una conexión entre la penetración de la enzima y la degradación del sustrato en condiciones de degradación dirigida, proporcionando una base cuantitativa para optimizar procesos biotecnológicos.
Hacia dónde puede avanzar
- Existe un trabajo cercano sobre fuerzas entrópicas en gotas de biopolímeros en crecimiento: es posible que mecanismos similares afecten la movilidad local de las cadenas cerca del frente de degradación.se apoya en: La frontera entrópica: por qué las gotas biopoliméricas en crecimiento se encogen desde los bordes arXiv:2606.31786
- Podría resultar interesante comparar la dinámica observada del frente con modelos de medios activos, donde las redes poliméricas se reorganizan bajo la acción de motores moleculares.se apoya en: Cómo los motores celulares determinan el tamaño de las gotas arXiv:2604.08316
- En el archivo hay un análisis sobre la influencia de los disolventes en la pared celular: trasladar este enfoque a otras matrices de biopolímeros podría revelar patrones universales de degradación.se apoya en: Cómo el alcohol y el cloroformo aflojan la pared celular arXiv:2605.08780
Vale la pena probar
- Investigar si la distribución de tamaños de poro en el gel cambia a medida que avanza el frente, utilizando los métodos del estudio sobre poros en membranas.
- Probar el modelo incorporando la heterogeneidad de la red polimérica, como se hace en el análisis del frente entrópico.
- Comparar la cinética de degradación con la dinámica de ensamblaje del citoesqueleto para identificar principios comunes en la reorganización de biopolímeros.
Por qué puede importar
Comprender la relación entre el transporte de la enzima y la degradación de la matriz es esencial para el diseño racional de procesos enzimáticos en biotecnología, incluyendo el aprovechamiento de biomasa y la administración de fármacos.
Trabajos cercanos en nuestro archivo
- Las proteínas doblan la membrana como una cuchara dobla la nata de la lechecercanía 0.53
- La frontera entrópica: por qué las gotas biopoliméricas en crecimiento se encogen desde los bordescercanía 0.51
- Cómo las células construyen la frontera del crecimientocercanía 0.50
- Cómo los motores celulares determinan el tamaño de las gotascercanía 0.50
- Los filamentos cósmicos tiran en dos direccionescercanía 0.49
- Poros en la membrana: tres claves para un cálculo precisocercanía 0.49
- Cómo el alcohol y el cloroformo aflojan la pared celularcercanía 0.48
El archivo está vacío alrededor de este trabajo: el análisis más cercano queda en 0.53, frente a un 0.64 habitual. Parece que aquí al lado casi nadie ha perforado.
El exponente 0.5 en la ley de avance del frente para la enzima salvaje sugirió en un principio un control puramente difusivo, pero los datos del mutante con exponente 0.7 y la simulación mostraron que se trata de una coincidencia: en realidad, el frente se ralentiza debido a la pérdida gradual de actividad de la enzima.
Cifras clave
- coeficiente de difusión de la enzima: 1.02×10⁻¹⁰ m²/s
- radio hidrodinámico de la enzima: 3.2 nm
- exponente de la ley de avance para WT: 0.515±0.003
- constante de desactivación rápida: 4.6×10⁻⁵ s⁻¹
- constante de desactivación lenta: 2.7×10⁻⁶ s⁻¹