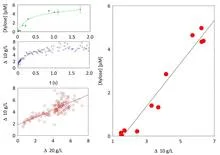
En 1913, el bioquímico alemán Leonor Michaelis y la médica canadiense Maud Menten publicaron una ecuación que se convirtió en la piedra angular de la enzimología. Estudiaron la enzima invertasa, que descompone la sacarosa, y observaron que la velocidad de reacción depende de la concentración de sacarosa de forma no lineal. Michaelis y Menten supusieron que la enzima (E) y el sustrato (S) forman primero un complejo (ES), que luego se descompone en producto (P) y enzima libre. Esto es similar a una cola en la caja: los clientes (sustrato) se acercan al cajero (enzima), forman un par "cajero-cliente", después el cliente se va con la mercancía (producto) y el cajero está listo para atender al siguiente. La ecuación se deduce de este modelo y da la velocidad de reacción v = (V_max * [S]) / (K_m + [S]). Aquí V_max es la velocidad máxima, cuando todos los cajeros están ocupados, y K_m es la concentración de sustrato a la que la mitad de los cajeros están ocupados. Sorprendentemente, la ecuación funciona incluso para muchas enzimas cuyo mecanismo es más complejo que este esquema simple.
Historia
En 1902, el químico británico Adrian Brown propuso que la reacción enzimática incluye la formación de un complejo de la enzima con el sustrato. En 1913, Leonor Michaelis y Maud Menten, trabajando en Berlín, formalizaron matemáticamente esta idea y dedujeron la ecuación, utilizando la suposición de un equilibrio rápido entre la enzima, el sustrato y el complejo. En 1925, George Briggs y John Haldane mejoraron la deducción introduciendo la suposición de un estado cuasiestacionario de la concentración del complejo enzima-sustrato, lo que amplió la aplicabilidad de la ecuación. Maud Menten, una de las primeras mujeres médicas de Canadá, además de la enzimología, contribuyó a la histoquímica y la electroforesis de proteínas.
Cómo funciona
La ecuación de Michaelis-Menten se utiliza ampliamente en bioquímica y farmacología para determinar los parámetros cinéticos de las enzimas. En la práctica, se mide la velocidad inicial de reacción a diferentes concentraciones de sustrato y se construye un gráfico de dependencia de v respecto a [S]: una hipérbola. Para determinar con precisión V_max y K_m se emplean linealizaciones, por ejemplo, el método de Lineweaver-Burk (1/v frente a 1/[S]) o el método de Eadie-Hofstee. Límites de aplicabilidad: la ecuación es válida para reacciones simples con un solo sustrato sin cooperatividad ni regulación alostérica. Para casos más complejos se utiliza la ecuación de Hill o modelos con varias constantes de disociación.
En la práctica
Cálculo de dosis de medicamentos y comprensión de la rapidez con que el organismo los procesa. En biotecnología, ayuda a diseñar enzimas eficientes para la producción de quesos y detergentes.
Dato curioso
La constante de Michaelis para diferentes enzimas varía en millones de veces. Por ejemplo, para la catalasa, que descompone el peróxido de hidrógeno, la K_m es de aproximadamente 1 mol por litro: la enzima está lista para trabajar incluso a concentraciones enormes. En cambio, para la hexoquinasa, que inicia la asimilación de la glucosa, la K_m es de solo 0.1 mmol/l: se satura ya con pequeñas dosis de azúcar.
Anote la receta y, una hora después, compárela con lo que tiene en la olla: si las proporciones se desviaron aunque sea un gramo, el sabor se perdió. Algo parecido ocurre con las reacciones químicas en sistemas abiertos: la mínima diferencia en las concentraciones iniciales crece con el tiempo hasta dar estados completamente distintos.
Un mensajero con un paquete entra en un bosque espeso de cuerdas entrelazadas. Debe entregar la carga en el interior, pero por el camino va perdiendo fuerzas y cada paso le cuesta más. Así es una enzima que destruye un gel denso de moléculas biológicas. Hasta hace poco, nadie podía ver al mismo tiempo cómo se mueve el mensajero y cómo se aclara el bosque.
Una proteína en la célula no permanece inmóvil, como un maniquí en un escaparate. Sus átomos tiemblan, se estiran y se doblan constantemente, como una cuerda de guitarra tensa que sigue sonando después de que la rozas con el dedo. Para entender cómo funciona una proteína, hay que saber con qué firmeza cada parte se aferra a sus vecinas.
Cuando el azúcar cae en el té, se disuelve. Pero, ¿por qué no vuelve a precipitarse? Todo se debe al potencial químico, una magnitud que indica cuán "conveniente" es para una sustancia encontrarse en un lugar y estado determinados. Para una sustancia pura es fácil de calcular, pero para una mezcla de varios componentes es un verdadero rompecabezas.
El agua caliente a veces se congela más rápido que la fría. Del agua hirviendo se forma hielo antes. Esta paradoja, descubierta por el estudiante Erasto Mpemba, inquietó durante mucho tiempo a los físicos. Resultó que cuanto más lejos está un sistema del equilibrio, más rápido lo alcanza.
El efecto Mpemba sigue siendo controvertido: hay demasiadas variables y es difícil de reproducir.
Una batidora de cocina funciona a una sola velocidad, pero si empiezas a pulsar el botón a tirones, la mezcla se bate de otra manera. Algo parecido ocurre con las reacciones químicas cuando la velocidad de sus etapas individuales no es constante, sino que pulsa en el tiempo.
Preparar un plato complejo exige una receta clara: primero cortar, luego sofreír, añadir las especias en el momento justo. Las transformaciones químicas también siguen recetas paso a paso, mecanismos donde los átomos de carbono e hidrógeno se reorganizan en un orden estricto.
La célula se parece a una biblioteca donde cada día se copian miles de libros. Las máquinas moleculares —polimerasas y ribosomas— se deslizan a lo largo de la cadena plantilla y ensamblan una copia, eslabón por eslabón. Estas máquinas tienen varios estados: pueden frenarse, equivocarse o cambiar de modo.
Un cruce concurrido sin semáforo. Los coches avanzan, frenan, cambian de carril — y desde fuera parece reinar el caos total. Pero si uno observa durante un rato, puede notar un ritmo: el flujo se espesa y se adelgaza.
Una fábrica donde cientos de diminutas líneas de montaje trabajan sin parar. Cada línea es un motor molecular que convierte combustible químico en movimiento. Para que el motor vaya más rápido o en la dirección deseada, el ingeniero cambia los ajustes: la forma de las piezas, la fuerza de las interacciones.
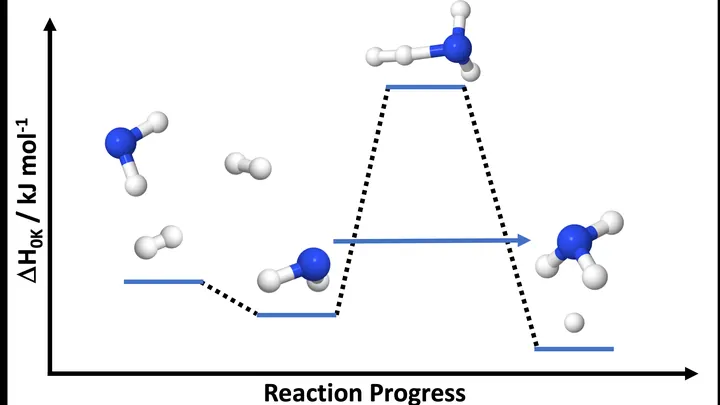
Una pelota rueda hacia una colina, pero no tiene suficiente impulso y vuelve a caer. Así lo dicta la mecánica clásica. Pero en el mundo cuántico, una partícula diminuta a veces atraviesa la colina como si no existiera. Ese truco —el efecto túnel— es algo habitual para el ligero átomo de hidrógeno.
Cuando dos núcleos atómicos chocan, el resultado depende de su energía y del ángulo de dispersión de los fragmentos. Normalmente, estos cálculos requieren enormes recursos computacionales y la precisión choca con las aproximaciones.
Una aleación de siete metales es como un equipo donde cada jugador tira de la manta hacia sí. Los átomos de hierro, cobalto, níquel, aluminio, titanio, tantalio y vanadio pueden colocarse en un patrón estricto o dispersarse en posiciones aleatorias. De ello depende que el material sea tan resistente como el acero o tan ligero como el aluminio.
Si remueves azúcar en un vaso, parece que el agua se mueve al azar. Pero dentro de un reactor químico con agitador, el líquido no solo burbujea: forma «islas» ocultas que apenas intercambian contenido. Los científicos encontraron una manera de ver estas islas siguiendo las trayectorias de partículas diminutas.
Así como el agua se congela en hielo o se evapora, la forsterita en el manto terrestre bajo presión de miles de atmósferas reensambla su patrón atómico — como un cubo de Rubik, cuyas caras se reconfiguran en nuevas combinaciones. Nacen los minerales wadsleyita y ringwoodita, y estos reordenamientos alimentan la lenta mezcla de rocas que mueve los continentes.
Dentro de cada músculo hay un equipo de remeros: las proteínas de miosina, que se agarran a los filamentos de actina, dan una palada y sueltan. El combustible para la palada es la molécula de ATP. Cuando los remeros trabajan coordinados, el músculo se contrae y el cuerpo se mueve.
En una máquina de circulación extracorpórea, la sangre fluye a través de tubos estrechos y aspas de bomba que giran rápidamente. A veces los glóbulos rojos no aguantan: su membrana se rompe y la hemoglobina se vierte en el plasma. Para el paciente, es como si alguien echara arena en el sistema de combustible de un automóvil: los pequeños daños se acumulan y estropean todo el mecanismo.
Dentro de un diminuto sensor de aceleración, el gas no se comporta como el aire de una habitación. Hay tan pocas moléculas que rara vez chocan entre sí, y las leyes habituales de viscosidad y conductividad térmica dejan de funcionar.
Una reacción química ordinaria es como una pelota que rueda cuesta abajo: tiene un único camino natural. Pero si colocas las moléculas en una diminuta caja de espejos —un microresonador óptico—, la luz en su interior comienza a interferir con el movimiento de la pelota. Puede empujarla, frenarla o incluso dividir su trayectoria en dos.