Comment vieillit chaque cellule : voyage à travers le paysage de la méthylation express
La méthylation de l'ADN, ce sont de minuscules marques chimiques sur nos gènes. Au fil des ans, elles évoluent selon un calendrier assez strict. Les horloges épigénétiques classiques observent ces marques et affichent un seul chiffre : l'âge biologique. Mais un chiffre ne raconte pas comment le motif des marques s'est réorganisé jour après jour, année après année. Les auteurs de l'étude ont décidé de transformer une photographie statique en un film continu.
Pour cela, ils ont rassemblé des données de méthylation de milliers de personnes d'âges différents — des nourrissons aux centenaires. Ensuite, ils ont construit un paysage mathématique. Chaque point y correspond à un motif de marques précis, et l'âge donne la direction du mouvement. D'abord, un autoencodeur spécial (un algorithme qui compresse des données complexes en une carte simple) a transformé le motif hétéroclite en un schéma compact, tout en conservant la possibilité de le décoder en sens inverse. Puis, un modèle de transport optimal a calculé le chemin de vieillissement le plus naturel à travers ce paysage. Il a pris en compte à la fois les errances aléatoires et la perte inévitable de cellules avec l'âge.
Le résultat le plus frappant apparaît après 60–70 ans. La vitesse des changements aléatoires grimpe brusquement. Le paysage du vieillissement devient comme plus « meuble », et les trajectoires des différentes personnes divergent de plus en plus. Le décodage inverse a montré que ces divergences ne sont pas chaotiques. Elles se regroupent en plusieurs scénarios typiques — une sorte d'archétypes du vieillissement. On peut désormais les étudier séparément.
Ainsi, de la simple statique d'une « horloge », la science passe à la cartographie de la vie moléculaire. Et pour la première fois, cette carte a un relief — avec des accélérations, des ralentissements et des bifurcations. Il reste à les explorer.
Résumé original
tel que rédigé par les auteurs, en anglais arXiv:2607.06583
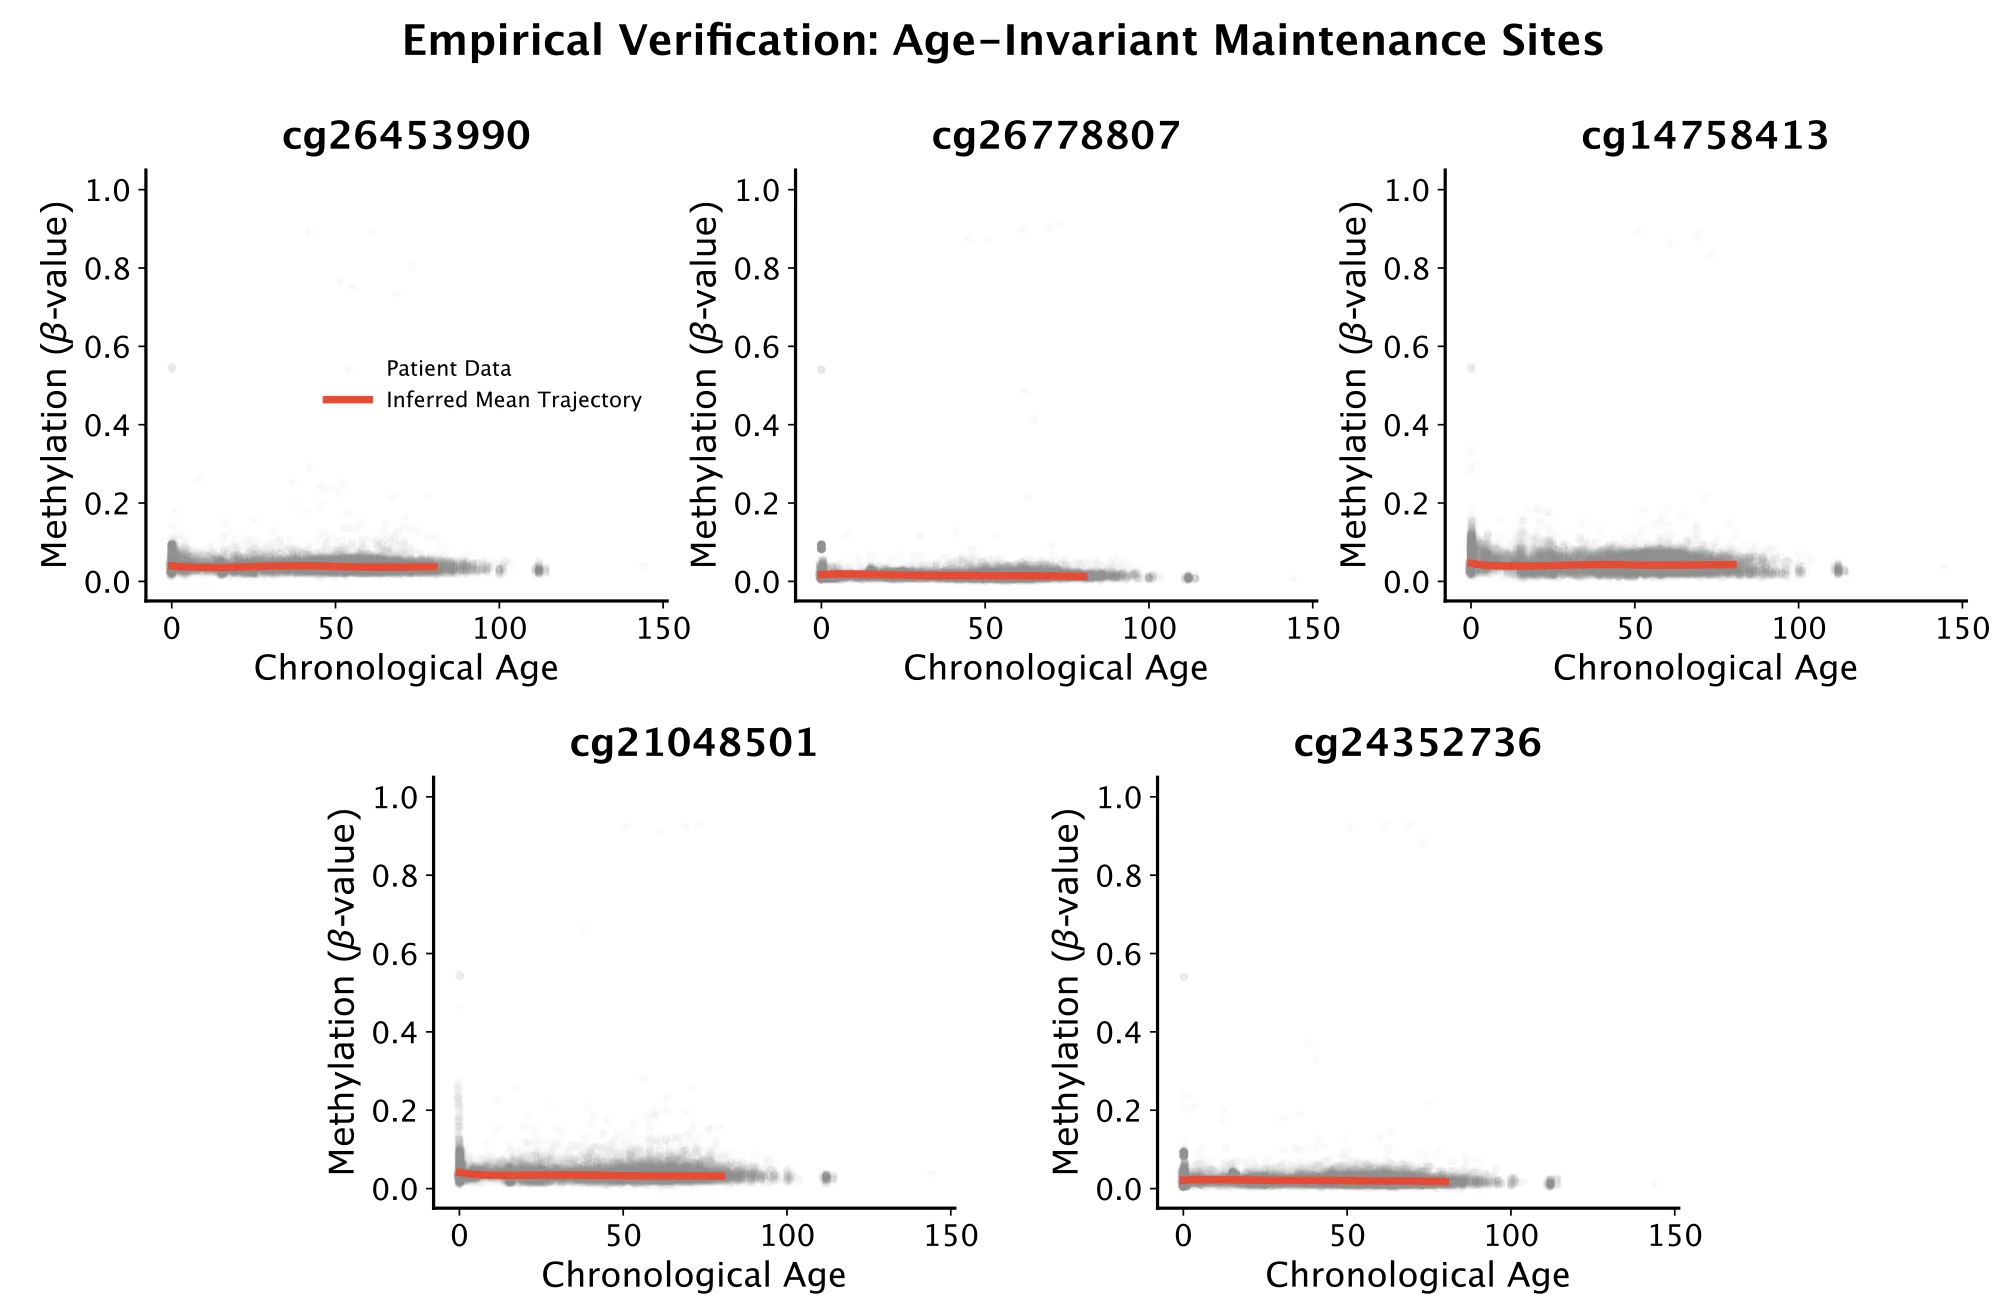
DNA methylation (DNAm) serves as one of the most robust molecular biomarkers of biological aging. While conventional epigenetic clocks accurately predict chronological age from high-dimensional CpG profiles, they treat aging as a static regression task, meaning they can only output a single score rather than simulating how an entire profile continuously changes over time. To reconstruct these continuous dynamics, we frame lifelong human epigenetic aging as a trajectory inference problem across discrete age snapshots derived from widely available cross-sectional data. We introduce a two-stage computational pipeline: first, an age-regularized Variational Autoencoder (VAE) maps high-dimensional CpG profiles onto a chronologically ordered latent manifold while preserving a generative decoder bridge back to the original methylation space. Second, we model the continuous movement across this latent space via Regularized Unbalanced Optimal Transport (RUOT) that unifies deterministic drift, random diffusion, and non-conservative mass changes. By resolving this RUOT formulation using the DeepRUOT framework, our model fluidly accommodates population-level density shifts like survivorship bias and cellular attrition without requiring rigid biological priors. Evaluated on a large-scale, 80-year pan-tissue dataset, our model demonstrates robust distribution interpolation and uncovers a prominent late-life surge in the learned growth field that mathematically captures the variance expansion driven by stochastic epigenetic drift. Finally, by decoding continuous latent paths back to individual CpG sites, we reconstruct and empirically verify distinct biological aging archetypes, offering a rigorous, generative paradigm for simulating human molecular aging.
Chez les nouveau-nés, le motif de méthylation de l'ADN est presque identique, mais à 80 ans, les différences entre les individus deviennent si grandes que l'on peut distinguer de manière fiable une personne d'une autre grâce à ces marques — comme des empreintes digitales, mais moléculaires.
Dans la série « Altered Carbon », les riches stockent des sauvegardes de leur conscience sur une « pile », mais ne peuvent pas arrêter le vieillissement de leur enveloppe biologique. Le modèle de cette étude est un pas vers la capacité non seulement de mesurer l'usure de l'enveloppe, mais aussi de prédire et de corriger sa trajectoire.