Défauts dans le tissu : comment la taille des obstacles dicte la symétrie ✛
Contexte
Les défauts topologiques dans les couches cellulaires contrôlent l'apoptose, la cicatrisation et la morphogenèse. Jusqu'à présent, on étudiait surtout des régions sans trous ou avec un seul trou, où la charge totale est non négative. Or, les tissus biologiques entourent souvent plusieurs obstacles, par exemple des vaisseaux ou des cavités. Dans ces régions à deux trous ou plus, la caractéristique d'Euler est négative, et des défauts de charge négative doivent apparaître. Ce travail étudie pour la première fois, expérimentalement et théoriquement, les configurations stables de deux défauts -1/2 dans un domaine triplement connexe, ce qui est important pour comprendre la mécanique des tissus autour d'obstacles internes.
Méthodes
Des myoblastes C2C12 ont été cultivés sur des substrats en polydiméthylsiloxane comportant un puits circulaire de 1 mm de diamètre et deux piliers cylindriques symétriques de diamètre compris entre 0,1 et 0,4 mm. L'orientation des cellules a été déterminée à partir d'images en contraste de phase à l'aide du plugin OrientationJ, et les défauts ont été identifiés par les minima locaux du paramètre d'ordre. Théoriquement, le champ d'orientation a été construit analytiquement à l'aide d'une fonction holomorphe satisfaisant des conditions aux limites d'ancrage tangentiel. L'énergie de Frank a été minimisée numériquement par la méthode de Newton, en faisant varier les positions des deux défauts de charge -1/2.
Résultats
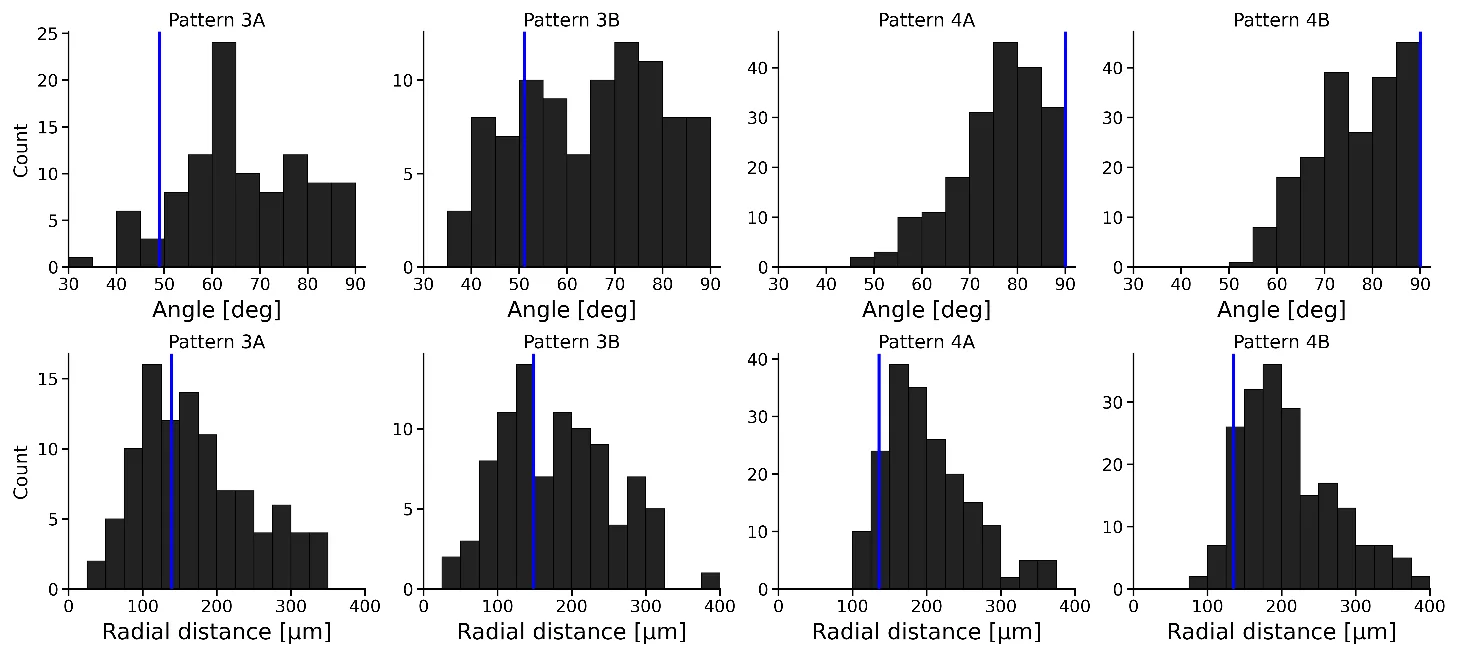
Pour des obstacles de diamètre 0,3 et 0,4 mm, on observe dans la plupart des échantillons exactement deux défauts -1/2, et la charge topologique totale est égale à -1, comme l'exige le théorème de Poincaré–Hopf. Pour les obstacles plus petits, l'ancrage aux frontières est perturbé et des défauts supplémentaires apparaissent. La distribution spatiale des défauts montre que, pour un diamètre de 0,4 mm, ils sont localisés près de l'axe vertical, tandis que pour 0,3 mm ils sont décalés vers le centre et écartés de l'axe. L'analyse théorique révèle des bifurcations : pour un rayon des obstacles inférieur à 0,18, la configuration horizontale est la plus stable ; entre 0,18 et 0,38, c'est la configuration hors axe ; et au-delà de 0,39, la configuration verticale. Les pics expérimentaux des distributions coïncident avec les minima théoriques de l'énergie à 60 μm près.
Implications
Ce travail montre que la taille des obstacles internes contrôle la symétrie de l'alignement cellulaire par le biais de contraintes topologiques. Contrairement aux études précédentes sur des domaines simplement connexes, où la position des défauts était déterminée par la courbure de la frontière, ici l'interaction des défauts avec les ouvertures crée plusieurs points critiques de l'énergie. Cela explique comment les tissus peuvent générer différents motifs de forces lors de la morphogenèse ou du mouvement des organes en modifiant la taille des cavités. La relation analytique obtenue entre la géométrie et la configuration des défauts fournit une base pour prédire la mécanique des tissus avec obstacles.
Développements futurs
Le modèle théorique peut être étendu au cas d'un ancrage non horizontal et à la dynamique des défauts, en incluant des conditions initiales stochastiques. Des expériences avec d'autres types de cellules et des obstacles de formes différentes permettront de vérifier l'universalité des conclusions. Il serait également intéressant d'étudier des analogues tridimensionnels, comme les lignes de disinclinaison dans le muscle cardiaque, où deux défauts -1/2 sont observés entre les ventricules.
Impact
Les résultats sont applicables en ingénierie tissulaire pour concevoir des échafaudages avec une orientation cellulaire contrôlée, ainsi que pour comprendre la croissance tumorale autour des vaisseaux et la rupture des tissus épithéliaux.
Prochaines étapes
Mener des expériences avec des obstacles de tailles intermédiaires pour cartographier précisément les bifurcations. Intégrer au modèle la dynamique d'annihilation des paires de défauts et la variabilité des états initiaux.
Problèmes ouverts clés
Ce travail relie la géométrie du domaine aux défauts topologiques dans les tissus biologiques, ce qui est important pour comprendre la morphogenèse et la mécanique des organes. Une question reste ouverte : comment les cellules perçoivent-elles la courbure des obstacles et comment cela affecte-t-il leur activité contractile ?
Le regard de la machine du savoir
Cette section s'adresse à l'auteur du travail et à ses collègues. Les travaux voisins ont été trouvés par une recherche sémantique dans notre archive, et non par correspondance de mots. Nous n'évaluons pas : nous montrons le champ autour.
Ce que fait ce travail
Dans ce travail, les configurations de deux défauts topologiques de charge -1/2 dans un monocouche cellulaire autour de deux obstacles cylindriques ont été étudiées expérimentalement et théoriquement. Il est montré que la taille des obstacles détermine la symétrie de l'arrangement des défauts : de horizontale à verticale en passant par hors-axe. Le modèle théorique basé sur l'énergie de Frank reproduit les positions observées des défauts avec une précision de 60 µm.
Où est sa force
La force de ce travail réside dans la combinaison de l'expérience et de la théorie analytique pour un domaine triplement connexe, ce qui a permis de mettre en évidence des bifurcations dans la position des défauts lorsque la géométrie change. La relation obtenue entre la taille des obstacles et la symétrie des défauts est un résultat concret sur lequel on peut construire de futures recherches.
Vers où avancer
- Il pourrait être intéressant de comparer l'influence de la courbure de la frontière sur la position des défauts avec les résultats pour des domaines simplement connexes, où la courbure dicte la taille des défauts, comme dans le travail sur la mécanique céleste des cellules.appui : La mécanique céleste des cellules : quand la courbure impose la taille arXiv:2607.07102
- Une autre piste est l'utilisation de contraintes topologiques pour contrôler le comportement cellulaire : dans le travail sur les cordes cosmiques dans les nanocomposites, des défauts similaires sont utilisés pour créer des structures, ce qui pourrait suggérer comment utiliser les configurations de défauts pour contrôler la croissance tissulaire.appui : Cordes cosmiques dans un nanocomposite : comment voir l'écho du Big Bang arXiv:2607.14697
- Il pourrait être utile d'examiner la dynamique des défauts lors de changements de forme ou de nombre d'obstacles, en s'appuyant sur l'approche du travail sur la façon dont les cellules construisent la frontière de croissance, qui étudie l'interaction des cellules avec les contraintes géométriques.appui : Comment les cellules construisent la frontière de la croissance arXiv:2603.28630
À essayer
- Vérifier si la bifurcation prédite est conservée pour des obstacles non circulaires, par exemple elliptiques.
- Étudier la dynamique de transition entre les configurations lors d'un changement lent de la taille des obstacles dans un monocouche vivant.
- Utiliser la relation identifiée pour créer des substrats avec un arrangement de défauts donné et tester leur influence sur la migration collective des cellules.
Pourquoi cela peut compter
Comprendre comment la géométrie des obstacles contrôle les défauts topologiques pourrait fournir des outils pour contrôler l'organisation cellulaire en ingénierie tissulaire et pour expliquer les processus morphogénétiques où les tissus entourent des cavités multiples.
Travaux voisins dans notre archive
- La lumière se tord dans les tumeursproximité 0.52
- La mécanique céleste des cellules : quand la courbure impose la tailleproximité 0.52
- Anomalie familiale : pourquoi les lignes chargées refusent la symétrieproximité 0.51
- Comment les cellules choisissent la forme du corpsproximité 0.51
- Les divisions cellulaires amortissent les avalanches dans les tissus vivantsproximité 0.51
- Cordes cosmiques dans un nanocomposite : comment voir l'écho du Big Bangproximité 0.50
- Comment les cellules construisent la frontière de la croissanceproximité 0.49
L'archive est vide autour de ce travail : l'analyse la plus proche n'est qu'à 0.52, contre 0,64 d'ordinaire. Il semble qu'on ait peu foré à côté.
Dans le cœur humain, deux défauts -1/2 ont été détectés entre les ventricules, et leur position correspond aux prédictions pour un domaine triplement connexe.
Dans le roman « Solaris » de Stanislas Lem, l'océan crée des structures complexes qui réagissent à la géométrie de la station ; de manière analogue, les couches cellulaires réorganisent leur orientation autour des obstacles, engendrant des défauts topologiques.
Chiffres clés
- diamètre du puits externe: 1 mm
- diamètres des obstacles: 0,1–0,4 mm
- précision de la concordance entre théorie et expérience: 60 μm
- charge topologique totale: -1
- nombre de défauts: 2