Pourquoi la reconnaissance biologique ne casse pas, mais bascule en douceur express
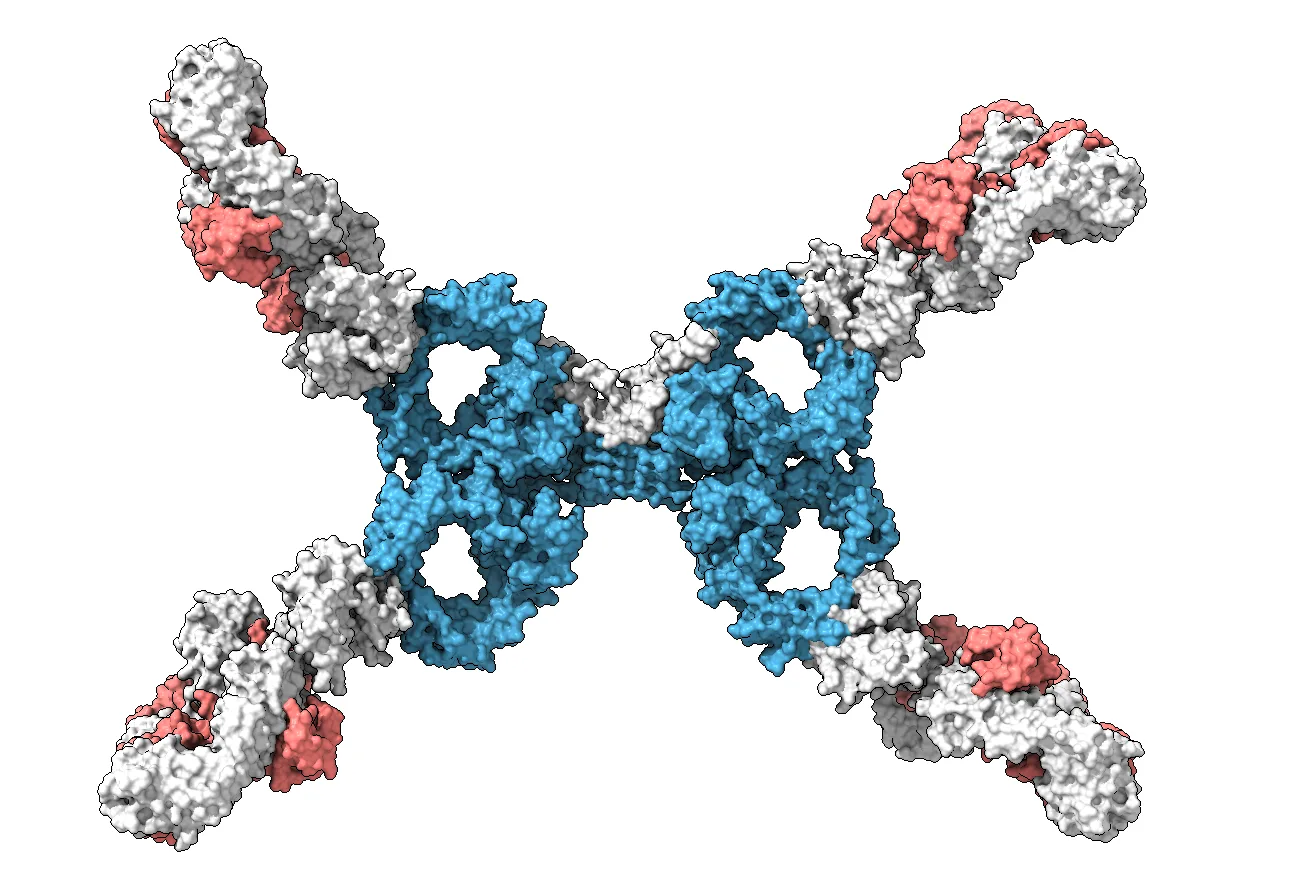
Lorsqu'un anticorps rencontre un virus, il ne s'y agrippe pas par une prise unique et définitive. C'est plutôt comme deux grappes de raisin qui roulent dans l'eau et s'accrochent l'une à l'autre par des dizaines de petits tentacules. Chaque tentacule est faible en soi — il se rompt facilement sous l'agitation thermique des molécules d'eau — mais ensemble, ils tiennent fermement.
Dans cette nouvelle revue, le processus a été reformulé dans le langage de la mécanique statistique. Il s'avère que le problème du comptage de toutes les façons possibles d'accrocher deux surfaces couvertes de velcro se réduit à une vieille énigme mathématique — le problème des monomères et dimères sur un graphe. Et la solution de cette énigme est sans équivoque : la liaison multi-dents ne connaît pas de transitions de phase brutales. Le basculement est toujours doux, comme un réglage de volume, et non comme un clic d'interrupteur. C'est pourquoi une cellule vivante peut ajuster finement ses réponses.
De ce comportement doux découlent trois contraintes strictes. Premièrement, le manteau répulsif à la surface d'une molécule n'est pas un caprice de l'évolution, mais une pièce obligatoire : sans lui, tous les velcros s'agglutineraient de manière chaotique. Deuxièmement, les liens n'agissent pas indépendamment : l'accrochage de l'un affecte la disponibilité des voisins. Troisièmement, comme l'énergie de liaison entre dans la vitesse de réaction via une exponentielle, un minuscule changement du nombre de récepteurs — disons de dix à douze — peut allonger le temps de rétention de plusieurs centaines de fois. Les mêmes équations décrivent le travail des anticorps, la capture des particules lipidiques par les lipoprotéines, et la façon dont les lymphocytes T inspectent la surface d'autres cellules à la recherche d'un intrus. Partout, ce qui compte n'est pas la force d'un contact individuel, mais la manière dont l'adhésivité globale est répartie sur de nombreux points faibles. L'affinité est une propriété d'une molécule isolée, mais la sélectivité est une propriété de l'ensemble.
Ainsi, la reconnaissance biologique ne ressemble pas à une serrure et une clé, mais à une foule de personnes qui se retiennent par les vêtements : personne ne tient fermement, mais tous ensemble empêchent la chute. Et si quelqu'un lâche le pan de la veste, toute la structure se réorganise doucement, sans s'effondrer d'un coup.
Résumé original
tel que rédigé par les auteurs, en anglais arXiv:2608.08571v1
Biological recognition rarely rests on one strong bond. It works by forming many weak ones at once, between crowded, deformable surfaces in water. This review develops that process as a problem in statistical mechanics. Counting the ways two multivalent objects can bind proves to be the classical monomer-dimer problem on a graph, with a rigorous consequence: the apparent switching of multivalent binding is always a smooth crossover, never a phase transition. Three constraints follow. A repulsive surface layer is obligatory rather than a design choice; bonds do not act independently; and since free energies enter rates exponentially, small changes in receptor number shift binding lifetimes by orders of magnitude. One set of equations then covers antibodies, lipoproteins, and T cell recognition. In each, what decides the outcome is not the strength of any single bond but how a fixed total is spread over many: affinity is a property of a molecule, selectivity a property of an assembly.
Un lymphocyte T, en inspectant une cellule du corps, forme et rompt des centaines de contacts faibles par seconde — comme une personne qui tâte rapidement des touches à la recherche de la bonne note.