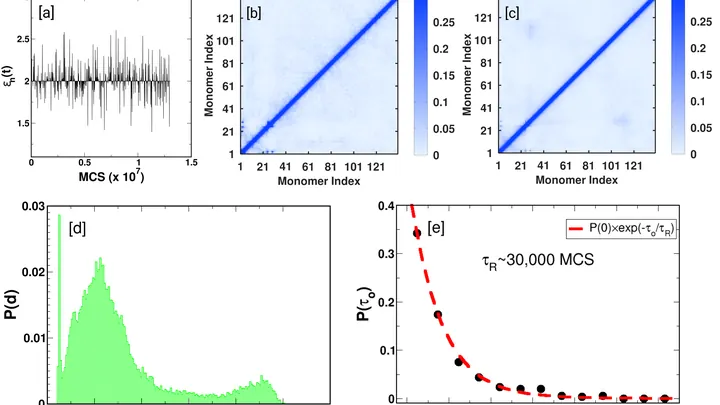
Шум экспрессии генов — стохастические (вероятностные) флуктуации концентраций мРНК и белков, вызванные малой численностью молекул и случайным характером биохимических реакций. Выделяют внутренний шум — собственная вариабельность процессов транскрипции и трансляции из-за дискретной природы химических событий — и внешний шум — колебания числа факторов транскрипции, рибосом, метаболитов, общие для многих генов клетки. Внутренний шум обычно измеряют как квадрат коэффициента вариации (σ²/μ²), и он обратно пропорционален среднему количеству молекул.
История
Концепция биохимического шума восходит к работам Макса Дельбрюка (1940-е) по мутагенезу. В 1957 году Аарон Новик и Милтон Вайнер экспериментально зафиксировали флуктуации β-галактозидазы в E. coli. Однако широкое признание пришло после 2002 года с публикацией статьи Эловица, где с помощью двух флуоресцентных репортёров (CFP и YFP) под идентичными промоторами количественно разделили внутренний и внешний шум. Затем исследования Свитра и Обудовича (2005–2010) показали связь шума с архитектурой генной сети и эволюционной приспособленностью. В 2010-х годах суперразрешающая микроскопия позволила визуализировать отдельные транскрипты в живой клетке, подтвердив скачкообразный характер транскрипции (транскрипционные всплески).
Как это работает
Шум генерируется на всех этапах экспрессии: (1) инициация транскрипции — промотор случайно переключается между активным и неактивным состоянием, из-за локальных хроматиновых перестроек и диссоциации активаторов (всплески); (2) созревание и разрушение мРНК — время жизни определяется стохастическим взаимодействием с РНКазами; (3) инициация трансляции зависит от столкновения рибосом с мРНК, что есть редкое событие в объёме клетки; (4) секреция и деградация белка также вариабельны. Комбинаторно эти процессы усиливают вариации, а петли обратной связи (например, отрицательная авторегуляция) могут снижать шум. У эукариот шум модулируется эпигенетическими факторами и компартментализацией.
Где применяется
Объясняет, почему бактерии выживают при антибиотиках и почему опухоли становятся устойчивыми к терапии; используется для создания стабильных синтетических генетических цепей.
Любопытный факт
Бактерии используют шум как стратегию: в любой момент времени несколько клеток в колонии случайно становятся устойчивыми к антибиотику, даже не встречаясь с ним, — так популяция страхуется от вымирания.
Представьте большой оркестр без дирижёра. Каждый музыкант слышит всех остальных и подстраивается под общий гул. Если каждый инструмент усиливает соседей, звук нарастает до визга, а если иногда приглушает — оркестр может замереть в тишине или сорваться в какофонию. Примерно так ведут себя сети нейронов, где связи между клетками работают как ручки громкости: одни усиливают сигнал, другие ослабляют.
Два разных микрофона записывают один и тот же концерт. Один микрофон стоит у сцены и ловит в основном громкие звуки с первого ряда, другой висит под потолком и слышит весь зал целиком, но с приглушёнными басами. Если сравнить записи, можно понять, какая часть шума в них — от микрофона, а какая — от самого оркестра.
Оркестр начинает играть, но у каждого музыканта свой темп. Если все играют примерно одинаково быстро, музыка льётся непрерывным потоком. А если одна группа инструментов играет заметно медленнее остальных, звук собирается в плотный ком, который медленно движется вперёд.
Под электронным микроскопом белок предстаёт как серия размытых теней — сотни тысяч снимков одной и той же молекулы, сделанных под разными углами и отягощённых сильным шумом. Классический подход сначала восстанавливал по этим теням объёмную «дымку» — карту распределения электростатического потенциала внутри белка.
Медленно вращая ручку настройки старого радиоприёмника, вы слышите, как звук вырывается из шума не постепенно, а резким скачком — в тот миг, когда антенна попадает в резонанс с волной. Примерно так же ведут себя гены в живой клетке. Они работают не как плавный кран, а как тумблер с двумя положениями: «молчит» и «вещает».
Представьте огромный оркестр без дирижёра. Каждый музыкант — это ген (участок ДНК, кодирующий белок или РНК), а мелодия — сложная работа клетки. Раньше, глядя на фотографию ткани, компьютер пытался угадать партию каждого инструмента по отдельности. Он не знал, что скрипки обычно играют вместе с альтами, а трубы — с тромбонами.
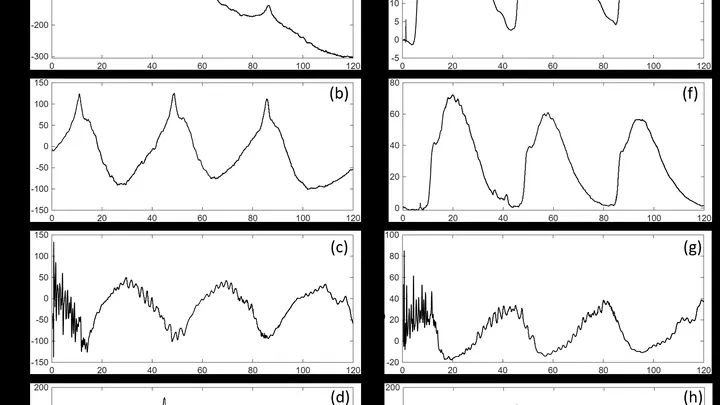
В любом сложном сообществе — будь то оркестр или колония микробов — можно заметить ритм. В кишечнике мышей бактерии каждый день меняют свою численность, и долгое время казалось, что они сверяют свои внутренние часы с часами хозяина. Но когда исследователи всмотрелись в данные почасовых замеров, привычная картина рассыпалась.
Белок скользит по нити ДНК, как ключ по связке, — ищет свой замок. Один неверный поворот, и ген останется выключенным. Чтобы понять, где белок ухватится надёжно, нужно измерить силу этой хватки — энергию связывания. Но перебрать все возможные места вручную невозможно: геном млекопитающих — это миллиарды «букв».
Камертон, по которому ударили, звучит чисто и долго. Но если во время звучания слегка трясти саму вилку — звук начнёт дрожать и быстро затихнет. Примерно то же самое происходит с электронами в любом куске вещества. Атомы в решётке никогда не стоят на месте: тепловые колебания заставляют их непрерывно подрагивать.
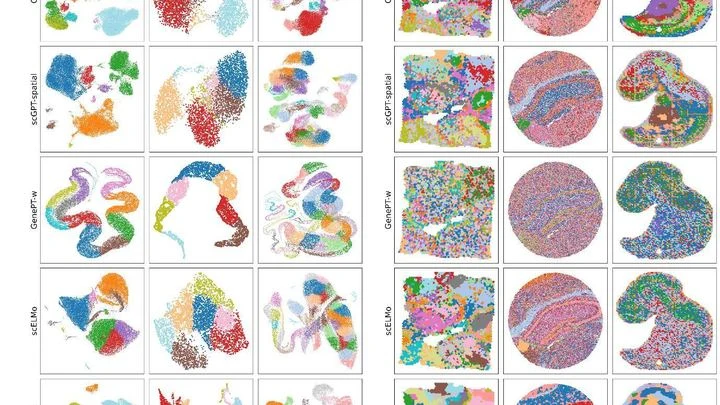
Биологи всё чаще доверяют компьютерам чтение «инструкций по эксплуатации» живой клетки. Шесть свежих моделей искусственного интеллекта — Nicheformer, CellPLM, scGPT-spatial, GenePT, scELMo и Novae — как шесть переводчиков с разных диалектов одного и того же клеточного языка.
Самый массовый строительный материал на планете — бетон — хранит свои главные секреты на нанометровых масштабах. Его прочность и склонность к медленному течению под нагрузкой определяются микроскопическим гелем кальций-силикатного гидрата (C-S-H), чья структура хаотична, словно застывший вихрь атомов.
Клетки одного организма подобны близнецам-пекарям, работающим на общей кухне по единой поваренной книге — молекуле ДНК. Однако при транскрипции (копировании рецепта в молекулы мРНК — «шпаргалки») и последующей трансляции (сборке белков по этим инструкциям) неизбежно возникают случайные флуктуации.
В глубинах Вселенной, когда массивная звезда коллапсирует в чёрную дыру или рождается магнетар, вспыхивает гамма-всплеск — на миг он затмевает все звёзды наблюдаемой Вселенной. Но как умирающая звезда превращает гравитационный коллапс в ослепительный танец гамма-квантов?
Эрвин Шрёдингер размышлял, как жизнь поддерживает порядок вопреки второму началу термодинамики. Он и представить не мог, что часть ответа скрыта в нестабильности гигантских звёзд. Эксперименты Ву Цзяньсюн доказали: слабое взаимодействие нарушает зеркальную симметрию.
Лазер похож на камертон, который звенит на одной ноте. Но даже в полной тишине его звук чуть-чуть дрожит. Раньше считалось, что эта дрожь — случайные толчки от самопроизвольного испускания света атомами внутри лазера — и есть главный предел точности. Новая работа показывает: есть и второй источник шума, более тихий, но вездесущий.
Представьте переполненный вагон метро в час пик. Пассажиры не просто стоят — они дышат, выделяют влагу, протискиваются к выходам и порой застревают в дверях, блокируя движение. А теперь вообразите, что эти пассажиры способны перекраивать стены вагона, добавлять поручни или превращать пол в гель.
В эмбриональном развитии клетка напоминает музыканта в огромном оркестре: она должна сыграть свою партию, ориентируясь на дирижёра — градиент сигнальных молекул. Но дирижёр ненадёжен: концентрация морфогенов постоянно флуктуирует. Как же тогда виолончелист не сбивается на скрипичную мелодию?
60 мышей, 1980 образцов, 234 пациента с раком лёгкого. За каждым числом — тысячи генов. Их активность измеряют, чтобы понять болезнь. Но данные не однородны: у одного больного оценивают уровень белка (непрерывное число), ставят диагноз (да/нет) и определяют подтип опухоли (категория). Смешать их в одной модели — как сложить градусы Цельсия и километры.
Скомканная в клеточном ядре нить ДНК — не хаотичный узел, а замысловатая мелодия, сыгранная на полимерной струне. Современные эксперименты Hi-C, словно высокочувствительные микрофоны, улавливают эхо контактов между удалёнными участками генома, превращая пространственную организацию в двумерную матрицу вероятностей.
Биологическая сложность долго не давалась в руки: гены можно сосчитать, клетки тоже, но как ухватить саму организованность протеома — многотысячного ансамбля белков, сотканного из углерода, кислорода и водорода?
Квантовый компьютер похож на оркестр, где каждый ион — музыкант, а лазерные импульсы — дирижёрские палочки. Но стоит кому-то в зале зашуршать, и тонкая мелодия квантовых состояний сбивается. В ионных ловушках роль такого шороха играет электрический шум от поверхности электродов.
Внутри каждой клетки идёт непрерывная стройка: молекулы постоянно собираются в группы и снова расходятся. Иногда они образуют плотные капли — как масло в воде, только без оболочки. Такие капли работают временными складами: здесь хранятся белки, копии генов или инструменты для починки ДНК.
Но сигнал к сборке не всегда горит ровно.
Два облака ультрахолодных атомов, почти замерших при температуре в несколько нанокельвинов, смешиваются в ловушке. Одно облако состоит из лёгких атомов, другое — из тяжёлых. Они по-разному толкаются друг с другом. Физики давно умеют описывать такие смеси простыми уравнениями, но те работают, только если атомы идеально одинаковы.
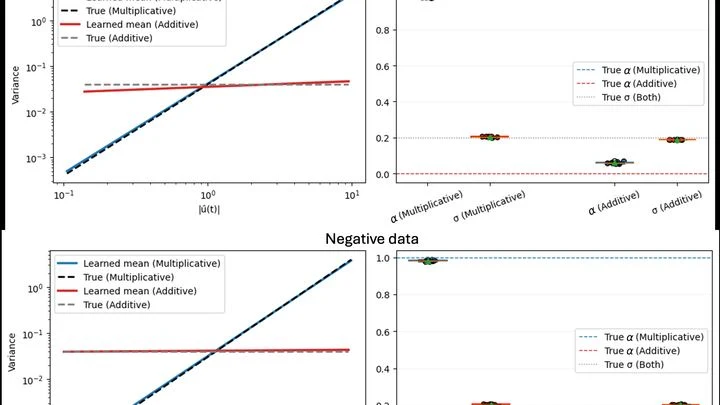
Рост популяции со стороны похож на разгоняющийся поезд: сначала еле ползёт, потом набирает ход. Но стоит вглядеться в данные — и картинка расплывается. В одном замере десяток особей, в другом сразу сотня. Классические модели смахивают этот разброс как досадную грязь с объектива. Они считают, что шум везде одинаковый, и просто не обращают на него внимания.
Канарейка в шахте замолкает — и шахтёры понимают: газ уже здесь, пора уходить. Примерно так же ведёт себя опухолевая ДНК, плавающая в крови. Лекарство давит на рак, и уровень этой ДНК падает почти до нуля. Анализ перестаёт её видеть. Врач видит «чисто» и успокаивается.
Но тишина бывает обманчивой.
Переводчик учит язык не по учебнику, а слушая живую речь и сразу видя, что люди делают в ответ на слова. Именно так работает новый метод C3P для чтения бактериальной ДНК. Обычные геномные модели пытаются выучить правила, просто «перечитывая» миллиарды букв генетического кода — и часто путаются. Причина в том, что регуляторные участки ДНК эволюционируют быстро и хаотично, как уличный сленг.
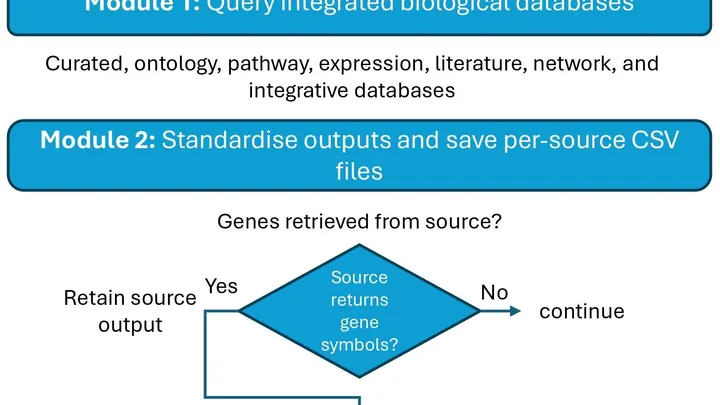
Собрать пазл, когда кусочки разбросаны по 13 коробкам с разными системами нумерации, — примерно так выглядит поиск генов, связанных с конкретной болезнью. Данные есть, но они спрятаны в базах с собственными интерфейсами, форматами и даже языком описания.
Длинный коридор с неровным полом: где-то бугры, где-то ямы. Если пустить по нему игрушечную машинку, она застрянет в самой глубокой яме, а не там, где её толкнули. Примерно так ведёт себя звук в фононном кристалле — материале, который состоит из периодически расположенных элементов и управляет распространением упругих волн.
Человек слышит звон, которого нет. Врач просит описать его — громкость, высоту, постоянство. Но это субъективно: один скажет «как комар», другой — «как пар из чайника». Нужен способ увидеть тиннитус напрямую, в самом мозге.
Электроэнцефалограмма (ЭЭГ) записывает электрические волны мозга с кожи головы — быстро и безболезненно, как микрофон улавливает звук.
Кварцевые микровесы — это тонкая пластинка, которая дрожит с частотой пять миллионов раз в секунду. Если на неё попадает капля жидкости, дрожь меняется: по этим изменениям можно узнать массу капли и её упругость. Но в маленьких каплях возникает неожиданный эффект: звук, который пластинка посылает в жидкость, отражается от верхней границы капли и возвращается обратно.
Два музыканта играют дуэтом. В идеальном зале они слышат друг друга идеально и постепенно входят в резонанс. Но попробуйте играть в комнате, где кто-то постоянно хлопает дверью. Казалось бы, ритм собьётся. А вот и нет: иногда именно этот случайный хлопок заставляет обоих подстроиться мгновенно.
Примерно так ведут себя две квантовые частицы — кубиты — когда вокруг них шумит среда.
Капля чернил в стакане воды расплывается равномерно, но в чашке с кусочками фруктового желе чернила пойдут извилистыми путями — где-то застрянут, где-то проскочат. Так и молекулы в живых клетках или пористых материалах движутся не по гладкому полю, а сквозь среду с беспорядком: где-то гуще, где-то жиже.
Кастрюля с водой стоит на плите. Температура падает: плюс один градус, ноль, минус один — вода остаётся жидкой. Но в какой-то момент лёгкого дуновения достаточно, чтобы вся масса мгновенно застыла в лёд. Такие скачки физики называют фазовыми переходами. Похожие переключения происходят и в живых сообществах — просто роль температуры играют другие силы.
Оркестр без дирижёра. Каждый музыкант играет свою партию, и общая громкость нарастает, но мелодия рассыпается — скрипки спешат, духовые отстают. Примерно так же ведут себя клетки, когда в их ДНК вносят изменения: они могут сдвинуться с места, но кто-то уходит далеко, а кто-то топчется на месте.
Внутри клетки есть крошечные жидкие капли — как масляные шарики в воде. Они собираются из белков и РНК и нужны для самых разных дел: от хранения молекул до ускорения реакций. Но если капли начнут сливаться друг с другом, получится одна большая лужа, и это сломает клетке всю организацию.
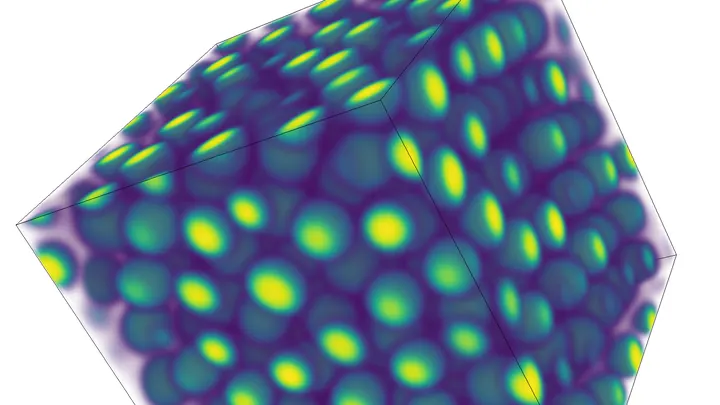
В активно растущей бактерии гены, кодирующие «белковые фабрики» — рибосомы, — не дрейфуют в цитоплазме хаотично. Они слипаются в жидкие капли, напоминающие масляные разводы в воде: у них нет окружающей мембраны, но есть чёткая граница раздела с окружением. За это сгущение отвечает белок NusA.
Белок в клетке — как туго свёрнутая пружина. Её форма определяет, что она делает, но увидеть эту форму у одиночной молекулы, не задев её, было почти невозможно. Новый микроскоп действует иначе: он посылает короткий лазерный импульс, который слегка нагревает молекулу.
В лаборатории измеряют очень слабый сигнал — например, крошечное изменение магнитного поля. Прибор дрожит от проезжающих машин, от дыхания экспериментатора, от нагрева проводов. Этот технический шум не убрать полностью, и он ставит предел точности. Обычный датчик работает как весы, которые качаются от любого сквозняка.
Ударьте по камертону — и он зазвучит одной чистой нотой. Но если камертон дрожит, а рядом шумят люди, звук уже не будет идеальным. Так и молекулы: каждая поглощает свет определённого цвета, но из-за собственной дрожи и толкотни соседей этот цвет слегка размывается.
Авторы статьи придумали, как показать это студентам без сложных формул.
Кусок теста, если тянуть его в стороны, не растягивается равномерно: в одном месте он истончается и рвётся. Живая ткань ведёт себя похоже, но вместо разрыва в ней появляются полосы сдвига — узкие зоны, где клетки начинают скользить друг по другу, как карты в колоде при снятии.