La régulation post-transcriptionnelle englobe toutes les modifications et le devenir des molécules d'ARN après la transcription (synthèse de l'ARN sur une matrice d'ADN). Cela inclut : l'épissage (excision des introns non codants et jonction des exons), l'épissage alternatif (création de différentes versions d'une protéine à partir d'un seul gène), la coiffe, la polyadénylation, l'édition des bases, le transport du noyau au cytoplasme, la localisation, le contrôle de la stabilité et de la vitesse de traduction (synthèse des protéines). C'est crucial pour l'adaptation dynamique de la cellule aux conditions environnementales et sous-tend de nombreuses maladies.
Histoire
Jusque dans les années 1970, la régulation de l'expression génique était principalement associée à la transcription (modèle de l'opéron de Jacob et Monod). En 1977, Philip Sharp et Richard Roberts ont indépendamment découvert les introns et l'épissage chez les adénovirus, et dans les années 1980, Thomas Cech et Sidney Altman ont prouvé l'activité catalytique de l'ARN (ribozymes). En 1993, Victor Ambros et ses collègues ont décrit le premier microARN – lin-4 chez C. elegans –, démontrant la fonction régulatrice des petits ARN. Plus tard, les mécanismes d'interférence par ARN (siARN) et d'édition (enzymes APOBEC) ont été découverts. Ces travaux ont fait passer le paradigme d'une transmission linéaire de l'information ADN→ARN→protéine à un réseau complexe de contrôle post-transcriptionnel, reconnu comme clé dans le développement, l'immunité et les pathologies.
Comment ça marche
Les mécanismes post-transcriptionnels modulent le devenir du transcrit par la formation de complexes ribonucléoprotéiques. Le complexe de liaison à la coiffe recrute des facteurs d'élongation, le spliceosome reconnaît les sites d'épissage par des séquences consensus, et la protéine de liaison poly(A) stabilise l'ARNm. Les microARN, incorporés dans le complexe RISC, s'apparient partiellement avec la région 3' non traduite de l'ARNm et répriment la traduction ou provoquent la déadénylation et la dégradation. La localisation est réalisée par un transport dépendant du cytosquelette et un ancrage. Les perturbations de ces processus sont à la base de nombreuses maladies : de l'amyotrophie spinale (mutation de l'épissage de SMN1) au cancer (déséquilibre global de l'épissage).
En pratique
Explique comment les cellules s'adaptent au stress sans modifier l'ADN ; constitue la base des vaccins à ARN et des thérapies par petits ARN interférents.
Anecdote
Un seul gène peut, grâce à l'épissage alternatif, donner plus de 38 000 versions de protéines – comme composer différentes phrases à partir d'un seul ensemble de mots.
Deux réservoirs d'encre se tiennent de part et d'autre de la jonction cellulaire. De là, deux types de monomères s'écoulent sur la membrane et, lorsqu'ils se rencontrent, forment des gouttes visqueuses de complexes. Les gouttes bougent à peine, tandis que les monomères libres filent rapidement, comme des molécules de parfum dans une pièce.
Deux réservoirs d'encre se tiennent de part et d'autre de la jonction cellulaire. De là, deux types de monomères s'écoulent sur la membrane et, lorsqu'ils se rencontrent, forment des gouttes visqueuses de complexes. Les gouttes bougent à peine, tandis que les monomères libres filent rapidement, comme des molécules de parfum dans une pièce.
Imaginez un long fil enfermé dans une sphère aux parois chargées. Le fil, c'est l'ARN du virus ; la sphère, c'est sa coque protéique. Le fil essaie de se positionner de manière à ce que ses charges soient aussi proches que possible des charges opposées sur la paroi.
Dans un immeuble de neuf étages, avec mille pièces à chaque niveau, certains chuchotent, d'autres crient. Les voisins transmettent les paroles, mais si tout le monde parle trop bas, le message s'éteint dès le troisième étage. S'ils parlent trop fort, il devient un rugissement inintelligible au dernier étage. Entre ces extrêmes, il existe un régime où le chuchotement parvient jusqu'en haut sans distorsion.
Le chantier bat son plein : les neurones posent leurs prolongements comme des maçons montent des murs. Mais une erreur s'est glissée dans les plans. La protéine tau, qui sert normalement d'échafaudage au squelette cellulaire, se met, sous sa forme mutante, à imposer de mauvaises dimensions.
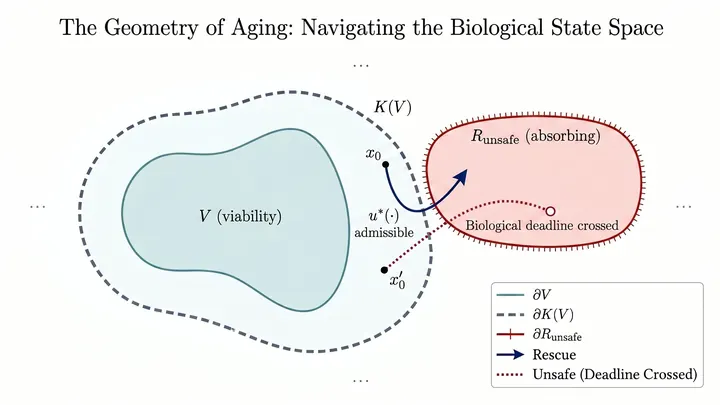
Imaginez une télécommande qui commande le muscle, et à laquelle on retire des boutons au fil des années. D'abord disparaissent les boutons qui gèrent la réponse aux hormones, puis ceux qui déclenchent la récupération après l'effort.
Le détective arrive sur les lieux du crime et aperçoit une empreinte de semelle. Il ne se demande pas : « Que se passerait-il si cette chaussure marchait dans la boue ? » Il se demande : « Lequel des propriétaires connus a pu laisser exactement cette trace ?
En tournant lentement le bouton de réglage d'un vieux poste de radio, vous entendez le son émerger du bruit non pas progressivement, mais par un saut brusque, au moment où l'antenne entre en résonance avec l'onde. C'est à peu près ainsi que se comportent les gènes dans une cellule vivante.
En tournant lentement le bouton de réglage d'un vieux poste de radio, vous entendez le son émerger du bruit non pas progressivement, mais par un saut brusque, au moment où l'antenne entre en résonance avec l'onde. C'est à peu près ainsi que se comportent les gènes dans une cellule vivante.
Un mixeur de cuisine fonctionne à une seule vitesse, mais si vous appuyez sur le bouton par à-coups, le mélange se fouette différemment. C'est à peu près ce qui se passe dans les réactions chimiques lorsque la vitesse de leurs étapes individuelles n'est pas constante mais pulse dans le temps.
En mesurant l'activité de milliers de gènes, les biologistes ne voient généralement qu'une liste de coïncidences — comme deux ingrédients d'une soupe qui se retrouvent souvent ensemble. Le modèle standard recherche ce genre de paires liées, mais ne montre pas qui influence qui.
Les cellules d'un même organisme sont comme des jumeaux boulangers dans une cuisine commune. Ils partagent le même livre de recettes (l'ADN), mais des erreurs aléatoires surviennent lorsqu'ils recopient la recette sur une antisèche et lorsqu'ils assemblent le plat.
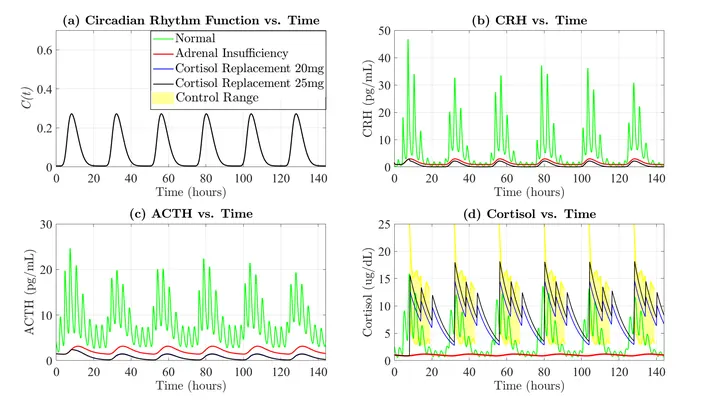
En chacun de nous, une horloge invisible fait tic-tac. Elle commande la libération de cortisol, l'hormone qui nous aide à nous réveiller le matin, à gérer l'anxiété et à maintenir le système immunitaire en alerte. En cas d'insuffisance surrénalienne, cette horloge se dérègle : le corps ne peut plus produire lui-même la quantité de cortisol nécessaire.
À l'intérieur de chaque cellule, un réseau complexe de gènes détermine ce qu'elle deviendra : une cellule nerveuse, musculaire ou un fragment de peau. Ce choix évoque souvent la bascule d'un interrupteur : deux positions stables, et la cellule décide de quel côté pencher. Mais les cellules possèdent une particularité rarement prise en compte dans ces modèles : elles se divisent.
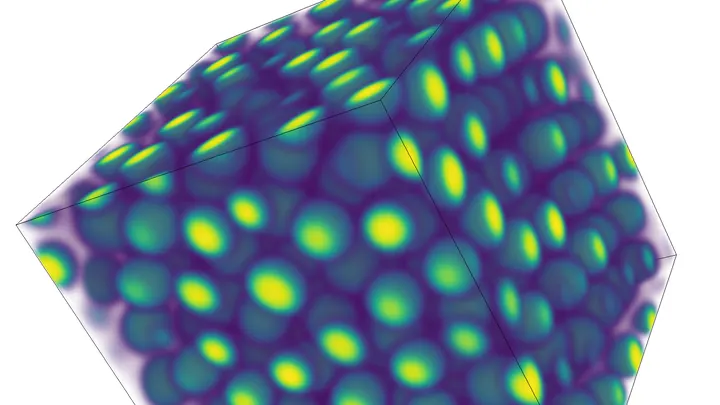
À l'intérieur de chaque cellule, une construction continue a lieu : les molécules se regroupent sans cesse puis se séparent à nouveau. Parfois, elles forment des gouttelettes denses — comme de l'huile dans l'eau, mais sans membrane.
Deux équipes de cantonniers posent de l'asphalte depuis les deux extrémités d'une rue. Elles avancent l'une vers l'autre, et c'est de leur coordination que dépend le moment où la rue sera prête.
Un ingénieur qui construit un pont ne peut pas renforcer une poutre sans modifier la charge sur les poutres voisines. C'est à peu près ainsi que fonctionne le développement de médicaments : la molécule doit s'insérer parfaitement dans la « poche » de la protéine cible, comme une clé dans une serrure, tout en étant sûre, stable et facile à administrer.
Un fil téléphonique coupé, c'est embêtant, mais de l'ADN cassé, c'est une catastrophe. Une cassure double brin (lorsque les deux brins de l'hélice se brisent au même endroit) menace la cellule de mort ou de transformation cancéreuse.
Un traducteur n'apprend pas une langue dans un manuel, mais en écoutant la parole vivante et en voyant immédiatement ce que les gens font en réponse aux mots. C'est exactement ainsi que fonctionne la nouvelle méthode C3P pour lire l'ADN bactérien.
Un cuisinier goûte sa sauce et comprend : il manque une pincée de sel. Mais si l'on jetait cette même pincée dans un lac, personne ne remarquerait la différence.
Dans une voiture, la direction, les freins et l'accélérateur tombent progressivement en panne. Au début, on peut encore éviter un nid-de-poule, mais chaque année, la manœuvre exige de plus en plus d'efforts. À un moment donné, même une route parfaite devient infranchissable — la voiture n'obéit plus au conducteur.
L'intrication quantique est une chose fragile. Deux amis partent dans des villes différentes, chacun emportant une boîte contenant une paire de gants : si dans une boîte il y a le gant gauche, dans l'autre il y a le droit. Les particules intriquées se comportent de manière similaire, sauf qu'avant la mesure, personne ne sait où est quoi.
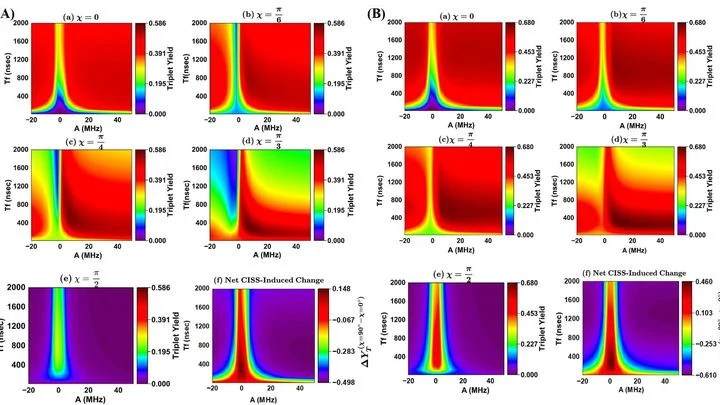
Sous la lumière du soleil, les molécules de la bactérie, telles les fouets d'un batteur de cuisine, capturent l'énergie et font tourner les électrons dans la bonne direction. Mais parfois, la rotation se dérègle – des particules « coincées » appelées triplets se forment.
Une protéine dans la cellule ressemble à une minuscule machine : chacune a son plan précis et sa tâche. Certaines coupent des molécules, d'autres transportent l'oxygène, d'autres encore captent la lumière.
Une image microscopique de tissu, c'est comme une carte de ville : rues, maisons, parcs. Sur une telle carte, un œil expérimenté peut en dire long sur la vie du quartier. Mais que diriez-vous si, à partir de la carte, on pouvait prédire quelles maisons sont animées aujourd'hui et lesquelles sont calmes ?
De longs filaments protéiques, leurs enchevêtrements et leurs contacts aléatoires : c'est ainsi qu'on expliquait généralement la naissance des gouttelettes cellulaires.
Un orchestre sans chef. Chaque musicien joue sa partition, et le volume global augmente, mais la mélodie se désagrège : les violons précipitent, les cuivres traînent. C'est à peu près ce qui arrive aux cellules lorsque l'on modifie leur ADN : elles peuvent bouger, mais certaines s'éloignent beaucoup, d'autres piétinent sur place.
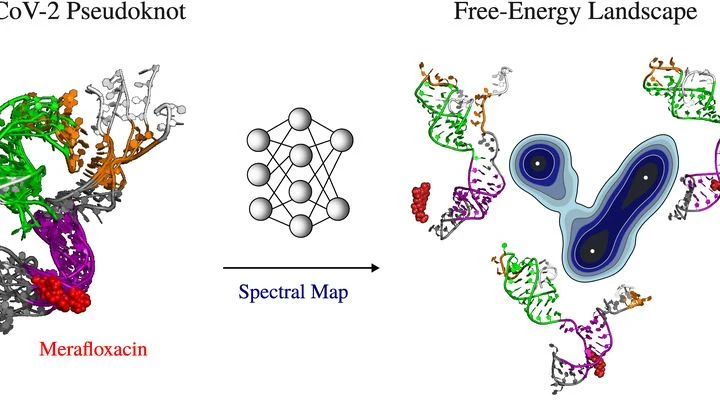
L'ARN du virus SARS-CoV-2 n'est pas un simple fil, mais une structure complexe. Il contient une région qui se replie en un nœud, semblable à un lacet emmêlé. Ce nœud aide le virus à produire deux protéines à partir d'un seul segment de code génétique.
À l'intérieur des cellules, il existe de minuscules gouttelettes liquides, comme des billes d'huile dans l'eau. Elles se forment à partir de protéines et d'ARN et servent à toutes sortes de tâches : du stockage de molécules à l'accélération de réactions.
Une lentille ordinaire réfracte toujours la lumière de la même manière. Ses propriétés sont figées dans le verre pour toujours. Mais voici qu'apparaît une surface qui change les règles du jeu en pleine action.
Des scientifiques ont fabriqué un film extrêmement mince avec des éléments résonants et l'ont imprégné de cristaux liquides — la même substance que celle des écrans de téléphone.
Une colonie de cellules ressemble à une ville qui s'étend par ses faubourgs : de nouvelles maisons apparaissent là où il y a plus d'espace. À l'intérieur, c'est serré, et la construction s'arrête. De même, les cellules se divisent plus souvent au bord, là où elles sont moins comprimées par leurs voisines. Les scientifiques ont modélisé cela sans aucun ordre chimique — uniquement de la mécanique.
On peut modifier une cellule de manière idéale, mais elle peut néanmoins s'avérer inutile. Le gène est corrigé exactement comme prévu, mais la cellule se comporte de manière imprévisible : elle dérive, change de destinée, perd sa sécurité. C'est comme réparer un engrenage dans une montre, mais la montre continue de mal fonctionner parce que tout le mécanisme s'est déréglé.
Dans une salle de classe, l'institutrice explique la différence entre « dom » et « tom » : posez la main sur la gorge et sentez la vibration. La machine qui reconnaît la parole fait à peu près la même chose, sauf qu'à l'intérieur, ce n'est pas une gorge, mais de longues listes de nombres.
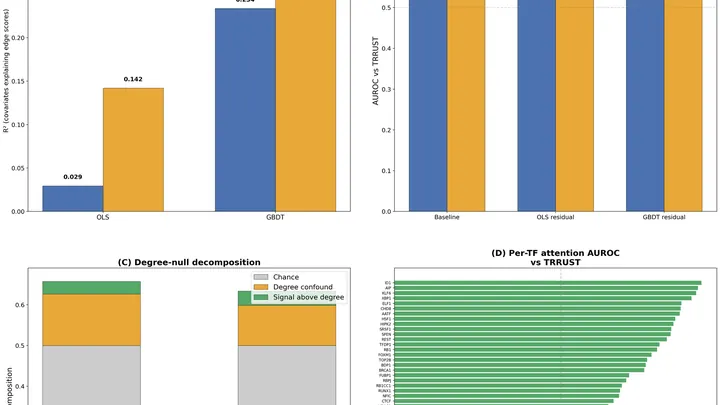
À l'intérieur de la cellule, le travail bouillonne : des milliers de gènes s'activent et se désactivent, comme des ampoules sur un immense tableau d'affichage. Les réseaux de neurones entraînés à lire ce tableau ont appris à deviner ce qui se passera si l'on « éteint » un gène ou si l'on ajoute un médicament. Mais comment ils font exactement — c'est une énigme.
Notre tissu corporel ressemble à une ville : dans différents quartiers vivent différentes cellules, chacune avec son propre travail. Pour comprendre comment cette ville est organisée, les biologistes prennent des images montrant quels gènes sont actifs à chaque point.
Un modèle linguistique de protéines, c'est un peu comme un chef cuisinier qui aurait appris dans des milliers de recettes et qui compose maintenant de nouveaux plats. Parfois, il s'emballe et met du sel dans chaque plat, parce qu'un bon livre de recettes en contenait beaucoup.
La cellule ressemble à une cuisine où des milliers de recettes (les gènes) sont consignées dans un gros livre (l'ADN). Le chef-protéine Klf4 feuillette les pages et décide quelle recette préparer aujourd'hui. Mais comment trouve-t-il la bonne ligne parmi des milliards de lettres ?
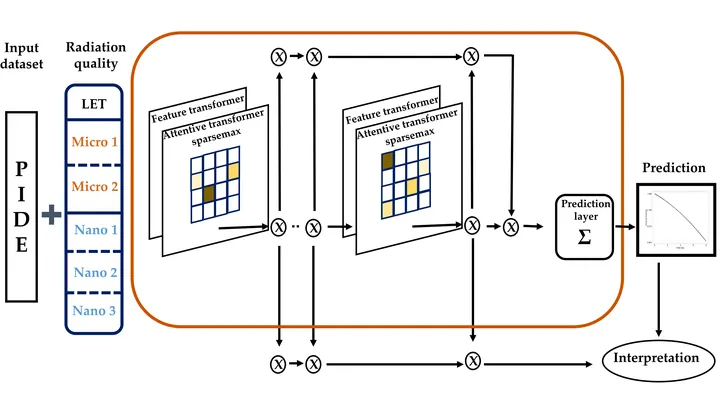
Une cellule prise dans un faisceau de protons ressemble à une ville après un bombardement ciblé : ici des quartiers entiers sont détruits, là seulement des vitres sont brisées. La survie de la ville dépend des bâtiments touchés et de la répartition des impacts.
Dans chaque cellule vit un copiste infatigable — une enzyme qui recopie le long fil d'ADN. Elle se déplace le long de ce fil comme une tête de lecture sur une bande magnétique, et construit à côté un nouveau brin. Elle choisit les lettres selon une règle stricte : en face de A, elle place toujours T ; en face de G, C.
Après l'ablation du sein, on pose souvent un implant, puis on irradie la poitrine pour éliminer les cellules cancéreuses résiduelles. La protonthérapie a l'avantage de viser précisément la cible et d'épargner davantage le cœur et les poumons.